Canlılık İçin Enerji Neden Gereklidir? ATP ve Fosforilasyon Nasıl Çalışır?
Dinlenirken Bile Vücudumuz Enerjiyi Nereye Harcıyor?


Bu Makalede Neler Öğreneceksin?
Bu bölümü yapay zekâ hazırlar.- Hücreler enerji ihtiyacını Adenozin Trifosfat (ATP) molekülü aracılığıyla karşılar ve bu enerji kimyasal, taşıma ve mekanik işlerde kullanılır.
- Gibbs serbest enerjisi (ΔG), biyokimyasal reaksiyonların gerçekleşip gerçekleşmeyeceğini belirler; ΔG negatif ise reaksiyon kendiliğinden gerçekleşir, pozitif ise enerji gerekir.
- Hücrelerde elverişsiz reaksiyonlar, ekzergonik reaksiyonlarla enerji eşlemesi sayesinde gerçekleşir; böylece ATP gibi enerji kaynakları kullanılarak metabolik işler yürütülür.
Canlılık için enerji, hücrelerin düzenli iç yapılarını koruyabilmesi ve yaşamsal kimyasal tepkimeleri kesintisiz biçimde yürütebilmesi bakımından zorunludur. Hücreler bu enerji gereksinimini karşılamak için metabolik süreçler arasında aracı olarak görev yapan adenozin trifosfat molekülünü kullanmaktadır. Çevreden alınan ışık enerjisi veya kimyasal enerji hücresel süreçlerle bu molekülün yapısına aktarılmakta ve enerji gerektiren yaşamsal işlerin yürütülmesinde aralıksız harcanmaktadır.
Enerji tüketimi çoğu zaman yanlış anlaşılmaktadır. Halk arasında enerjinin sadece koşmak, ağırlık kaldırmak veya egzersiz yapmak gibi görünür hareketler sırasında harcandığı sanılmaktadır, oysa hareketsiz kaldığımız anlarda bile dokularımız yaşamsal işlevlerini sürdürmek için durmaksızın çalışmaktadır. Dahası, enerji taşıyan moleküllerin kendiliğinden parçalanmaya hazır kararsız yapılar olduğu veya kimyasal bir bağ koptuğunda kendiliğinden enerji fışkırdığı düşüncesi de fiziksel gerçeklikle uyuşmamaktadır. Bu yazımızda, hücresel düzenin termodinamik yasalarıyla nasıl uzlaştığını, enerjinin tepkimeler arasında nasıl taşındığını ve bu aktarımın sayısal kurallarını adım adım inceleyeceğiz.
Videonun Sayfası: Kaostan Gelen Düzen: Entropi Sürekli Artıyorsa Karmaşık Canlılar Nasıl Evrimleşiyor?
Canlılar Neden Enerjiye İhtiyaç Duyar?
Canlı organizmaları cansız maddelerden ayıran en belirgin özelliklerden biri, iç ortamlarında aralıksız işleyen yoğun kimyasal etkinliktir. Bir organizmada çok sayıda kimyasal tepkime hemen hemen her zaman gerçekleşmektedir.[1] Örneğin derin uykudaki bir insanda, toprağa tutunan bir bitki kökünde veya durgun suda bekleyen tek hücreli bir canlıda da bu tepkimeler aynı anda yürütülmektedir.
Bu yoğun kimyasal trafiğin sürmesi, hücrenin yapısal bütünlüğünü koruması ve dış ortamla arasındaki seçici sınırları sürdürmesi açısından vazgeçilmezdir. Hücredeki her bileşiğin doğru bölgede bulunması gerekmektedir. Bu bileşiklerin uygun derişimde ve işlevsel üç boyutlu yapıda tutulması da gerekmektedir. İşte bu aralıksız düzenleme ihtiyacı, mikroskobik bir bakteriden dev bir ağaca kadar tüm canlıların her saniye dışarıdan alınan bir enerji akışına bağımlı olmasının temel nedenidir.
Düzeni Korumanın Bedeli
Hücreler oldukça düzenli yapılardır. Bu yüksek iç düzenin varlığı, ilk bakışta bazılarının yaşamın fizik kurallarını ve özellikle termodinamiğin ikinci yasasını ihlal ettiği yönünde hatalı bir sonuca varmasına yol açabilmektedir. Çünkü ikinci yasa, dış çevresiyle madde veya enerji alışverişi yapmayan yalıtılmış sistemlerin kendi haline bırakıldığında düzensizliğin artması yönünde eğilim gösterdiğini söylemektedir. Dağınık bırakılan bir odanın kendiliğinden toplanmaması veya sıcak bir cismin giderek soğuması gibi, evrendeki bu genel eğilim karşısında bir hücrenin karmaşık iç mimarisini yıllarca bozulmadan koruyabilmesi şaşırtıcı görünmektedir.
Ancak burada sistemin sınırları belirleyicidir. Hücreler dış dünyaya kapalı ve yalıtılmış sistemler değildir, aksine çevrelerinden sürekli madde ve enerji alan açık sistemlerdir. Düzensizliğe yönelen bu evrensel eğilime yerel ölçekte karşı koyabilmek kesintisiz enerji akışı gerektirmektedir.[3] Hücreler çevreden sağladıkları bu sürekli girdiyle iç organizasyonlarını ayakta tutmaktadır. Kimyasal ve elektriksel farkların tamamen ortadan kalkması ise bir denge durumu oluşturmaktadır. Bu denge durumu biyolojik ölüm demektir.
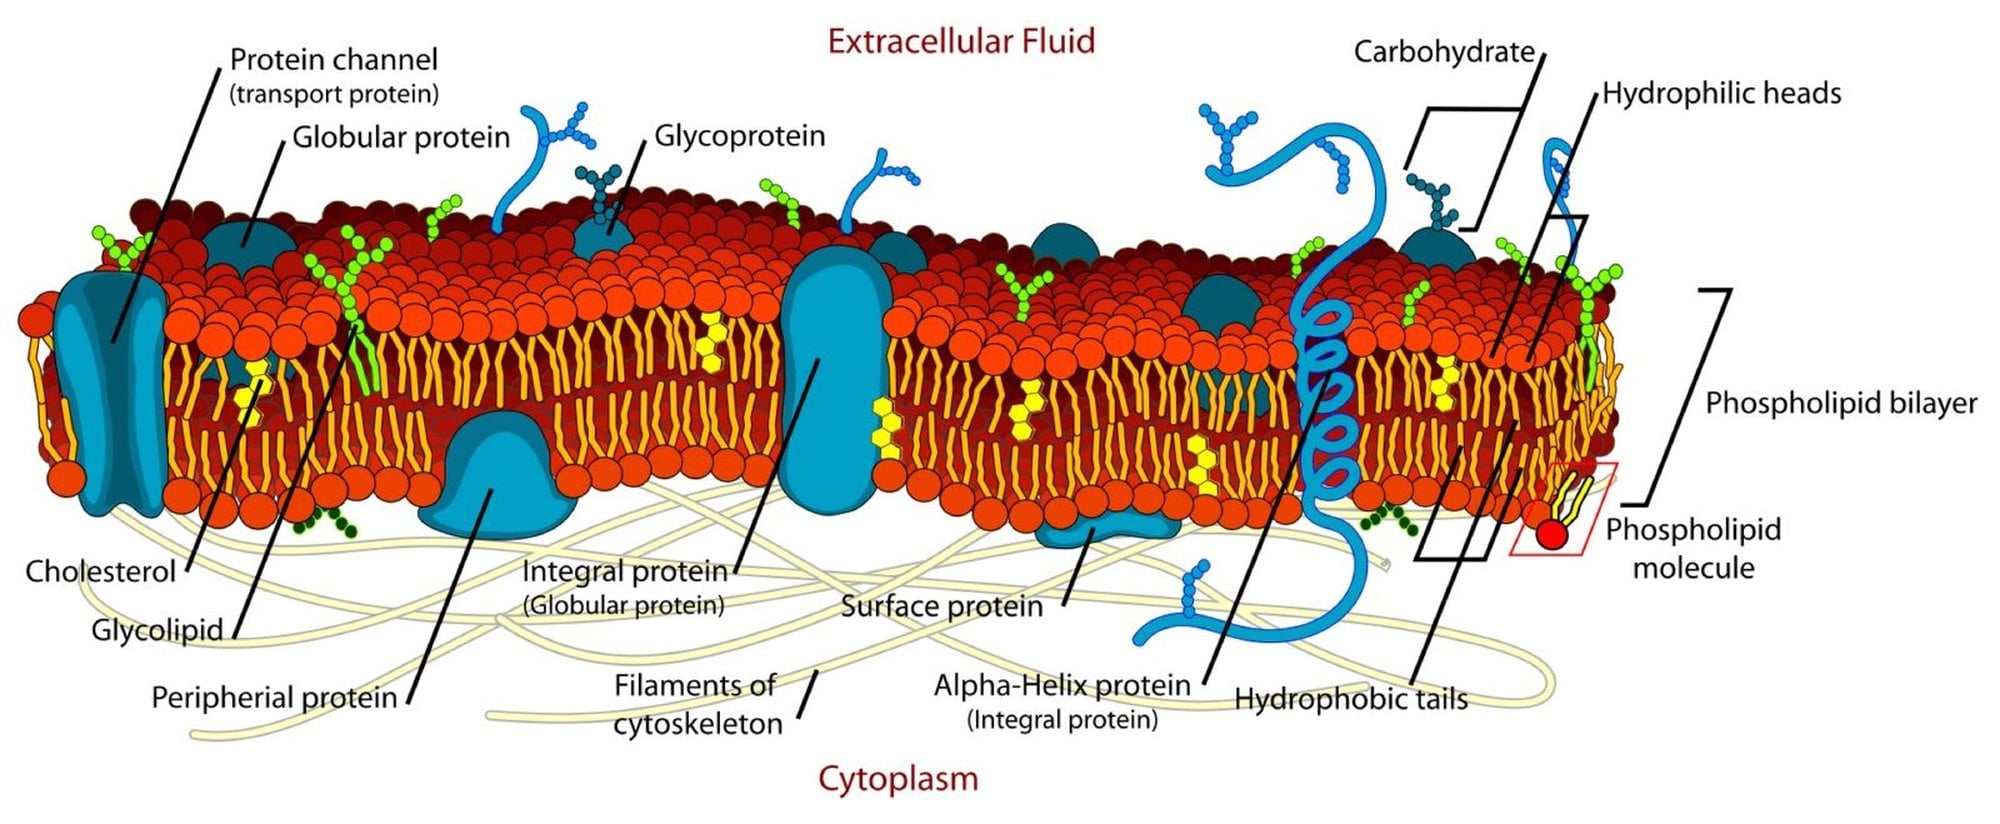
Günlük dilde veya giriş düzeyindeki anlatımlarda sıkça karşılaştığımız "hücrede enerji üretimi" ifadesini de fiziksel açıdan doğru yere oturtmak gerekmektedir. Fizik yasaları bu konuda kesindir. Enerjinin yoktan var edilmesi veya var olan enerjinin yok edilmesi olanaksızdır.[16] Bu nedenle canlılardaki enerji üretiminden söz edildiğinde gerçekte bir enerji dönüşümü kastedilmekte, yani hücreler çevreden aldıkları bir enerji biçimini kendi kimyasal sistemlerinde iş görebilecek başka bir biçime çevirmektedir.
Enerji Gerektiren Yaşamsal İşler
Dönüştürülen enerji pek çok işte harcanmaktadır. Canlıların enerji gerektiren yaşamsal etkinliklerine kas kasılması, yeni moleküllerin sentezi, sinirsel ileti, hücresel sinyalleşme, vücut sıcaklığının düzenlenmesi ve hücre içi hareketler örnek verilebilir. Bir sinir hücresinin elektriksel uyarı göndermesinden bir bez hücresinin kana hormon salgılamasına kadar her adım bu kimyasal güce dayanmakta, hatta hücre içindeki organellerin iskelet lifleri boyunca taşınması bile aynı kaynaktan beslenmektedir.
Moleküler ölçekte görev dağılımı çok geniştir. Örneğin iyonların ve moleküllerin derişim farkına karşı hücre zarından aktif taşınması, sillerin ve sperm kamçısı dahil kamçıların çırpınma hareketi ile bazı canlılardaki biyolüminesans (ışık üretimi) doğrudan ATP tüketmektedir. Protein yapımına hazırlık aşamasında amino asitler taşıyıcı RNA moleküllerine bağlanmaktadır. Bu bağlanma da aynı kaynağa dayanmaktadır. Hücresel sinyalleşmede çeşitli proteinlere fosfat grupları eklenerek etkinlikleri değiştirilmektedir. Memelilerde hasarlı hücrelerden dışarı salınan ATP inflamasyonu ve ağrıyı tetikleyebilmektedir.[2]
Tam dinlenme halinde dışarıdan görünür hiçbir kas hareketi yapılmamaktadır. Bu durumda bile enerji tüketimi durmamaktadır. Vücuttaki iyon gradyanlarının (hücre zarının iki yanı arasındaki iyon derişimi farklarının) korunması dinlenme sırasında da önemli miktarda enerji gerektirmektedir. Bazal harcamanın büyük kısmı bu elektriksel ve kimyasal farkları sabit tutmaya ayrılmaktadır. Bu nedenle temel enerji gereksinimi yaşam boyunca kesintisiz devam etmektedir.
Işıktan ve Kimyasallardan Gelen Enerji
Birincil besin üretimi iki yolla gerçekleşmektedir. Canlıların inorganik maddelerden besin üretmesini sağlayan bu iki ana sürece fotosentez ve kemosentez (İng: "chemosynthesis") denilmektedir. Fotosentez güneş ışığından gelen enerjiyi kullanmakta, kemosentez ise kimyasal tepkimelerden sağlanan enerjiyle işlemektedir. Dünya'daki canlılığın büyük çoğunluğu, karasal ve sucul üreticilerin fotosentezle ürettiği organik besinler aracılığıyla Güneş'e dayalı besin zincirlerinde buluşmaktadır.
Fotosentez yeşil bitkilerde ve bazı bakterilerde görülmektedir. Bu süreç yeterli güneş ışığının ulaştığı aydınlık ortamlarda gerçekleşmektedir. Bitkilerin havadaki karbondioksiti (CO₂) indirgeyerek karbonhidrat yapısına katmasında kullanılan enerjinin nihai kaynağı Güneş'tir.[4] Böylece ışıkla ulaşan fiziksel enerji, fotosentetik tepkimelerle organik besin moleküllerinin kimyasal yapısına aktarılmakta ve besin zincirindeki öteki canlıların da kullanabileceği kararlı bir biçime çevrilmektedir.
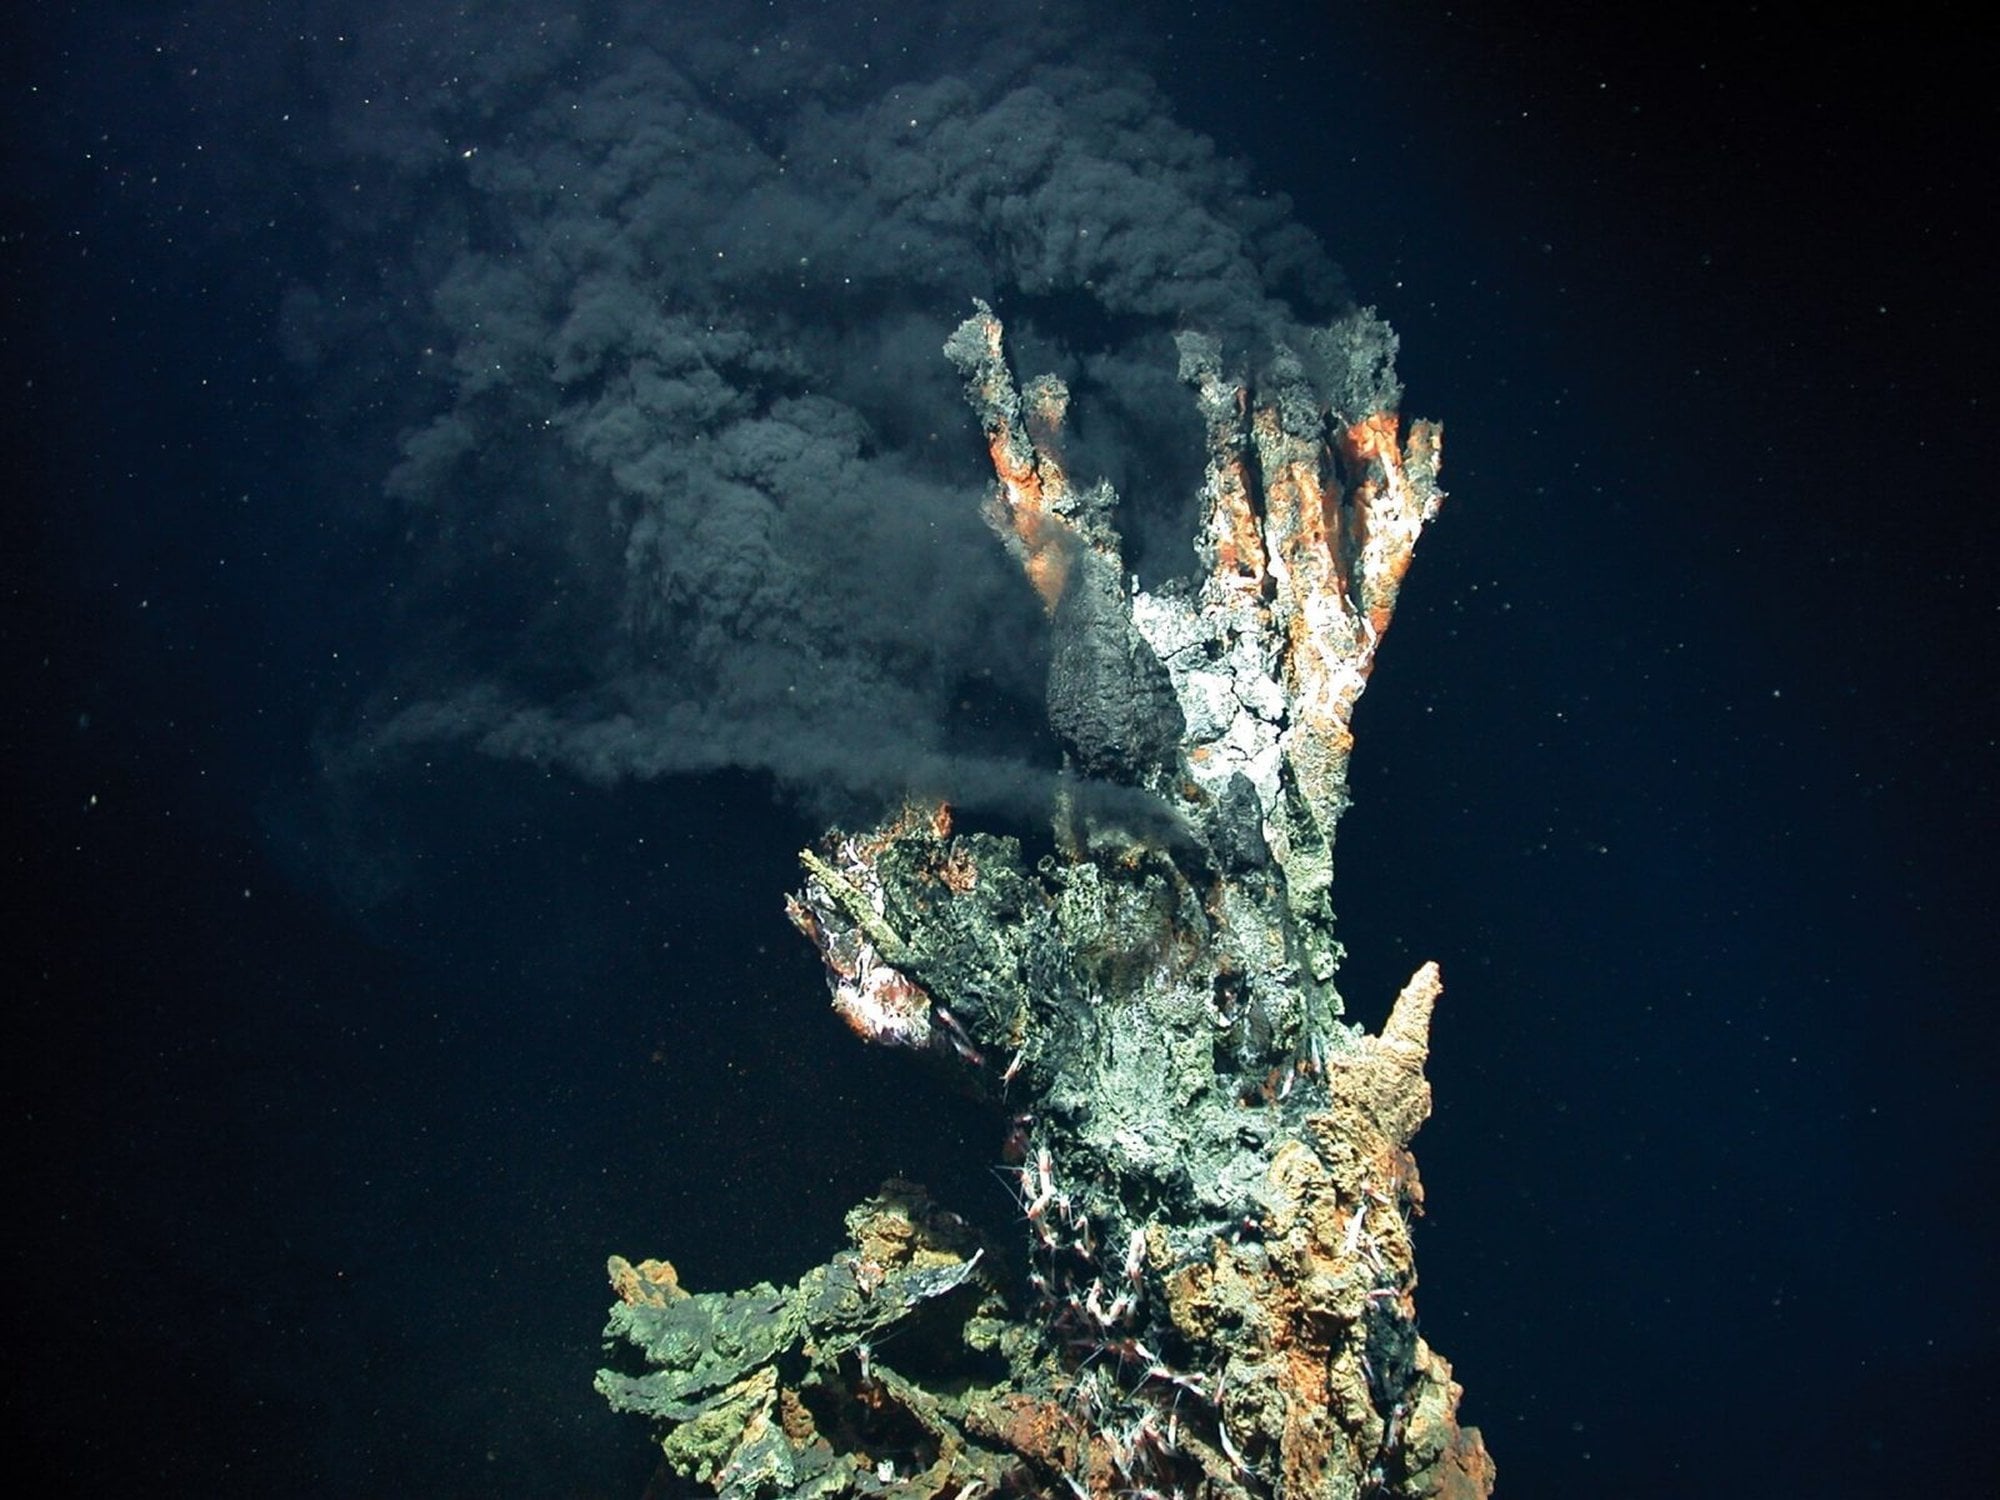
Fakat karanlık ekosistemler de canlılarla doludur. Güneş ışığının bulunmadığı ya da yetersiz kaldığı ortamlarda da yürüyebilen kemosentez, inorganik kimyasal tepkimelerden sağlanan enerjinin organik besin yapımında değerlendirilmesine dayanmaktadır. Okyanus tabanındaki hidrotermal bacalarda kemosentetik bakteriler yaşamaktadır. Bu bakteriler hidrojen sülfürü (H₂S) oksitleyerek kimyasal enerjiye ulaşmaktadır. Bu bakteri topluluklarına soğuk sızıntılar, karadaki kaplıcalar, balina leşleri ve batmış gemiler çevresinde de rastlanmaktadır.[12] İster fotosentezle ister kemosentezle üretilmiş olsun, besinlerde tutulan bu kimyasal enerjinin hücre içinde doğrudan kullanılabilir hale getirilmesi ise hücresel solunum süreçleriyle sağlanmaktadır ([hücresel solunum ayrıntısı](/24103)).
Metabolizma ve Enerji Akışı
Hücreye alınan enerjinin çok sayıda kimyasal tepkimeye nasıl dağıtıldığını anlamak için öncelikle bütün bu süreçleri kuşatan çatı kavramını tanımlamak gerekmektedir. Canlıların yaşamsal etkinliklerini sürdürmesini sağlayan kimyasal tepkimelerin tamamına metabolizma denilmektedir. Hücreye giren besin moleküllerinin işlenmesi, aşama aşama yıkılması ve yeni hücresel bileşenlerin yapımında değerlendirilmesi birbiriyle bağlantılı tek bir kimyasal ağın halkalarını oluşturmaktadır.
Ne var ki metabolik ağ içindeki tepkimelerin tamamı enerji bakımından aynı yönde çalışmamaktadır. Kimi tepkimeler karmaşık organik molekülleri daha küçük birimlere ayırarak enerji serbest bırakmaktadır. Kimi tepkimeler ise açığa çıkan bu enerjiyi kullanarak hücrenin büyüme ve onarım için gereksinim duyduğu yeni bileşikleri sentezlemektedir. Hücre içindeki kesintisiz enerji akışı, birinin ürettiğini diğerinin tükettiği bu yıkım ve yapım kollarının hassas dengesine dayanmaktadır.
Katabolizma ve Anabolizma
Metabolizmanın yıkım yönünü katabolizma oluşturmaktadır. Katabolizma, büyük molekülleri parçalayarak enerji açığa çıkaran veya başka tepkimeler için gerekli ara ürünleri sağlayan tepkimeleri kapsamaktadır.[1] Katabolik yollar kimyasal açıdan çoğunlukla oksidatif (yükseltgeyici) niteliktedir. Sözgelimi hücresel solunumda şeker ve yağ gibi besinlerin yıkılması, hücreye hem kullanılabilir enerji hem de küçük karbon iskeletleri sağlamaktadır.
Öte yandan metabolizmanın yapım yönüne anabolizma veya biyosentez (İng: "biosynthesis") adı verilmektedir. Anabolizma, daha küçük yapıtaşlarından hücreye özgü karmaşık moleküllerin oluşturulmasıdır. Katabolizmanın tersine anabolik yollar çoğunlukla indirgenme tepkimelerine dayanmakta ve ilerleyebilmek için dışarıdan enerji girdisine ihtiyaç duymaktadır. Küçük yapıtaşlarından büyük hücresel polimerlerin üretilmesi bu biyosentez süreçlerinin belirgin bir örneğidir.
Katabolizma sırasında besinlerin parçalanmasıyla enerji açığa çıkmaktadır. Ancak açığa çıkan enerjinin tümü hücrenin enerji taşıyıcı moleküllerine aktarılamamaktadır. ATP sentezinde tutulamayan enerjinin büyük bir kısmı doğrudan ısı biçiminde ortama yayılmaktadır. Ağır fiziksel egzersiz sırasında vücut sıcaklığımız hissedilir ölçüde yükselmektedir. Bu yükselme de ısı yayılımının sonucudur.[4]
Tepkimelerin Yönü ve Serbest Enerji
Hücredeki bir tepkimenin katabolik süreçlerdeki gibi enerji mi bırakacağını yoksa anabolik süreçlerdeki gibi enerji mi isteyeceğini belirlemek için biyokimyada serbest enerji kavramına başvurulmaktadır. Bir tepkimedeki serbest enerji değişimi simgesiyle ifade edilmektedir. Bu nicelik iş yapmaya elverişli enerji farkıdır. Bir kimyasal tepkimede bu niceliğin artı ya da eksi işaretli olması, tepkimenin verilen sıcaklık ve basınç koşullarında hangi yöne doğru ilerleyeceğini gösteren temel termodinamik ölçüttür.
Üç temel termodinamik durum ayırt edilmektedir. Bir tepkime için değeri negatif olduğunda (), tepkimenin yazıldığı yönde ilerlemesi termodinamik açıdan elverişlidir. Eğer sıfıra eşitse (), ileri ve geri tepkime hızları birbirini dengelediğinden sistem net bir değişimin gerçekleşmediği denge durumundadır. Fakat pozitif olduğunda () tepkime verilen koşullarda kendiliğinden ileri yönde ilerlememekte, dolayısıyla ters yöndeki dönüşüm termodinamik olarak tercih edilmektedir.[6]
Farklı tepkimeleri ortak bir zeminde karşılaştırabilmek için biyokimyacılar standart bir başvuru ölçütü tanımlamıştır. Biyokimyasal standart serbest enerji değişimi simgesiyle gösterilmekte ve bu değer hesaplanırken tüm maddelerin standart koşullarda bulunduğu, ortamın pH değerinin ise 7,0 olduğu kabul edilmektedir. Bir tepkimenin değeri hücredeki gerçek koşullarda elverişliliği tek başına belirlememektedir, çünkü gerçek standart değerin yanında ürünlerin ve tepkimeye giren maddelerin anlık derişimlerine de bağlıdır.
Derişim oranları tepkimenin yönünü doğrudan değiştirebilmektedir. Ortamdaki ürünlerin tepkimeye girenlere oranı arttıkça hesaptaki doğal logaritma terimi büyümekte ve bunun sonucunda değeri daha pozitif hale gelmektedir.[6] Tepkimeleri hızlandıran enzimlerin bu süreçteki rolü hakkında sık düşülen bir yanılgıyı da düzeltmek gerekmektedir. Enzimler denge sabitini değiştirmemektedir. Dengedeki ürün ve giren oranına da dokunmayan bir enzim, termodinamik açıdan elverişsiz () olan bir tepkimeyi tek başına elverişli kılamamakta, sadece zaten elverişli olan bir tepkimenin dengeye ulaşma hızını artırmaktadır.
ATP Nedir?
Termodinamik açıdan elverişli tepkimeler ile enerji bekleyen tepkimeler arasındaki moleküler köprüyü adenozin trifosfat, yani kısaca ATP kurmaktadır. Azotlu bir organik baz, beş karbonlu bir şeker ve en az bir fosfat grubundan kurulu kimyasal yapı birimlerine nükleotit denilmektedir. Bir nükleotit olan ATP molekülü de hücresel enerji akışının tam merkezinde yer almaktadır.
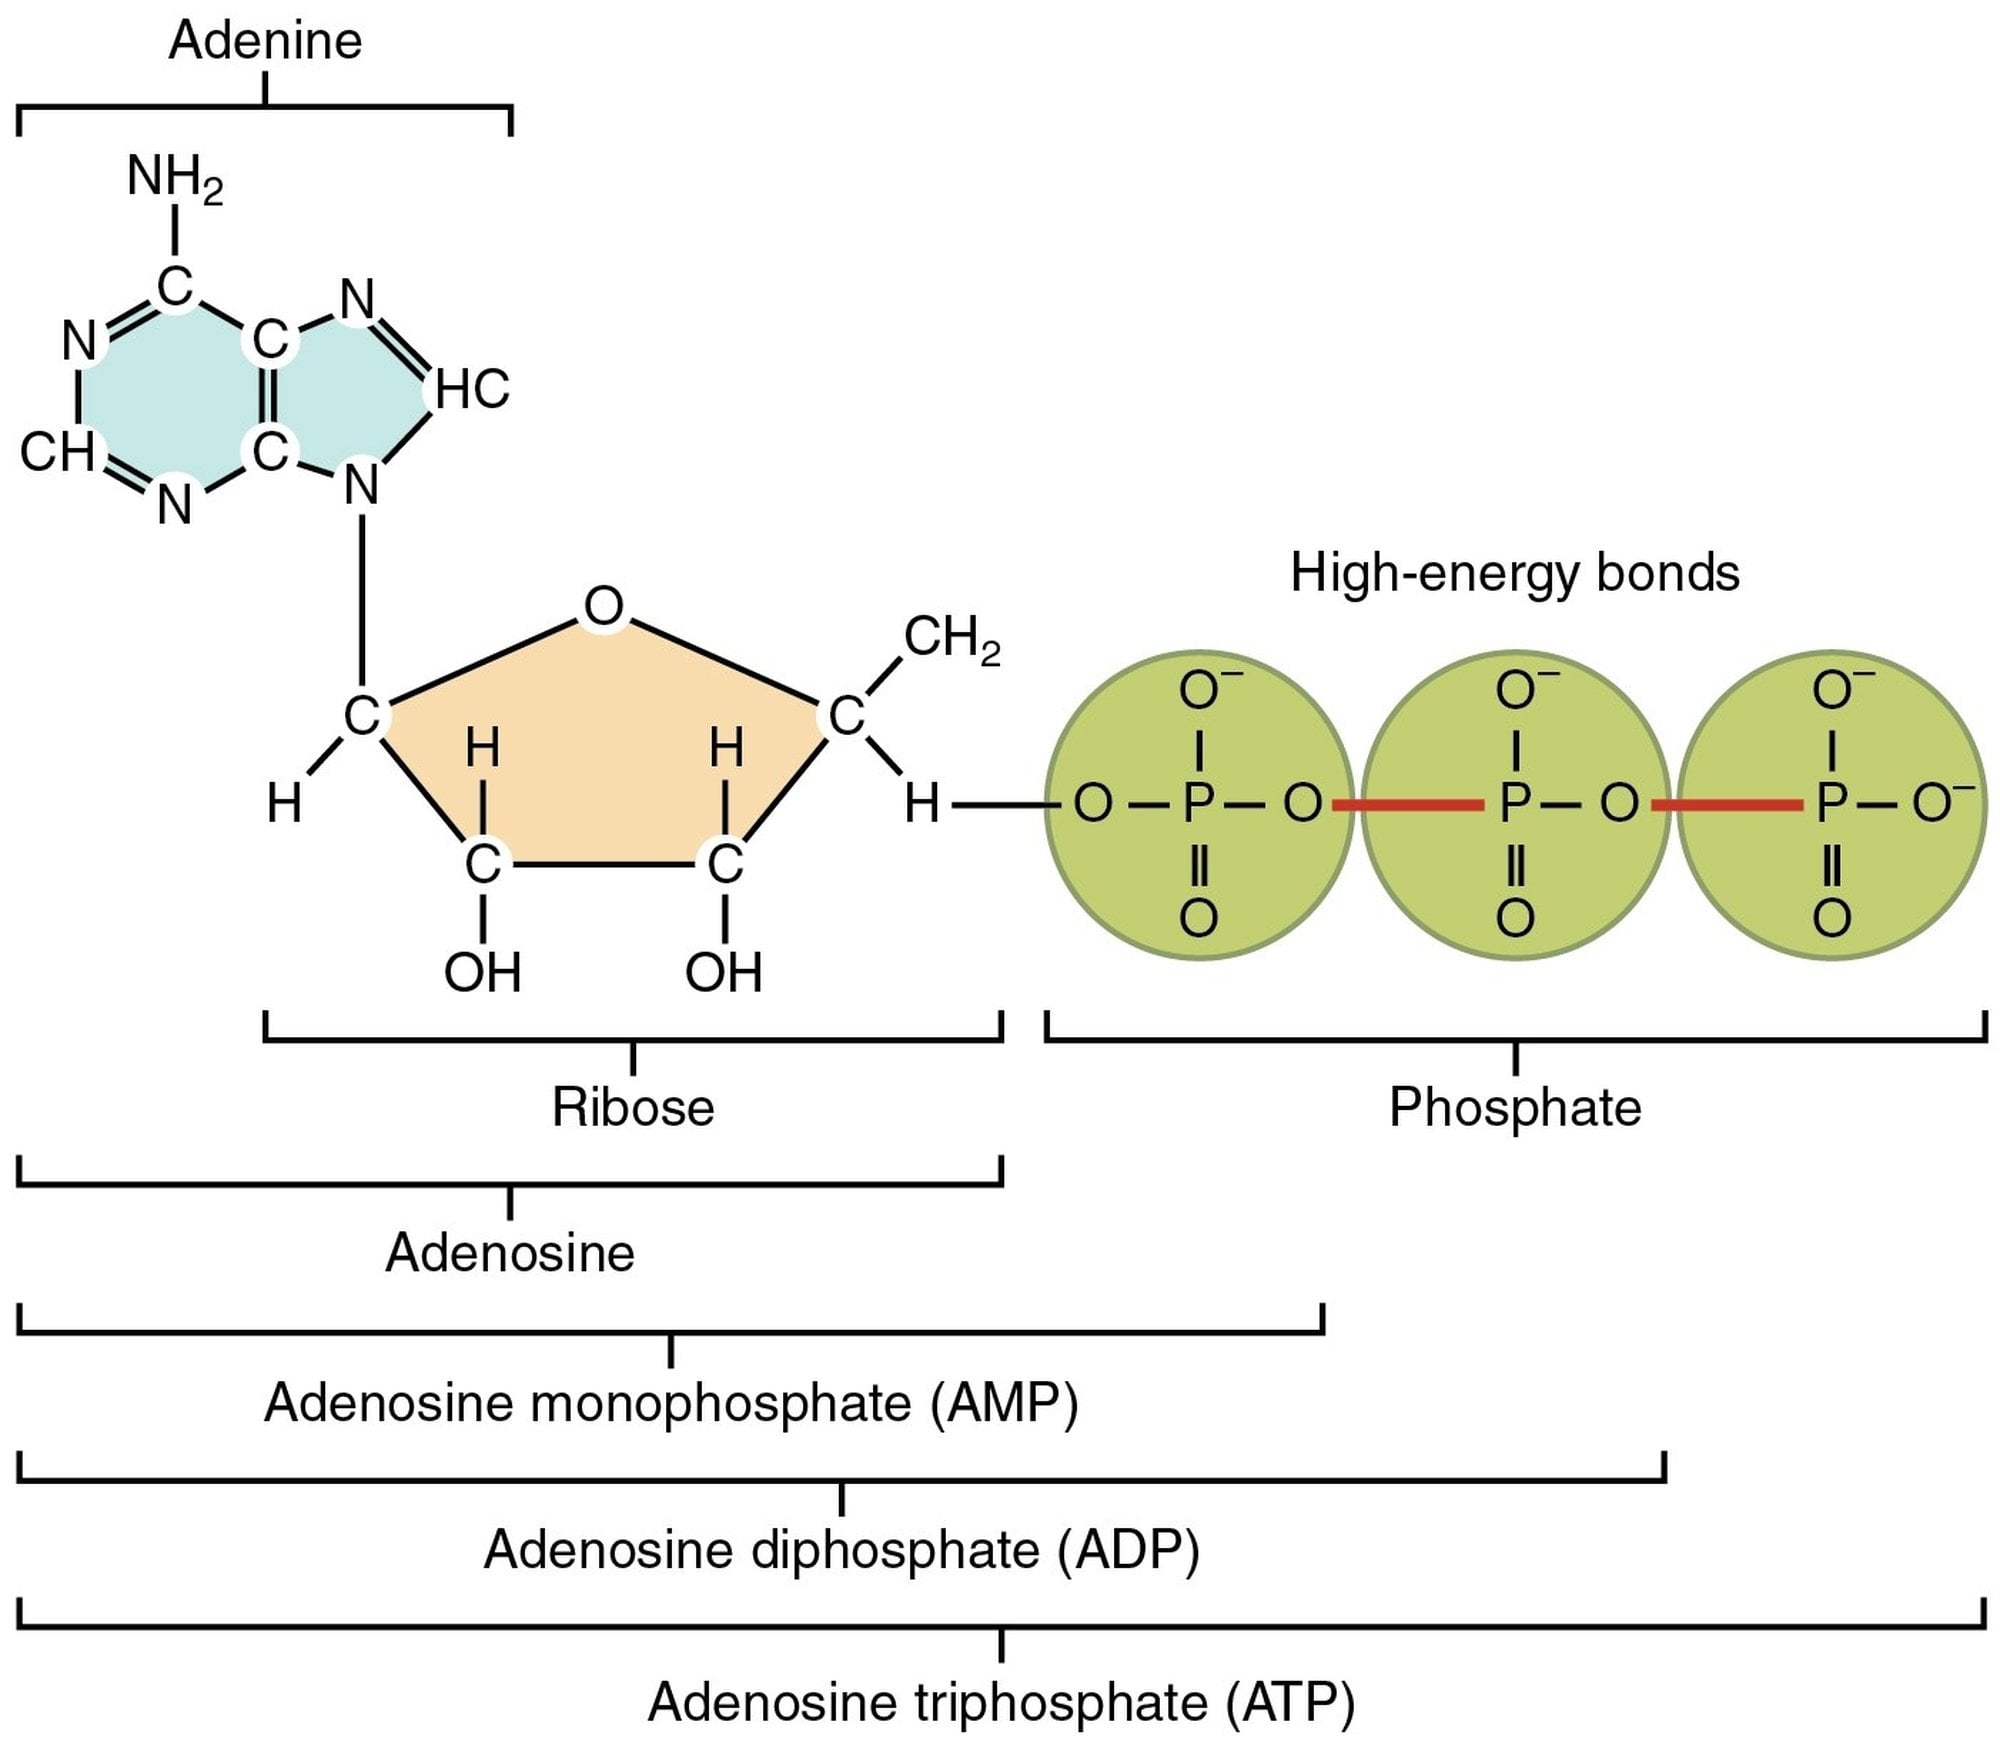
Üstelik bakterilerden bitkilere, mantarlardan hayvanlara kadar canlıların neredeyse tamamında ortak olarak kullanılan bu nükleotit, genetik bilginin taşındığı nükleik asit yapıtaşlarıyla doğrudan akrabadır. Yapısındaki atom gruplarının dizilimi, fosfat zincirindeki negatif yük dağılımı ve kimyasal bağların niteliği, bu bileşiğin neden hücresel grup ve enerji aktarımında başrolü üstlendiğini açıkça ortaya koymaktadır.
Adenin, Riboz ve Üç Fosfat
ATP molekülünün üç temel yapı bileşeni adenin, riboz (İng: "ribose") ve üç adet fosfat grubudur. Merkezde beş karbonlu riboz şekeri durmaktadır. Adenin azotlu bir organik bazdır. Bu adenin halkası riboz şekerine glikozit bağı (İng: "glycosidic bond") ile bağlanmakta, böylece fosfat içermeyen baz ve şeker ikilisinin birleşmesiyle adenozin adı verilen nükleozit birimi ortaya çıkmaktadır.
Şekerin diğer ucunda ise trifosfat (üçlü fosfat) zinciri bulunmaktadır. Bu zincir riboz molekülüne fosfoester bağı aracılığıyla tutunmaktadır. Eğer adenozin yapısına üç yerine iki fosfat grubundan oluşan bir difosfat bağlanırsa adenozin difosfat, yani kısaca ADP meydana gelmektedir. Fosfat grupları arasındaki bu bağlara geleneksel olarak yüksek enerjili fosfat bağı denilmektedir. Biyokimyacı Fritz Lipmann, hidroliz ya da grup aktarımı tepkimelerinde kırılan söz konusu bağları belirtmek amacıyla 1941 yılında dalgalı "~" işaretini kullanıma sunmuştur.
ATP molekülü hücre içinde sadece enerji işlerinde görev almamaktadır. Bu nükleotit aynı zamanda RNA sentezinde doğrudan kullanılan temel monomerlerden (zincir yapıtaşlarından) biridir. ATP molekülü sitozolde çoğunlukla serbest halde bulunmamaktadır. Bu molekül çoğunlukla magnezyum iyonlarına (Mg²⁺) bağlı biçimde yer almaktadır. Mg²⁺ iyonları eksi yüklü fosfat zinciriyle etkileşime girerek yapının kararlılığını desteklemektedir.[15] Ayrıca hücre içindeki fosfatlar ve fosforillenmiş moleküller, ortamın pH düzeyine bağlı olarak çeşitli iyonlaşma basamaklarının karışımı şeklinde bulunmaktadır. Basitleştirilmiş ATP tepkime denklemlerinde ise gösterim kolaylığı açısından bu iyon biçimleri tek tek yazılmamaktadır.
Hücrenin Enerji Para Birimi
Yapısal ayrıntılarını incelediğimiz ATP, hücrenin enerji tüketen etkinliklerinin büyük çoğunluğuna güç sağlayan başlıca enerji para birimidir. Ekonomide farklı emek ve ürünlerin her defasında doğrudan takas edilmek yerine ortak bir para birimi üzerinden alınıp satılması gibi, hücrede de çeşitli kaynaklardan elde edilen enerji bu ortak molekül üzerinden el değiştirmektedir. ATP enerjinin geçici olarak tutulmasına aracılık etmektedir. Bu molekül metabolizmada fosfat gruplarının alıcı moleküllere aktarılmasına da aracılık etmektedir. Bu kesintisiz çevrime ATP döngüsü denilmektedir.
Fosfat aktarım potansiyeli ölçeğindeki ara konumu, ATP molekülünü enerji açığa çıkaran süreçlerle enerji tüketen tepkimeleri birbirine bağlayan elverişli bir eşleşme aracı haline getirmektedir. NADH ve NADPH ise elektron taşıyarak görev yapan başka türden eşleşme araçlarıdır.
ATP hücrede enerji taşıyan tek nükleotit de değildir. Örneğin hücredeki protein sentezinde gereken önemli enerji kaynaklarından biri guanozin trifosfat (GTP) molekülüdür. Benzer biçimde sitidin trifosfat (CTP) hücre zarındaki gliserofosfolipitlerin yapımında, üridin trifosfat (UTP) ise karbonhidratların depolanma biçimi olan glikojenin sentezinde kullanılmaktadır. Bununla birlikte söz konusu nükleotit trifosfatlar içinde en iyi bilineni ve hücrede en bol bulunanı ATP molekülüdür.
ATP'nin Keşif Öyküsü
Biyolojinin bu temel molekülünün tanımlanması ve çalışma ilkesinin aydınlatılması yaklaşık yetmiş yıllık bir bilimsel çabanın ürünüdür. İlk adımı 1929 yılında bu molekülü keşfeden Alman kimyager Karl Lohmann atmıştır. Bu keşif, molekülün hücresel süreçlerdeki rolünü ve çalışma biçimini aydınlatacak araştırmalara zemin hazırlamıştır.[13]
Keşfin ardından bu bileşiğin hücrede nasıl sentezlendiği sorusu uzun yıllar tartışılmıştır. İngiliz biyokimyacı Peter Mitchell kemiozmotik hipotezi 1961 yılında ortaya atmıştır. Mitchell, 1978 yılındaki Nobel konuşmasında bu ilk temel önermelerin 1961 yılında büyük ölçüde varsayımsal kaldığını ve henüz deneysel olarak incelenmediğini ifade etmiştir.[14] Bu kuramsal çerçeve izleyen yıllarda deneysel çalışmalarla sınanmıştır.
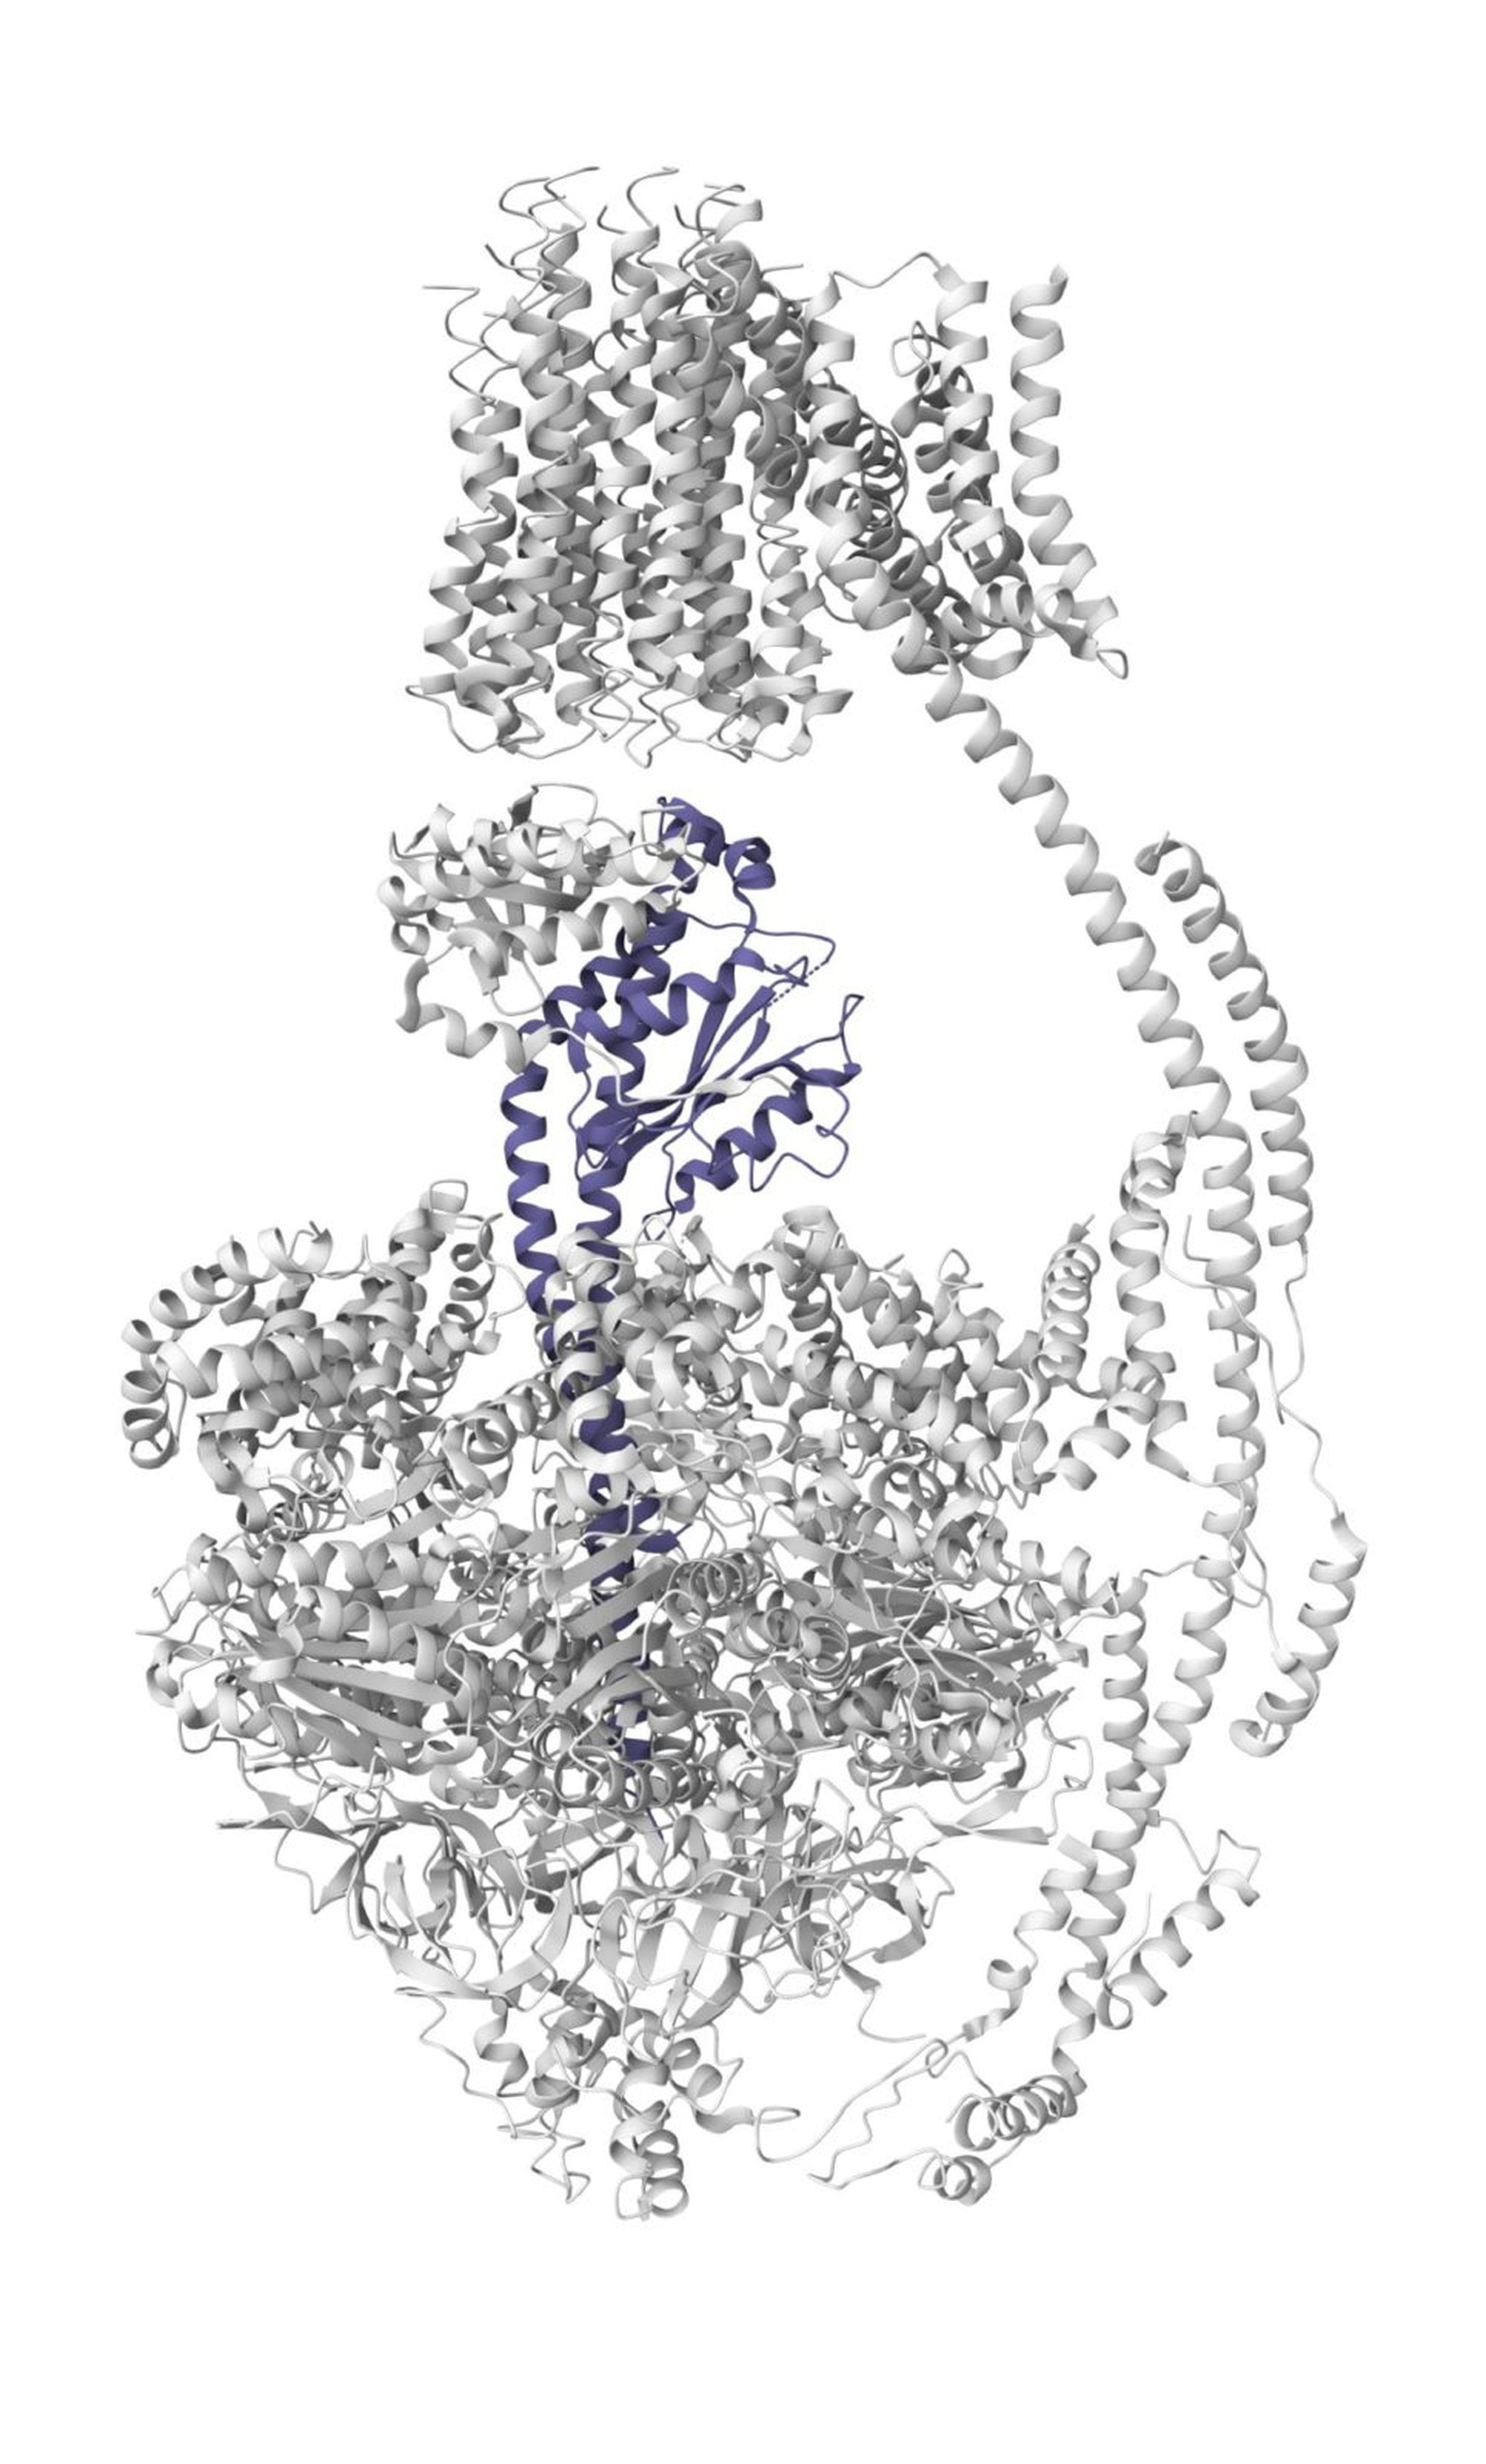
Bu enerji para birimini doğrudan üreten enzimatik düzeneğin atom düzeyinde çözülmesi ise yirminci yüzyılın son çeyreğine kadar sürmüştür. ATP sentezinin altında yatan enzimatik mekanizmayı açıkladıkları için 1997 Nobel Kimya Ödülü'nün yarısı Paul D. Boyer ve John E. Walker'a verilmiştir.[13] Boyer ve Walker'ın araştırmaları, hücresel enerji dönüşümünün kağıt üzerindeki soyut bir tepkime denklemiyle sınırlı kalmayıp zara yerleşik dönen bir moleküler makine üzerinden işlediğini açıklamıştır.
ATP Hidrolizi ve Enerji Eşleşmesi
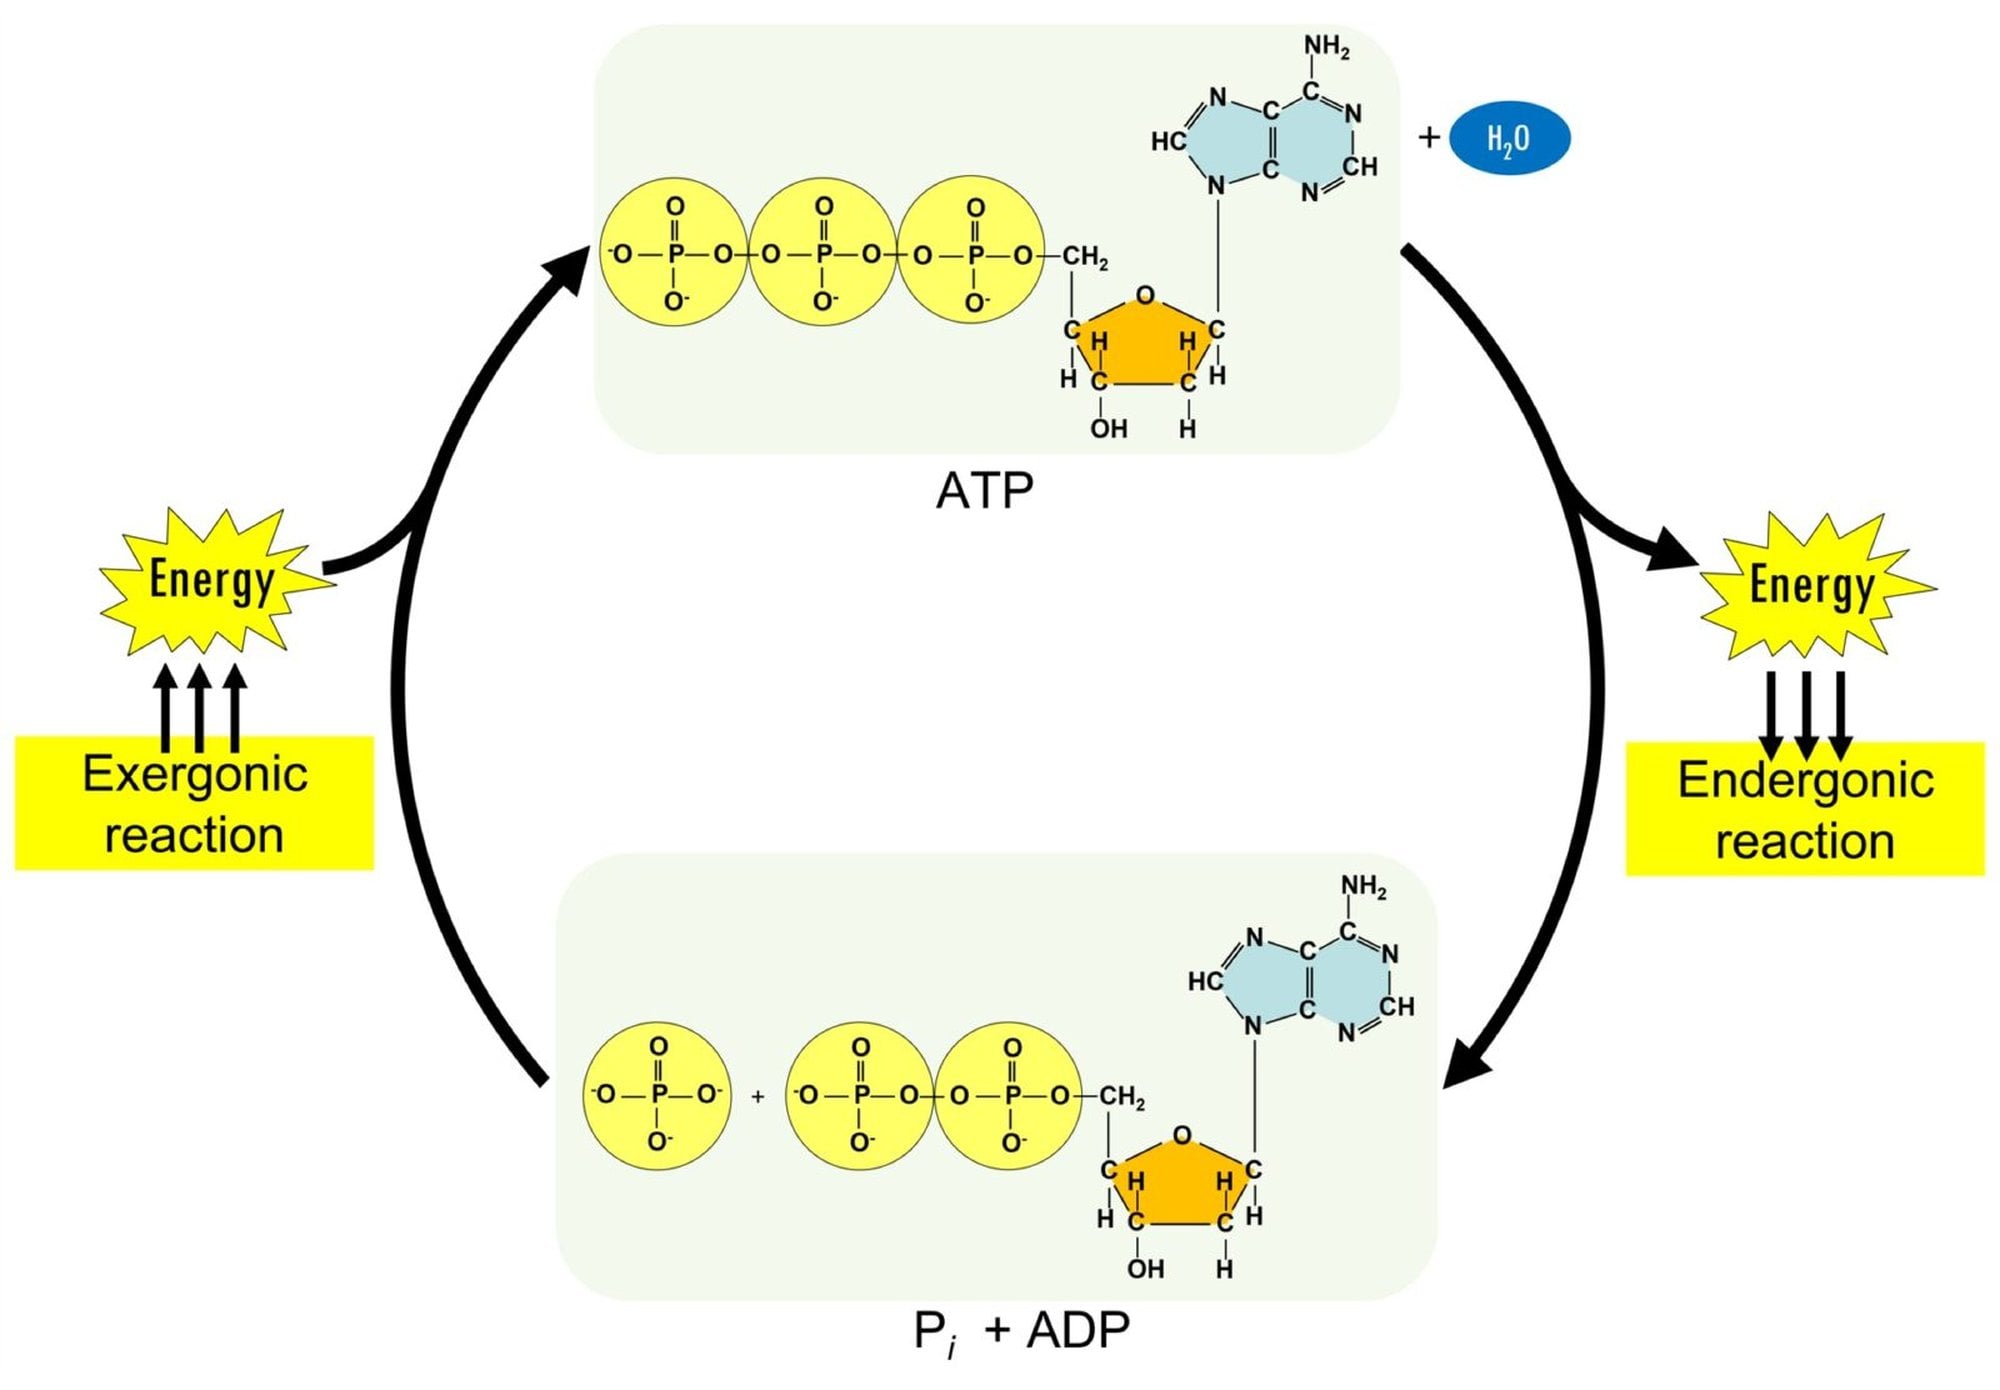
Biyokimyada termodinamik açıdan elverişli bir tepkimenin elverişsiz bir tepkimeyi ilerletmesi düzeneğine enerji eşleşmesi (İng: "energy coupling") adı verilmektedir. Bu düzenekte ATP ve NAD(P)H gibi aracı moleküller, enerji açığa çıkaran süreçleri enerji bekleyen biyosentez adımlarına doğrudan bağlamaktadır. Hücre içindeki yapım işlerinin ve mekanik hareketlerin neredeyse tamamı bu ortak ilkeyle yürütülmektedir. Bütün bu aktarım adımlarında enerji bir tepkimeden diğerine ortak ara ürünler üzerinden taşınmaktadır.
Ancak bu aktarımın işleyişi anlatılırken sıklıkla eksik bir çerçeve çizilmektedir. Eğer ATP hidrolizi başka bir hücresel işe bağlanmadan tek başına gerçekleşseydi, açığa çıkan enerji sadece ortamın sıcaklığını artırırdı. Bu nedenle enerji eşleşmesini açıklarken sadece "ATP parçalanır ve açığa çıkan ısı enerjisi kullanılır" demek fiziksel açıdan yetersizdir, çünkü izotermal koşullarda çalışan hücreler sıcaklık farkından iş üretememektedir. Hücre bir buhar makinesi değildir. Aksine biyolojik sistemler, kimyasal grupları doğrudan alıcı moleküllere aktararak düzenli iş yapmaktadır.
Hidroliz ve Açığa Çıkan Serbest Enerji
Enerji aktarımının temel referans noktası, ATP molekülünün su katılarak kimyasal bağlarının koparılması, yani hidroliz tepkimesidir. Biyokimyasal hesaplamalarda bu dönüşüm ortak bir karşılaştırma ölçütü sağlamaktadır. ATP hidrolizinin basitleştirilmiş kimyasal denklemi şu şekildedir:
Bu denklemde simgesi inorganik fosfat grubunu göstermektedir. Hücreler çok çeşitli ATPaz enzimleri barındırmaktadır, çünkü her bir ATPaz ATP'nin hidrolizini katalizleyerek açığa çıkan serbest enerjiyi belirli bir enerji tüketen tepkimeye bağlamaktadır.[2] Standart biyokimyasal hesaplamalarda ATP'nin ADP ve inorganik fosfata hidrolizi için standart serbest enerji değişimi olarak alınmaktadır. Hücre içindeki pH koşullarında fosfatlı bileşikler farklı iyonlaşma biçimlerinin karışımı halinde bulunduğundan, bu basitleştirilmiş denklem bütün iyon türlerini ayrı ayrı göstermemektedir.
Bu hidroliz tepkimesini termodinamik açıdan elverişli kılan başlıca kimyasal etkenler nelerdir? İlk olarak ATP'nin doğrusal polifosfat zincirinde birbirine çok yakın konumlanan dört negatif yük yer almakta, dolayısıyla fosfat grupları arasındaki bu aynı işaretli yükler birbirini güçlü biçimde itmektedir. Uçtaki fosfat grubu koptuğunda bu elektrostatik gerilimin önemli bir bölümü ortadan kalkmaktadır. İkinci olarak ise ayrılan hidroliz ürünlerinin su molekülleriyle ATP'ye kıyasla daha iyi solvatlanması, yani çözücüyle daha elverişli etkileşmesi serbest enerji düşüşüne doğrudan katkı yapmaktadır.
Üçüncü temel etken ürünlerin elektronik yapısıyla ilgilidir. Ortaya çıkan ADP ve gruplarının elektronlarını oksijen atomları üzerinde dağıtarak rezonans melezleri oluşturması, hidrolizin negatif serbest enerji değişimine güçlü katkı vermektedir. Başlangıçtaki bütünleşik polifosfat zincirinde elektron paylaşımı daha sınırlı kalmaktadır, oysa kopma sonrasında her iki parça da rezonans etkisiyle kararlılaşmaktadır. Böylece elektrostatik itmenin azalması, elverişli solvatlanma ve rezonans kararlılığı bir araya gelerek güçlü bir itici fark yaratmaktadır.
Ne var ki ölçümü bütün bileşenlerin eşit ve 1 M derişimde bulunduğu standart referans durumuna aittir. Oysa canlı sitoplazmada ATP, ADP ve milimolar ölçeğinde ve birbirinden çok farklı miktarlarda tutulmaktadır. Bu nedenle hücre içindeki gerçek değeri belirlenirken mevcut nükleotit ve fosfat havuzlarının anlık oranları hesaba katılmaktadır. Ortaya çıkan sayısal fark oldukça büyüktür.
Çözümlü örnek 1: Hücre içi derişimlerde ATP hidrolizinin gerçek serbest enerji değişimi kaçtır?
Verilenler: Bir hücrede ölçülen , ve derişimleri, standart değeri ve 25 °C sıcaklık için çarpanı.[8]
İstenen: Verilen hücresel derişimlerde ATP hidrolizinin gerçek serbest enerji değişimi, yani .
1. adım: Milimolar (mM) cinsinden verilen ATP derişimi, standart hesaplama birimi olan molara (M) geçmek amacıyla dönüşüm çarpanıyla çarpılmaktadır:
2. adım: Aynı birim dönüşümüyle ve değerleri elde edildiğinden ürünlerin tepkimeye girene oranı hesaplanmaktadır:
3. adım: Gerçek serbest enerji değişimini bulmak için standart serbest enerji değerine derişim oranının doğal logaritma terimi eklenmektedir:
Sonuç: Hücre içindeki gerçek derişimlerle 25 °C sıcaklıkta ATP hidrolizi için olarak hesaplanmaktadır ve hücredeki gerçek değer standart değerden belirgin biçimde daha negatiftir.
Bulunan değeri hücre fizyolojisi açısından belirleyici bir üstünlük sağlamaktadır. Sitoplazmadaki ATP havuzu yıkım ürünlerine kıyasla sürekli yüksek tutulduğundan, birim ATP başına kullanılabilir serbest enerji miktarı standart tablo değerinin oldukça üzerine çıkmaktadır. Yıkım ürünlerinin hücrede birikmesi bu elverişli farkı daraltacağından metabolik denetim nükleotit oranını dar sınırlarda korumaktadır.
Glikozun Fosforilasyonu
ATP'nin sağladığı serbest enerji farkının elverişsiz bir tepkimeyi nasıl ilerlettiğini görmek için hücreye yeni giren bir şeker molekülünün işlenmesine bakılabilir. Bir moleküle fosfat grubu eklenmesi işlemine fosforilasyon denilmektedir. Biyolojik tepkimelerde aktarılan bu işlevsel grup için daha kesin kimyasal terim ise fosforil grubudur. Bir şekere fosfat eklenmesi hücrede sık karşılaşılan bir başlangıç adımıdır, ancak tek başına ele alındığında enerji bakımından elverişli değildir ve gerçekleşmek için dışarıdan enerji girdisi gerektirmektedir.[5]
Standart koşullarda glikoz ile serbest inorganik fosfattan glikoz-6-fosfat oluşturulmasının kimyasal denklemi şu biçimde yazılmaktadır:
Bu tepkimenin standart serbest enerji değişimi düzeyindedir. İşaret pozitif olduğundan glikoz ve serbest fosfat sulu ortamda kendi haline bırakıldığında kendiliğinden birleşmemektedir. Katalizörler denge sabitini ya da dengedeki ürün ve giren dağılımını değiştiremediğinden, ortama sadece enzim eklenmesi bu engeli aşmaya yetmemektedir. Bu nedenle hücreler enerji engelini aşmak için ATP kullanarak şeker fosforilasyonunu ileri yönde yürütmektedir.
Çözümlü örnek 2: Glikozun ATP ile fosforillenmesinde net standart serbest enerji değişimi kaçtır?
Evrim Ağacı ürünlerinden haberdar mısınız?

Verilenler: Glikoza inorganik fosfat eklenmesinin olan standart serbest enerji değişimi ve ATP hidrolizinin olan standart serbest enerji değişimi.
İstenen: Eşleşmiş tepkimenin net standart serbest enerji değişimi () ve tepkimenin termodinamik elverişliliği.
1. adım: Eşleşmiş tepkimenin net standart serbest enerji değişimini bulmak için iki bileşen tepkimenin standart serbest enerji değişimleri toplanmaktadır:
Sonuç: Net standart serbest enerji değişimi çıkmaktadır ve bu değer negatif olduğundan eşleşmiş tepkime standart koşullarda termodinamik olarak elverişlidir.
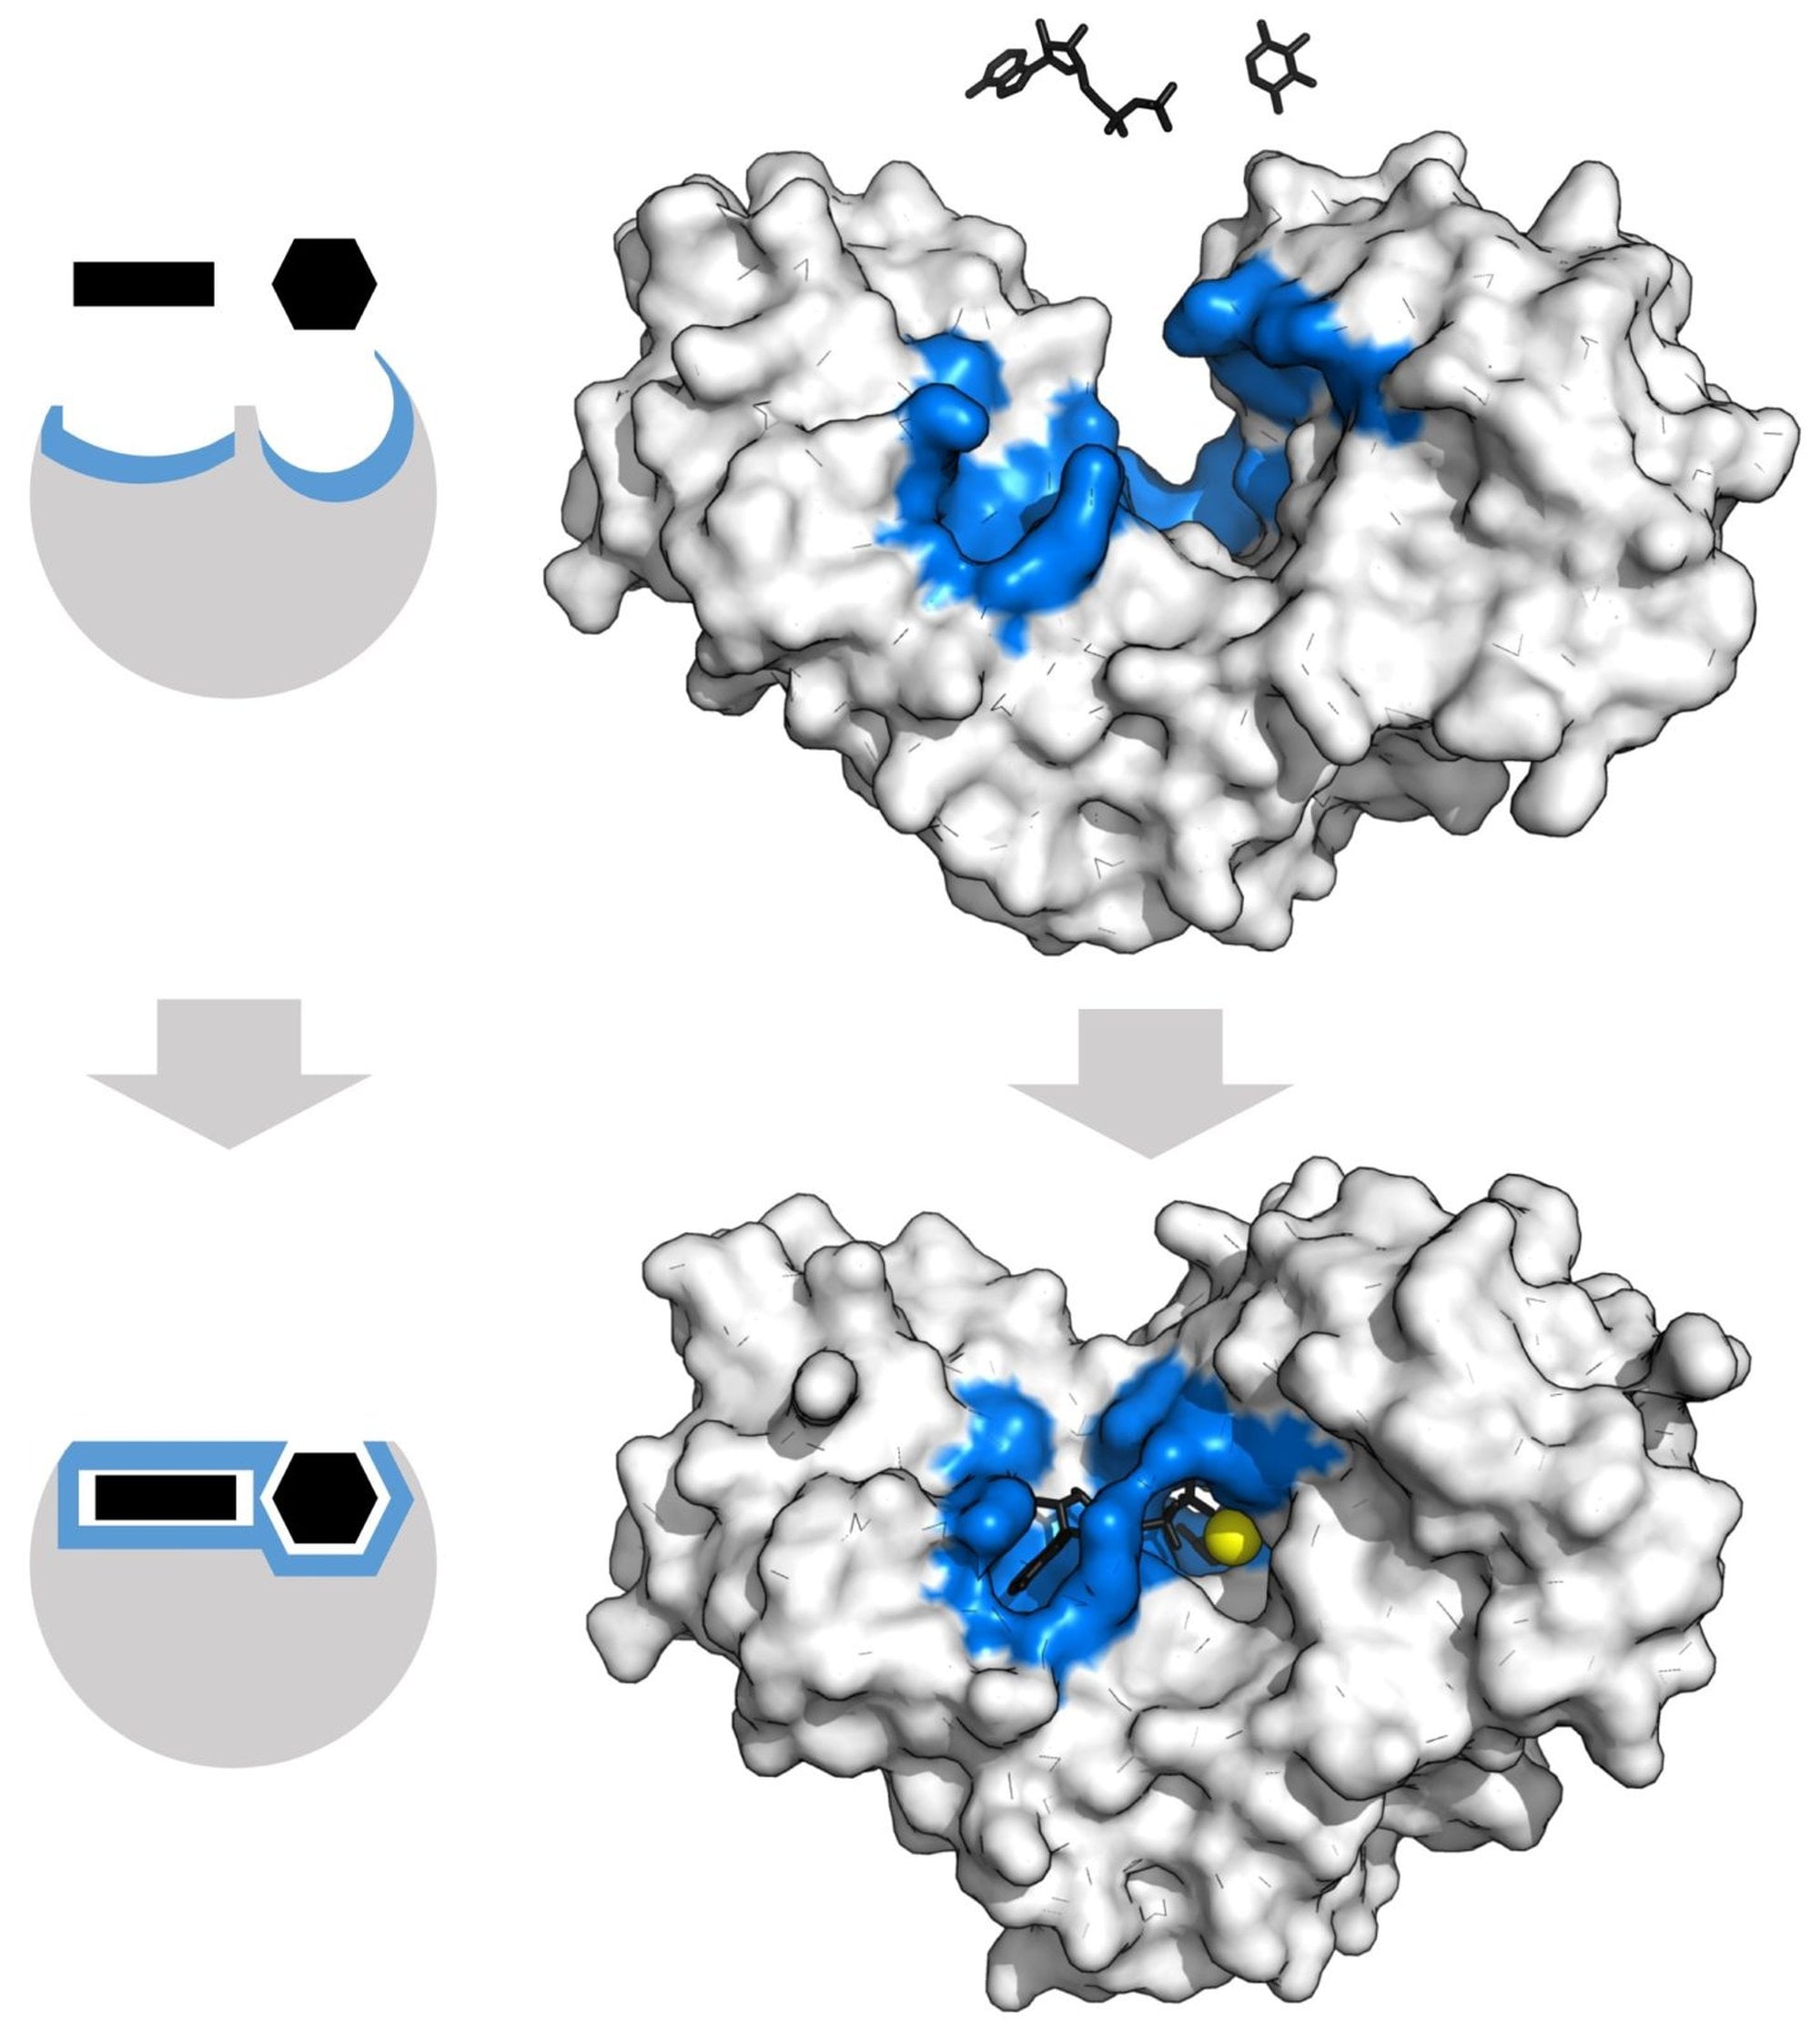
Sayısal toplama işlemi kağıt üzerinde iki ayrı tepkimenin ardışık birleşimi gibi görünmektedir. Oysa enzim üzerindeki gerçek mekanizma çok daha inceliklidir. Enerji eşleşmesinde görev alan bir enzim, hem ATP gibi yüksek aktarım potansiyelli bir molekülü hem de aynı tepkimenin diğer substratlarını aktif bölgesinde birlikte bağlamaktadır.[5] Örneğin heksokinaz enzimi, glikoz ile ATP'yi aynı katalitik cepte buluşturarak glikozun glikoz-6-fosfata dönüşmesini katalizlemektedir.
Fakat glikozun ATP ile fosforillenmesinde önce ATP'nin suya hidroliz olduğu ve ardından açığa çıkan serbest fosfatla ayrı bir eklenme yaşandığı sanılmamalıdır. Kinazların, diğer adıyla fosfotransferazların katalizlediği bu tepkimede ATP'den alıcı moleküle doğrudan bir fosforil grubu aktarılmakta ve yeni bir fosfoester bağı kurulmaktadır. Enzim yüzeyinde gerçekleşen net tepkime şu şekildedir:
Görüldüğü üzere net tepkimede veya enzim mekanizmasında su (H₂O) ve serbest hiç yer almamaktadır. Bunun nedeni, heksokinaza glikoz bağlanmasının katalitik cebin kapanmasını tetiklemesi ve su moleküllerini aktif bölgeden dışarı itmesidir. ATP suyla değil sadece glikozla tepkimeye girmektedir.[8]
Öte yandan hücrede fosforillenmiş bir bileşikteki fosforil grubunun doğrudan suya aktarıldığı tepkimeler de bulunmaktadır. Böyle bir koparma işleminde alıcı molekül su olduğundan serbest inorganik fosfat () oluşmaktadır ve bu tür hidrolitik tepkimeleri kinazlar değil fosfataz enzimleri katalizlemektedir. Dolayısıyla kinazlar ile fosfatazlar farklı kimyasal yollar izlemektedir. Hücre her iki enzim ailesini ayrı ayrı denetleyerek metabolik akışı yönlendirmektedir.
ATP'nin Hücredeki Görevleri
Doğrudan fosforil aktarımı ya da kontrollü hidroliz eşleşmesiyle çalışan ATP, hücrenin neredeyse bütün yaşamsal işlerini beslemektedir. Üstelik bu molekül sadece enerji aktarım aracı olarak kalmamakta, genetik bilginin yazımı sırasında uzayan RNA zincirlerine katılan dört ribonükleotit monomerinden biri olarak da kullanılmaktadır. Böylece aynı bileşik hem biyoenerjetik işleyişte hem de nükleik asit polimerleşmesinde doğrudan görev almaktadır.
Enerji gerektiren hücresel süreçlerde ATP çoğunlukla hedef proteine bağlanarak veya ilgili proteini geçici biçimde fosforilleyerek iş görmektedir. Bu kimyasal müdahale proteinin üç boyutlu biçimini değiştirmektedir, hatta mekanik hareketten zar taşımacılığına kadar pek çok işlev doğrudan bu biçim değişimiyle yürütülmektedir. Başlıca görev alanları aşağıda sıralanmaktadır.
Amino asitlerin protein yapımına hazırlanmasında, özellikle her bir amino asidin kendi taşıyıcı RNA (tRNA) molekülüne kovalent olarak bağlanmasında ATP enerjisi tüketilmektedir. Suda çözünen moleküllerin ve yüklü iyonların hücre zarlarından derişim farkına karşı aktif taşınması doğrudan ATP gerektirmektedir. Örneğin sodyum ve potasyum ile kalsiyum taşıyan bazı ATPaz pompalarında protein üzerindeki bir aspartat kalıntısının fosforillenmesi, iyonların zardan karşı tarafa geçirilmesini sağlayan kritik biçim değişimini tetiklemektedir. Hücresel sinyalleşme ağlarında çeşitli hedef proteinlere fosfat grupları eklenmekte, böylece ilgili proteinlerin katalitik etkinliği hızla açılıp kapatılabilmektedir. Ökaryotik hücrelerdeki sillerin ve sperm kamçısı dahil olmak üzere kamçıların düzenli çırpınma hareketi doğrudan ATP tüketen mekanik etkinliklerdendir. Ateşböceği ve çeşitli deniz canlılarında görülen biyolüminesans, yani kimyasal enerjiyle ışık üretilmesi olayı da ATP bağımlı özel biyolojik süreçlere örnektir. Memelilerde ATP hücre dışında bir uyarı sinyali olarak da görev yapmakta, özellikle hasar gören hücrelerden doku aralığına salındığında inflamasyonu (iltihaplanmayı) ve ağrı duyusunu tetikleyebilmektedir.
Fosforilasyon Çeşitleri
Hücresel çalışmanın aksamaması için görev başında harcanan ATP moleküllerinin sürekli yeniden oluşturulması gerekmektedir. Bunun için yıkım ürünü olan ADP'ye yeniden bir fosfat grubu eklenmektedir. ADP'den ATP sentezinin basitleştirilmiş denklemi şu biçimde ifade edilmektedir:
Hidrolizin tam tersi yönündeki bu dönüşüm kendiliğinden ilerlememektedir, çünkü mol başına 7,3 kcal, yani standart koşullarda serbest enerji girdisi gerektirmektedir. Dolayısıyla ADP'ye doğrudan fosfat aktararak ATP sentezleyecek bir verici bileşiğin fosfat aktarım potansiyeli ATP'ninkinden daha yüksek olmalıdır. Hücrede bu şartı karşılayan başlıca ara ürünlerden biri fosfoenolpiruvat (PEP) molekülüdür. PEP'in piruvat ve fosfata dönüşmesindeki standart serbest enerji değişimi düzeyindedir, yani oldukça güçlü bir aktarım eğilimi taşımaktadır.
Çözümlü örnek 3: Fosfoenolpiruvattan ADP'ye fosfat aktarımıyla gerçekleşen sentezin enerji değişimi kaçtır?
Verilenler: Fosfoenolpiruvatın piruvata dönüşümündeki değeri ile ADP'nin fosforillenmesindeki enerji gereksinimi.
İstenen: Piruvat kinaz enziminin katalizlediği tepkimenin toplam enerji değişimi, yani .
1. adım: Fosfat vericisinin açığa çıkardığı enerji ile sentez basamağının gerektirdiği miktar birbiriyle toplanmaktadır:
Sonuç: Toplam değişim olarak hesaplanmaktadır ve değerin sıfırdan belirgin biçimde küçük çıkması, piruvat kinaz tepkimesinin ürünlere doğru güçlü biçimde ilerlediğini göstermektedir.
Bununla beraber bütün ATP molekülleri tek bir kimyasal aktarım yoluyla üretilmemektedir. Canlılarda ATP sentezi bağlamında kullanılan birincil enerji kaynağına ve hücresel düzeneğe göre üç temel fosforilasyon türü ayırt edilmektedir.[7]
Bu üç mekanizmadan ilki çözelti içindeki enzimlerin doğrudan grup aktarımına dayanmaktadır. Diğer iki mekanizma ise özelleşmiş biyolojik zarlarda kurulan proton farklarını mekanik ve kimyasal dönüşümle değerlendirmektedir. Üç fosforilasyon yolu aşağıda özetlenmektedir.
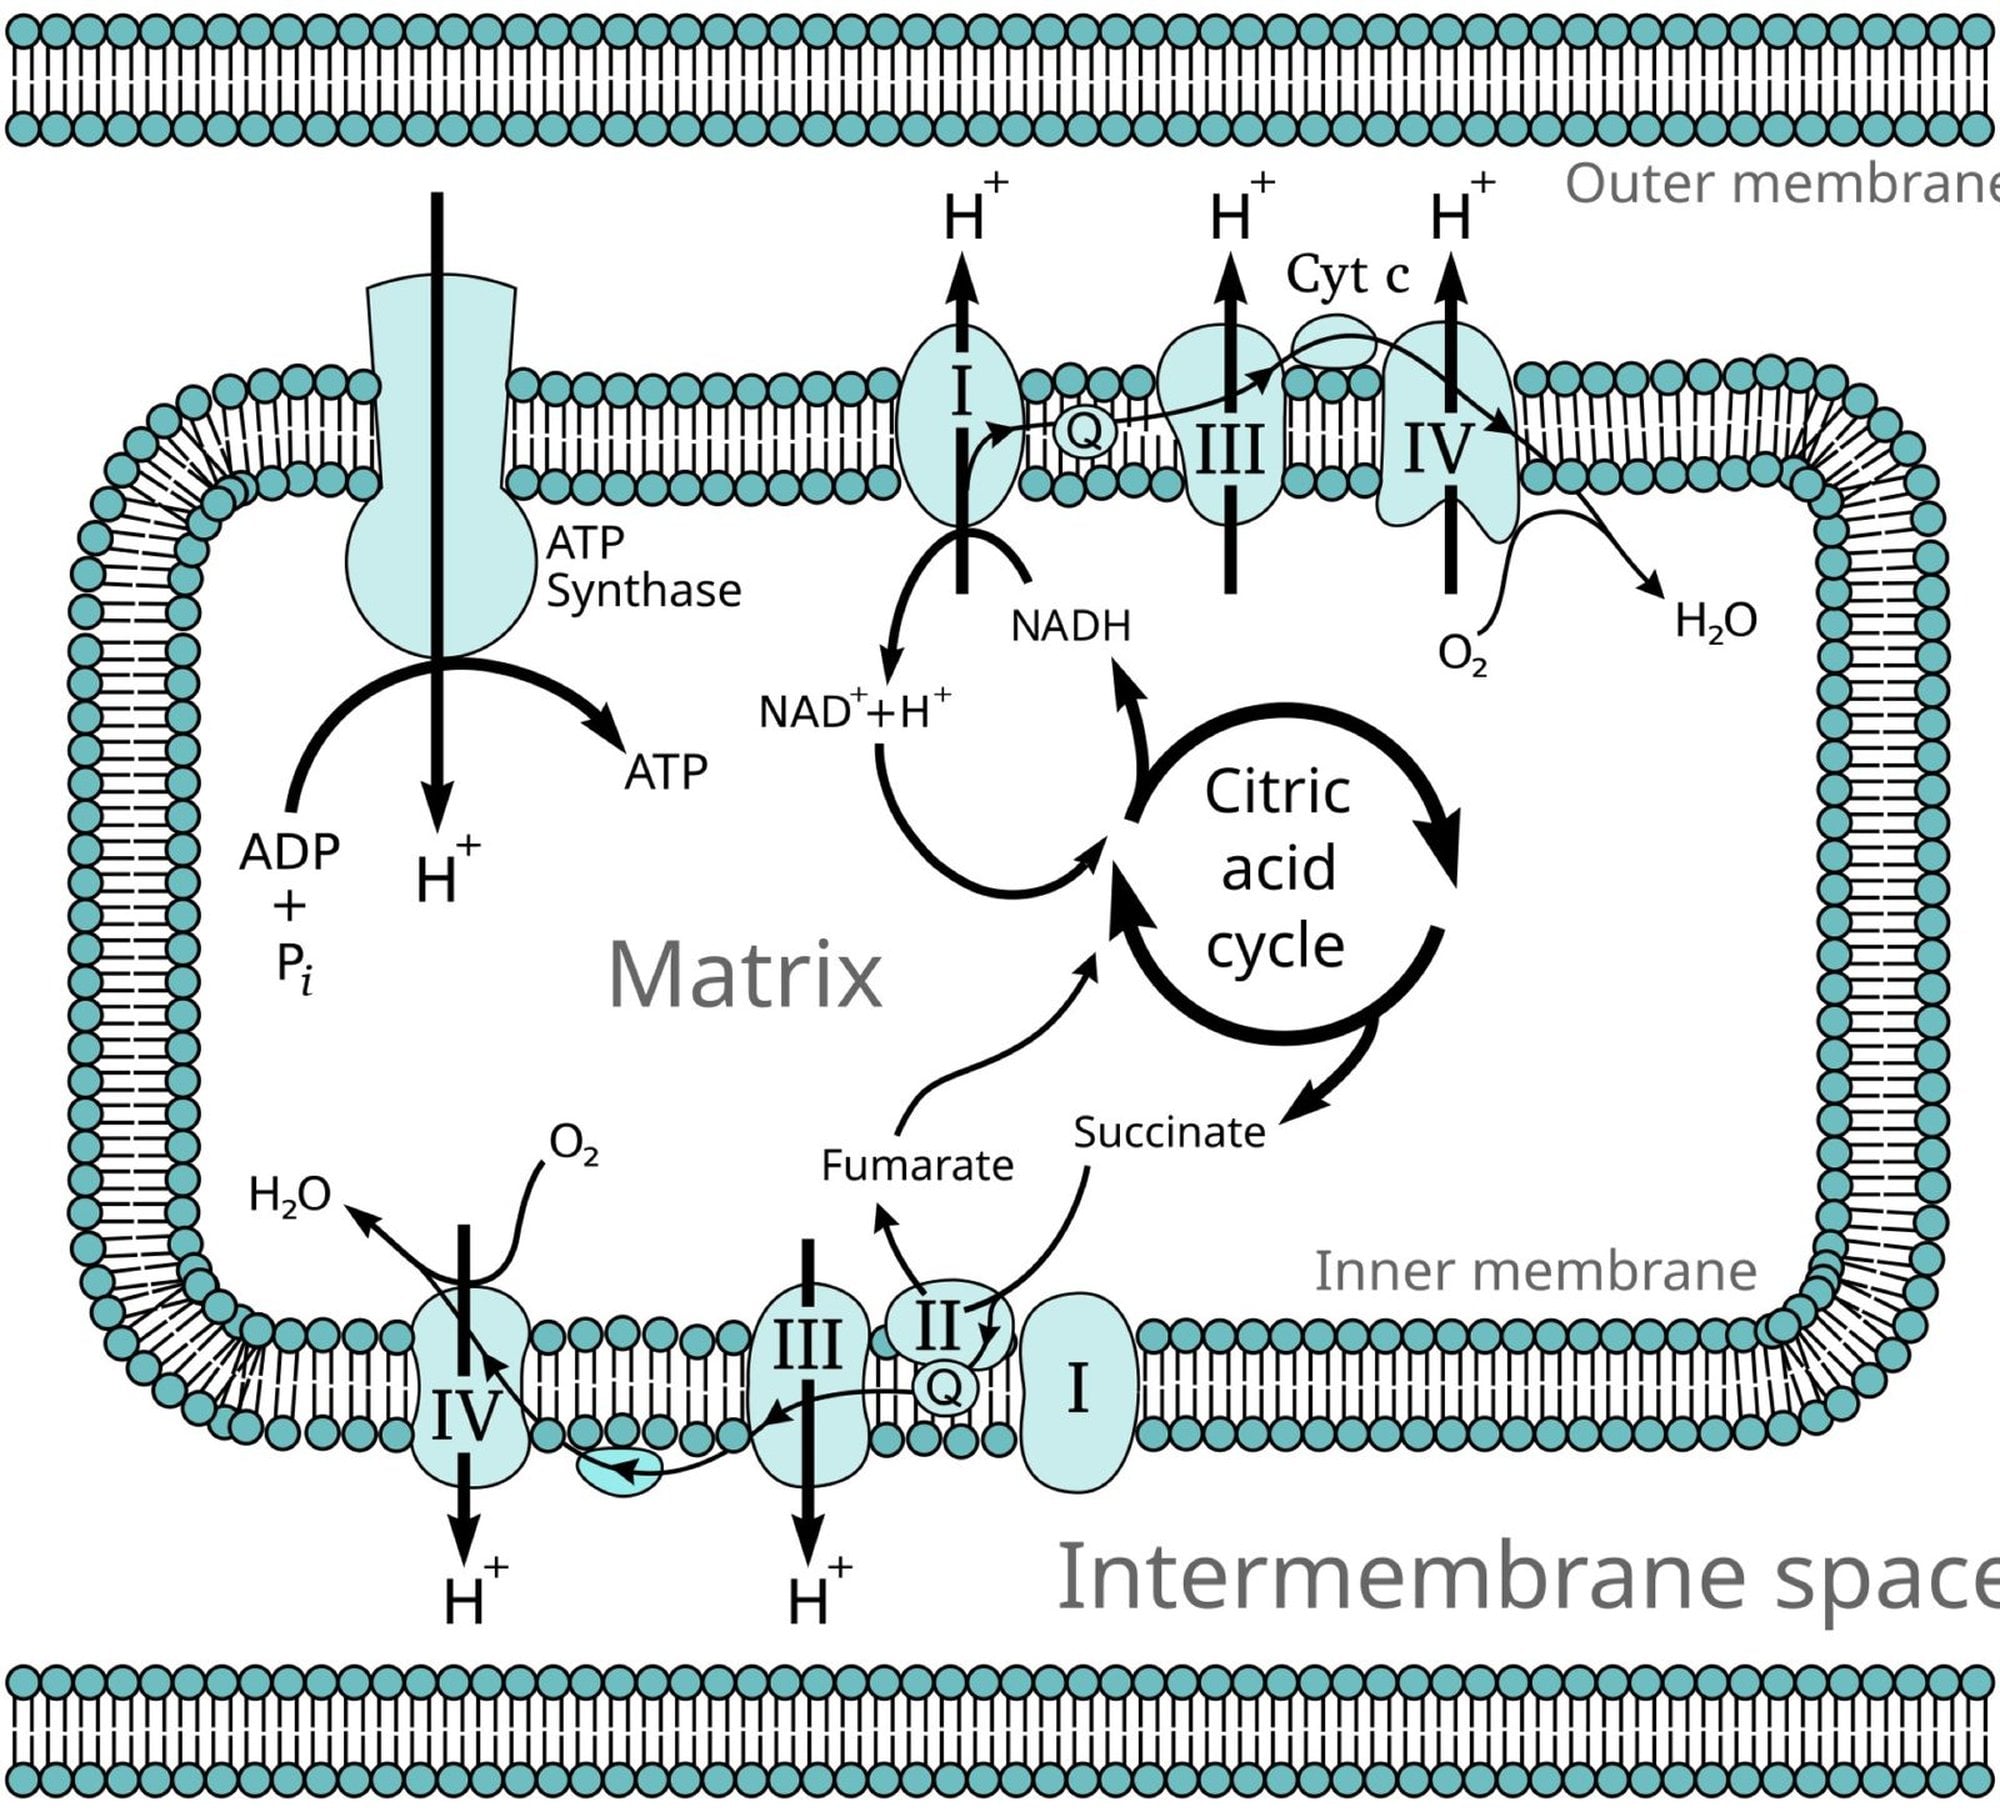
Substrat düzeyinde fosforilasyon (İng: "substrate-level phosphorylation") sürecinde ADP'ye, fosfoenolpiruvat örneğinde olduğu gibi yüksek enerjili fosfat taşıyan reaktif bir organik ara üründen doğrudan fosforil aktarımı yapılarak ATP sentezlenmektedir. Örneğin glikoliz yolunda sitozol ortamında bu mekanizmayla hızlı ATP üretimi gerçekleşebilmektedir. Oksidatif fosforilasyon (İng: "oxidative phosphorylation") düzeneğinde NADH ve FADH₂ gibi indirgenmiş taşıyıcılardan ayrılan elektronlar elektron taşıma sistemi içine girmektedir. Mitokondri iç zarında proton derişimi farkı oluşmaktadır. Zarın iki yüzü arasındaki bu farktan yararlanan ATP sentaz (İng: "ATP synthase") enzimi, protonların matrikse dönüşü sırasında açığa çıkan enerjiyle ATP üretmekte ve böylece hücresel solunum toplam senteze büyük pay sağlamaktadır ([hücresel solunum ayrıntısı](/24103)). Bu zar enerjisi ilkesi, Peter Mitchell'in kemiozmotik hipotezine dayanmaktadır.[14] * Fotofosforilasyon ise sadece fotosentetik hücrelere özgüdür ve fosforil aktarımı için gereken itici gücü doğrudan ışıktan sağlamaktadır. Bitkilerin kloroplastlarındaki veya fotosentetik bakterilerin zarlarındaki tepkime merkezlerinde bulunan klorofil molekülleri, soğurdukları fotonlarla elektron akışını başlatarak bu zar bağımlı sentezi yürütmektedir.[7]
ATP Hakkında Yanlış Bilinenler
ATP döngüsünün olağanüstü hızı ve kimyasal doğası, popüler bilim anlatımlarında veya aşırı basitleştirilmiş özetlerde sıklıkla kavram kargaşasına yol açmaktadır. Günlük dildeki benzetmeler bu molekülü dolu bir pil ya da patlamaya hazır bir kapsül gibi resmetmektedir, oysa termodinamiğe dayanan biyokimyasal ölçümler çok farklı bir tablo ortaya koymaktadır.
Kavram yanılgıları çoğunlukla statik stok miktarı ile dinamik çevrim hızının birbirinin yerine kullanılmasından doğmaktadır. Ayrıca sulu çözeltideki denge eğilimi ile tepkimenin gerçekleşme sürati arasındaki fark da gözden kaçırılabilmektedir. Kovalent bağların doğasından hücresel keseciklere kadar uzanan laboratuvar bulguları, bu yaygın kabulleri tek tek düzeltmektedir.
Bağ Kopması ve Yüksek Enerji Yanılgısı
Hücresel enerji anlatımlarında en sık karşılaşılan hatalı cümlelerden biri, "ATP'nin fosfat bağı koptuğunda içindeki enerji açığa çıkar" ifadesidir, oysa kimyasal olarak bir kovalent bağın kırılması her zaman dışarıdan enerji girdisi gerektirmektedir. Bir tepkimede net kazanç doğması, kopan bağdan enerji fışkırmasından değil, suyun katılmasıyla kurulan yeni bağların toplam enerjisinin başlangıç durumundan aşağıda kalmasından kaynaklanmaktadır.
Benzer şekilde yüksek enerjili fosfat bağları adlandırması da çoğu kez molekülün toplam kimyasal enerji içeriğiyle karıştırılmaktadır. Biyokimyada bu kavram, tek bir bağın içine sıkıştırılmış sıra dışı bir depoyu değil, fosforil grubunun başka moleküllere devredilme eğilimini ifade etmektedir. Dahası ATP, termodinamik aktarım ölçeğinin zirvesinde değil, ara basamağında konumlanmaktadır. İşte bu orta basamak konumu, molekülün besin yıkımındaki güçlü vericilerden grup teslim alıp biyosentezdeki alıcılara devredebilmesini sağlamaktadır.
Kararsızlık, Depolama ve ATP Havuzu
Yaygın yanılgılardan bir diğeri, ATP molekülünün aşırı kararsız olduğu ve hücre içinde sentezlenir sentezlenmez kendiliğinden parçalandığı düşüncesidir. Bu noktada termodinamik kararsızlık ile kinetik kararlılık arasındaki ayrım belirleyicidir. ATP termodinamik açıdan gerçekten kararsızdır, çünkü sulu çözeltide tepkime dengeye ulaştığında yıkım ürünleri olan ADP ve fosfat, ATP'ye göre çok daha yüksek derişimde bulunmaktadır. Ancak aynı molekül kinetik açıdan oldukça kararlıdır. Uygun bir enzimin bulunmadığı ortamda ATP'nin kendiliğinden hidrolizi son derece yavaştır, bu nedenle hücre ATP'yi sadece ilgili enzimin aktif bölgesinde ve gereken anda kontrollü biçimde harcayabilmektedir.
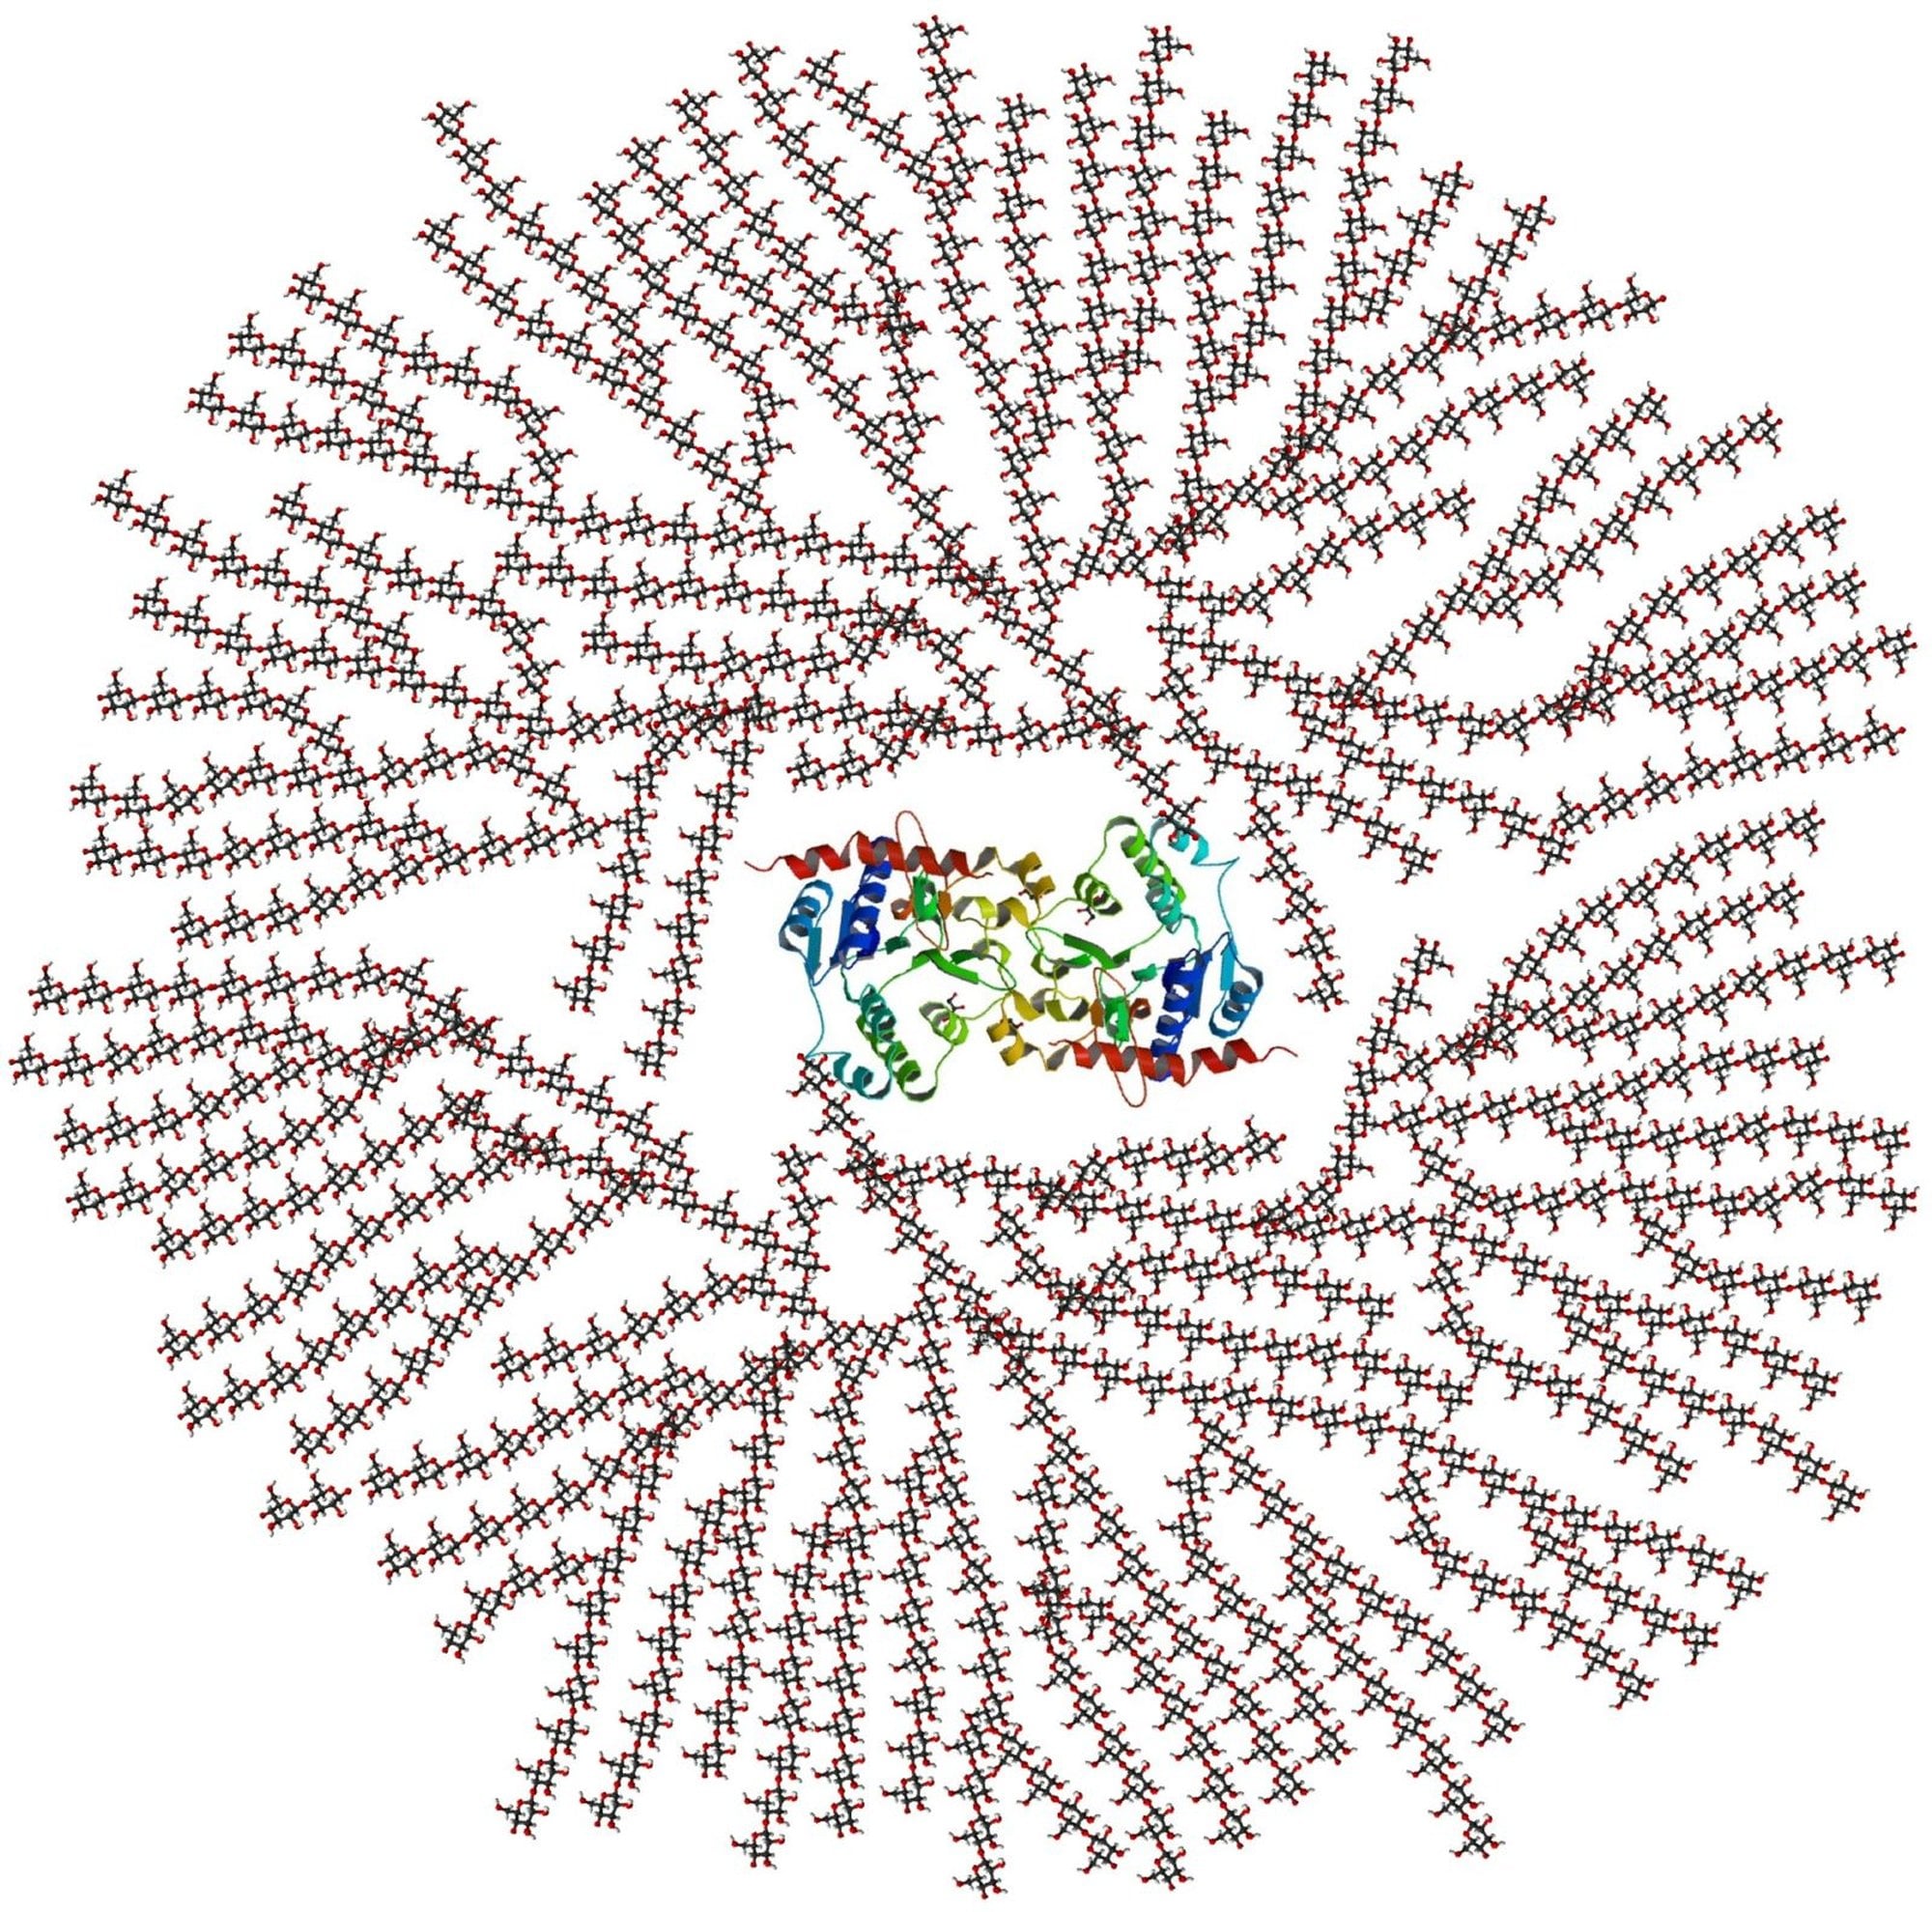
Öte yandan "ATP hücrede hiç bulunmaz" şeklindeki aşırı genellemeler de doğrudan doku ölçümleriyle çelişmektedir. Her canlı hücrede her an hazır bir ATP havuzu tutulmakta olup iskelet kasında bu miktar yaş ağırlık cinsinden yaklaşık 8 mmol/kg olarak ölçülmektedir.[10] Elbette bu hazır havuz sınırlıdır. Hücreler uzun süreli enerji gereksinimlerini karşılamak için ağır ve ozmotik açıdan yük oluşturacak ATP yığınları biriktirmek yerine, glikojen ve triaçilgliserol (trigliserit) gibi yoğun karbon kaynaklarını depolamaktadır. Anlık üretim hızlı metabolik denetimle yapılmaktadır.
Fakat uzun vadeli karbon rezervlerinin varlığından hareketle "ATP hiçbir şekilde depolanmaz" sonucuna varmak da hatalıdır. Nitekim sinir ve endokrin sistemdeki özelleşmiş hücrelerde ATP molekülleri, nörotransmiterlerle birlikte büyük ve yoğun çekirdekli veziküllerde (keseciklerde) doğrudan depolanabilmektedir.[11] Dolayısıyla molekülün yığınlar halinde istiflenmemesi, belirli hücresel bölmelerde paketlenmediği anlamına gelmemektedir.
Kasta ATP'yi Yenileyen Sistemler
Küçük bir ATP havuzunun devasa enerji taleplerini nasıl karşıladığını en çarpıcı biçimde gösteren doku, yoğun egzersiz sırasındaki iskelet kasıdır. Kas dokusu, üzerine binen mekanik yüke göre metabolizma hızını vücuttaki diğer bütün dokulardan çok daha geniş bir aralıkta değiştirebilmektedir. Ağır bir egzersiz sırasında kastaki ATP talebi dinlenim durumuna kıyasla bin kattan fazla artabilmektedir. Oysa kas içi ATP derişimi bu olağanüstü talep sıçramasına rağmen görece sabit kalabilmektedir. Bunun nedeni, kas hücrelerinin harcanan ATP'yi tüketim hızına eşdeğer bir hızla yeniden sentezlemesidir.
Kasın bu küçük ATP havuzunu kesintisiz yenileyen üç fizyolojik enerji sistemi görev yapmaktadır. Bunlar fosfajen sistemi, glikolitik sistem ve mitokondriyal solunumdur. Bu fizyolojik sınıflandırma daha önce ele alınan üç biyokimyasal fosforilasyon türüyle bire bir aynı ayrım değildir. Fosfajen sisteminde hem kreatin kinaz hem de adenilat kinaz tepkimeleri hızlı ATP yenilenmesine katkı vermektedir. Dinlenme durumundaki kas dokusunda yaş ağırlık cinsinden yaklaşık 26 mmol/kg kreatin fosfat (fosfokreatin) yedeği yer almakta ve bu deponun devreye girmesi doğrudan oksijen varlığını gerektirmemektedir.[10] Bu depo ATP havuzunun üç katından büyüktür.
Ne var ki egzersiz sırasında bu üç enerji sisteminin vites değiştirir gibi sırayla açılıp birbirini tamamen kapattığı düşüncesi gerçeği yansıtmamaktadır. Kas etkinliği boyunca bütün enerji sistemleri eşzamanlı ve koordineli biçimde çalışmaktadır. Değişen tek şey, egzersizin şiddetine ve süresine bağlı olarak her bir sistemin toplam ATP üretimine sunduğu oransal katkıdır. Örneğin çok kısa ve patlayıcı egzersizlerde dahi glikoliz hızla devreye girmekte, dolayısıyla bu tür yüklenmelerde enerjinin bütünüyle sadece fosfajen sisteminden karşılandığı varsayımı çoğu zaman geçerli olmamaktadır.
Sonuç
Canlılık için enerji, birer açık sistem olan hücrelerin termodinamik dengeden uzak düzenli iç yapılarını sürdürebilmesi ve yaşamsal tepkimelerini devam ettirebilmesi için zorunlu olan aralıksız dönüşüm akışıdır. Bu akışın merkezinde yer alan adenozin trifosfat, fotosentez veya kemosentez yoluyla besinlere aktarılan ve hücresel solunumla serbest bırakılan enerjiyi, doğrudan fosforil grubu aktarımıyla hücrenin enerji bekleyen işlerine bağlamaktadır. Böylece dinlenme halindeki iyon gradyanlarının korunmasından yoğun egzersizdeki kas kasılmasına kadar her etkinlik, küçük bir ATP havuzunun saniyeler içinde harcanıp yeniden sentezlenmesiyle kesintisiz biçimde sürdürülmektedir.
Bütün bu mekanizmalar ATP'nin hücre içindeki işleyişini ayrıntılarıyla ortaya koysa da, yeryüzündeki tüm canlılarda neden özellikle bu nükleotidin ortak enerji para birimi konumuna yerleştiği sorusuna tek başına yanıt vermemektedir. Evrimsel süreçte enerji taşıyıcısı olarak neden ATP'nin öne çıktığına dair yaklaşımlar henüz kesinleşmemiştir. Bu nedenle araştırmacılar, adenozin molekülünün hidrojen siyanür () gibi abiyotik (canlılık öncesi) öncüllerden görece kolay oluşabilmesini şimdilik sadece bir tahmin olarak sunmaktadır.[9] Biyoenerjetik, bu molekülün bugün hücreyi nasıl ayakta tuttuğunu sayılarla ortaya koyarken, yaşamın ilk günlerinde neden başka bir taşıyıcının değil de ATP'nin öne çıktığı sorusu hala araştırmaya açık durmaktadır.
- Tebrikler!7
- Muhteşem!4
- İnanılmaz4
- Bilim Budur!1
- Mmm... Çok sapyoseksüel!1
- Merak Uyandırıcı!1
- Güldürdü0
- Umut Verici!0
- Üzücü!0
- Grrr... *@$#0
- İğrenç!0
- Korkutucu!0
Bilimsel bir hata mı gördün?
Evrim Ağacı'na her ay sadece 1 kahve ısmarlayarak destek olmak ister misin?
Şu iki siteden biriyle hemen destek olabilirsin:
kreosus.com/evrimagaci | patreon.com/evrimagaci
Çıktı Bilgisi: Bu sayfa, Evrim Ağacı yazdırma aracıyla 21.11.2026 23:37:42 tarihinde oluşturuldu. Evrim Ağacı'ndaki içerikleri birden fazla editör sürekli gözden geçiriyor, güncelliyor ve geliştiriyor. Bu çıktıdan sonraki güncellemeleri görmek ve içeriğin en güncel hâlini okumak için şu adrese git: evrimagaci.org/s/11826
İçerik Kullanım İzinleri: Evrim Ağacı'ndaki yazılı içerikler orijinallerine hiçbir şekilde dokunulmadığı sürece izin alınmaksızın paylaşılabilir, kopyalanabilir, yapıştırılabilir, çoğaltılabilir, basılabilir, dağıtılabilir, yayılabilir, alıntılanabilir. Ancak bu içeriklerin hiçbiri izin alınmaksızın değiştirilemez ve değiştirilmiş hâlleri Evrim Ağacı'na aitmiş gibi sunulamaz. Benzer şekilde, içeriklerin hiçbiri, söz konusu içeriğin açıkça belirtilmiş yazarlarından ve Evrim Ağacı'ndan başkasına aitmiş gibi sunulamaz.