Metabolizma Nedir? Anabolizma, Katabolizma ve Enerji Dengesi Nasıl İşler?
ATP Bağları Kırıldığında Gerçekten Enerji Açığa Çıkar mı?


Bu Makalede Neler Öğreneceksin?
Bu bölümü yapay zekâ hazırlar.- Metabolizma, hücrelerin besin ve ışık enerjisini kullanarak yaşamı sürdürmesini sağlayan kimyasal tepkimeler ağıdır.
- Katabolizma molekülleri parçalayarak enerji açığa çıkarırken anabolizma yeni moleküller kurar; ATP bu süreçler arasında enerji aktarır.
- Enzimler tepkimeleri hızlandırır, metabolik yolları ve hormonlarca düzenlenen enerji kullanımını yönetir; hücreler termodinamik yasalarına uyar.
Metabolizma (İng: "metabolism"), bir canlının vücudundaki her bir hücrenin içinde gerçekleşen kimyasal tepkimelerin bütünüdür.[6] Canlılık tekil bir molekülün varlığına dayanmamaktadır. Hücreler, dışarıdan aldıkları besin ögelerini binlerce kimyasal dönüşüm içeren bu kesintisiz ağ sayesinde işleyerek elde ettikleri enerjiyi hem yaşamsal süreçlerin sürdürülmesinde hem de yeni organik maddelerin sentezinde kullanmaktadır. Kasların kasılmasından sinirsel uyartıların iletilmesine, hücre içi hareketlerden vücut sıcaklığının korunmasına kadar her biyolojik işlev bu kimyasal ağın ürettiği kullanılabilir enerjiye bağımlıdır.
İlk bakışta bir hücrenin karmaşık yapısını on yıllar boyunca düzenli tutabilmesi fizik yasalarına aykırı görünebilir. Günlük dilde de enerji moleküllerinin bağları kırıldığında içlerindeki enerjinin kendiliğinden fışkırdığı yönünde yaygın bir kanaat vardır. Oysa bu izlenim yanıltıcıdır. Canlı hücreler fizik yasalarını çiğnememektedir. Hiçbir hücre bağ kırarak bedava enerji elde edememektedir. Hücre içinde açık sistem termodinamiğine uygun biçimde çalışan, enzimlerle hızlandırılan ve boşa enerji tüketen döngüleri sınırlayan çok katmanlı bir kimyasal düzen işlemektedir.
Videonun Sayfası: Bazıları Neden Kilo Alamıyor?
Metabolizma Nedir?
Vücuttaki her hücre, saniyede binlerce kimyasal dönüşümün yürütüldüğü mikroskobik bir kimya laboratuvarı gibi çalışmaktadır. Ancak bu laboratuvar evrensel fizik yasalarına sıkıca bağlıdır. Termodinamiğin birinci yasası (enerjinin korunumu) uyarınca enerji ne yoktan var edilebilmekte ne de yok edilebilmektedir, dolayısıyla hücrenin hareket üretmek, zarlardan iyon taşımak veya yeni bir protein sentezlemek için harcadığı her birim enerji başka bir biçimden dönüştürülmektedir. Canlılar bu dönüşümü çevrelerinden aldıkları kimyasal enerjiyi veya ışık enerjisini hücre içi moleküllere aktararak gerçekleştirmektedir.
Burada temel bir fizik sorusu karşımıza çıkmaktadır. Evrendeki düzensizliğin arttığını söyleyen termodinamiğin ikinci yasası geçerliyse hücreler kendi içlerindeki yüksek düzeni nasıl koruyabilir? Bunun yanıtı, hücrelerin yalıtılmış sistemler olmamasıdır. Hücreler dış ortamdan sürekli enerji ve madde alır, dolayısıyla hücre içinde düzenin kurulması ve sürdürülmesi kesintisiz bir enerji girdisiyle mümkün olmaktadır. Canlı bir organizma dışarıdan aldığı enerjiyi işlerken çevresine ısı yaymaktadır. Bu nedenle kendi iç düzenini korurken termodinamiğin ikinci yasasını ihlal etmemektedir.
Hücre içindeki herhangi bir kimyasal dönüşümün kendiliğinden hangi yöne ilerleyeceğini ise serbest enerji değişimi, yani belirlemektedir. Ancak sabit bir değer değildir. Biyolojik koşullarda gerçek serbest enerji değişimi sürekli oynar, çünkü bu değer neredeyse tamamen tepkimeden çıkan ürünlerin derişimi ile tepkimeye giren maddelerin derişimi arasındaki oran değiştikçe farklılaşmaktadır.[2] Dolayısıyla hücre bir tepkimenin ürününü üretildiği anda hızla başka bir süreçte tükettiğinde ürünlerin girenlere oranını düşük tutmakta, böylece kimyasal akışın ileri yönde sürmesini sağlamaktadır.
Metabolik Yollar ve Enzim Katalizi
Hücre içindeki kimyasal tepkimeler birbirinden bağımsız adımlar halinde gerçekleşmemektedir. Bir tepkimenin sonunda ortaya çıkan ürün çoğu zaman hemen bir sonraki tepkimenin başlangıç maddesi, yani substratı haline gelmekte, böylece birbirine bağlanan tepkimelerden metabolik yol (İng: "metabolic pathway") adı verilen düzenli diziler oluşmaktadır. Bu diziler bir kentin kesişen ulaşım hatlarına benzemektedir. Ancak bu hatlarda sabit raylar yoktur. Bu hatları, hücre içinde sürekli çarpışan çözünmüş moleküllerin girdiği tepkimeler oluşturmaktadır. Örneğin hücreye giren bir besin molekülü tek bir sert adımla parçalanmak yerine çok basamaklı metabolik yollar boyunca kademeli biçimde dönüştürülmektedir.
Termodinamik açıdan elverişli bir tepkime bile hücre sıcaklığında kendi haline bırakıldığında yaşamı desteklemeyecek kadar yavaş ilerleyebilir, çünkü başlangıç maddelerinin ürüne dönüşebilmesi için önce bir aktivasyon enerjisi engelinin aşılması gerekmektedir. Enzimler bu noktada devreye girmektedir. Her enzimin yapısında substratın seçici olarak bağlandığı ve kimyasal katalizin gerçekleştiği aktif bölge (İng: "active site") bulunmaktadır. Ayrıca enzim, diğer kimyasal katalizörler gibi katalizlediği tepkimede tüketilmeden çıkmakta ve aktivasyon enerjisini düşürerek dönüşümü büyük ölçüde hızlandırmaktadır.[3]
Fakat enzimlerin hızlandırıcı gücü onları termodinamik yasalarının üzerine çıkarmamaktadır. Kataliz süreci bir tepkimenin toplam değerini değiştirmemektedir, dolayısıyla enzimler sadece kimyasal dengeye ulaşmak için gereken süreyi kısaltmakta ve denge anındaki ürün ile giren madde oranlarını aynı bırakmaktadır. Öte yandan kimyasal dengede giren ve ürün derişimlerinin zaman içinde sabit kalması tepkimelerin durduğu anlamına gelmemektedir.[3] İleri ve geri dönüşümler eşit hızda sürmektedir.
Bu termodinamik sınır, hücrenin enerji yönetiminde belirleyici bir kural doğurmaktadır. Dışarıdan net enerji girdisi alan dönüşümlere endergonik tepkime (İng: "endergonic reaction") adı verilmektedir. Ancak enzimler aktivasyon engelini ne kadar düşürürse düşürsün endergonik tepkimeleri kendi başlarına elverişli hale getiremez, dolayısıyla hücrenin bu tür tepkimeleri yürütebilmesi için enerji veren başka süreçlerle eşleştirmesi zorunludur.
Katabolizma ve Anabolizma Ayrımı
Metabolizma ağındaki binlerce metabolik yol, maddenin dönüşüm yönüne ve enerji alışverişine göre iki ana kolda incelenmektedir. Büyük ve karmaşık moleküllerin daha küçük moleküllere parçalandığı biyokimyasal süreçlere katabolizma (İng: "catabolism") denmektedir. Örneğin besinlerle alınan şekerlerin, yağların veya proteinlerin hücre içinde kademeli olarak daha küçük birimlere ayrılması birer katabolik süreçtir. Bu yıkım adımları kimyasal açıdan çoğunlukla oksidasyon (İng: "oxidation"), yani yükseltgenme niteliği taşımaktadır. Yıkılan yakıt moleküllerinden elektronlar adım adım uzaklaştırılmaktadır.
Elektronların yakıt moleküllerinden koparıldığı bu yıkım basamakları, net serbest enerji veren ekzergonik tepkime (İng: "exergonic reaction") karakterindedir. Ancak bu enerjinin tamamı tutulamamaktadır. Katabolizma sırasında açığa çıkan kimyasal enerjinin sadece bir bölümü hücrenin enerji taşıyıcısı olan ATP biçiminde yakalanmaktadır. Geri kalanı ise çevreye ısı olarak yayılmaktadır. Kışın soğuk bir günde koştuğumuzda vücudumuzun hızla ısınması, çalışan kaslardaki yoğun katabolik akışın yan ürünü olan bu ısı yayılımının doğrudan sonucudur.
Öte yandan madalyonun diğer yüzünde küçük ve basit yapı taşlarından daha büyük moleküllerin sentezlendiği anabolizma (İng: "anabolism") yer almaktadır. Örneğin hücrenin serbest amino asitleri birbirine ekleyerek işlevsel proteinler üretmesi doğrudan bir anabolik tepkime dizisidir. Anabolik süreçler çoğunlukla indirgenme (İng: "reduction") niteliğindedir. Ayrıca küçük öncül moleküllerden düzenli makromoleküller kurmak, kendiliğinden gerçekleşmeyen endergonik tepkimelere dayanmaktadır. Yapım süreçleri kesintisiz enerji yatırımı istemektedir.
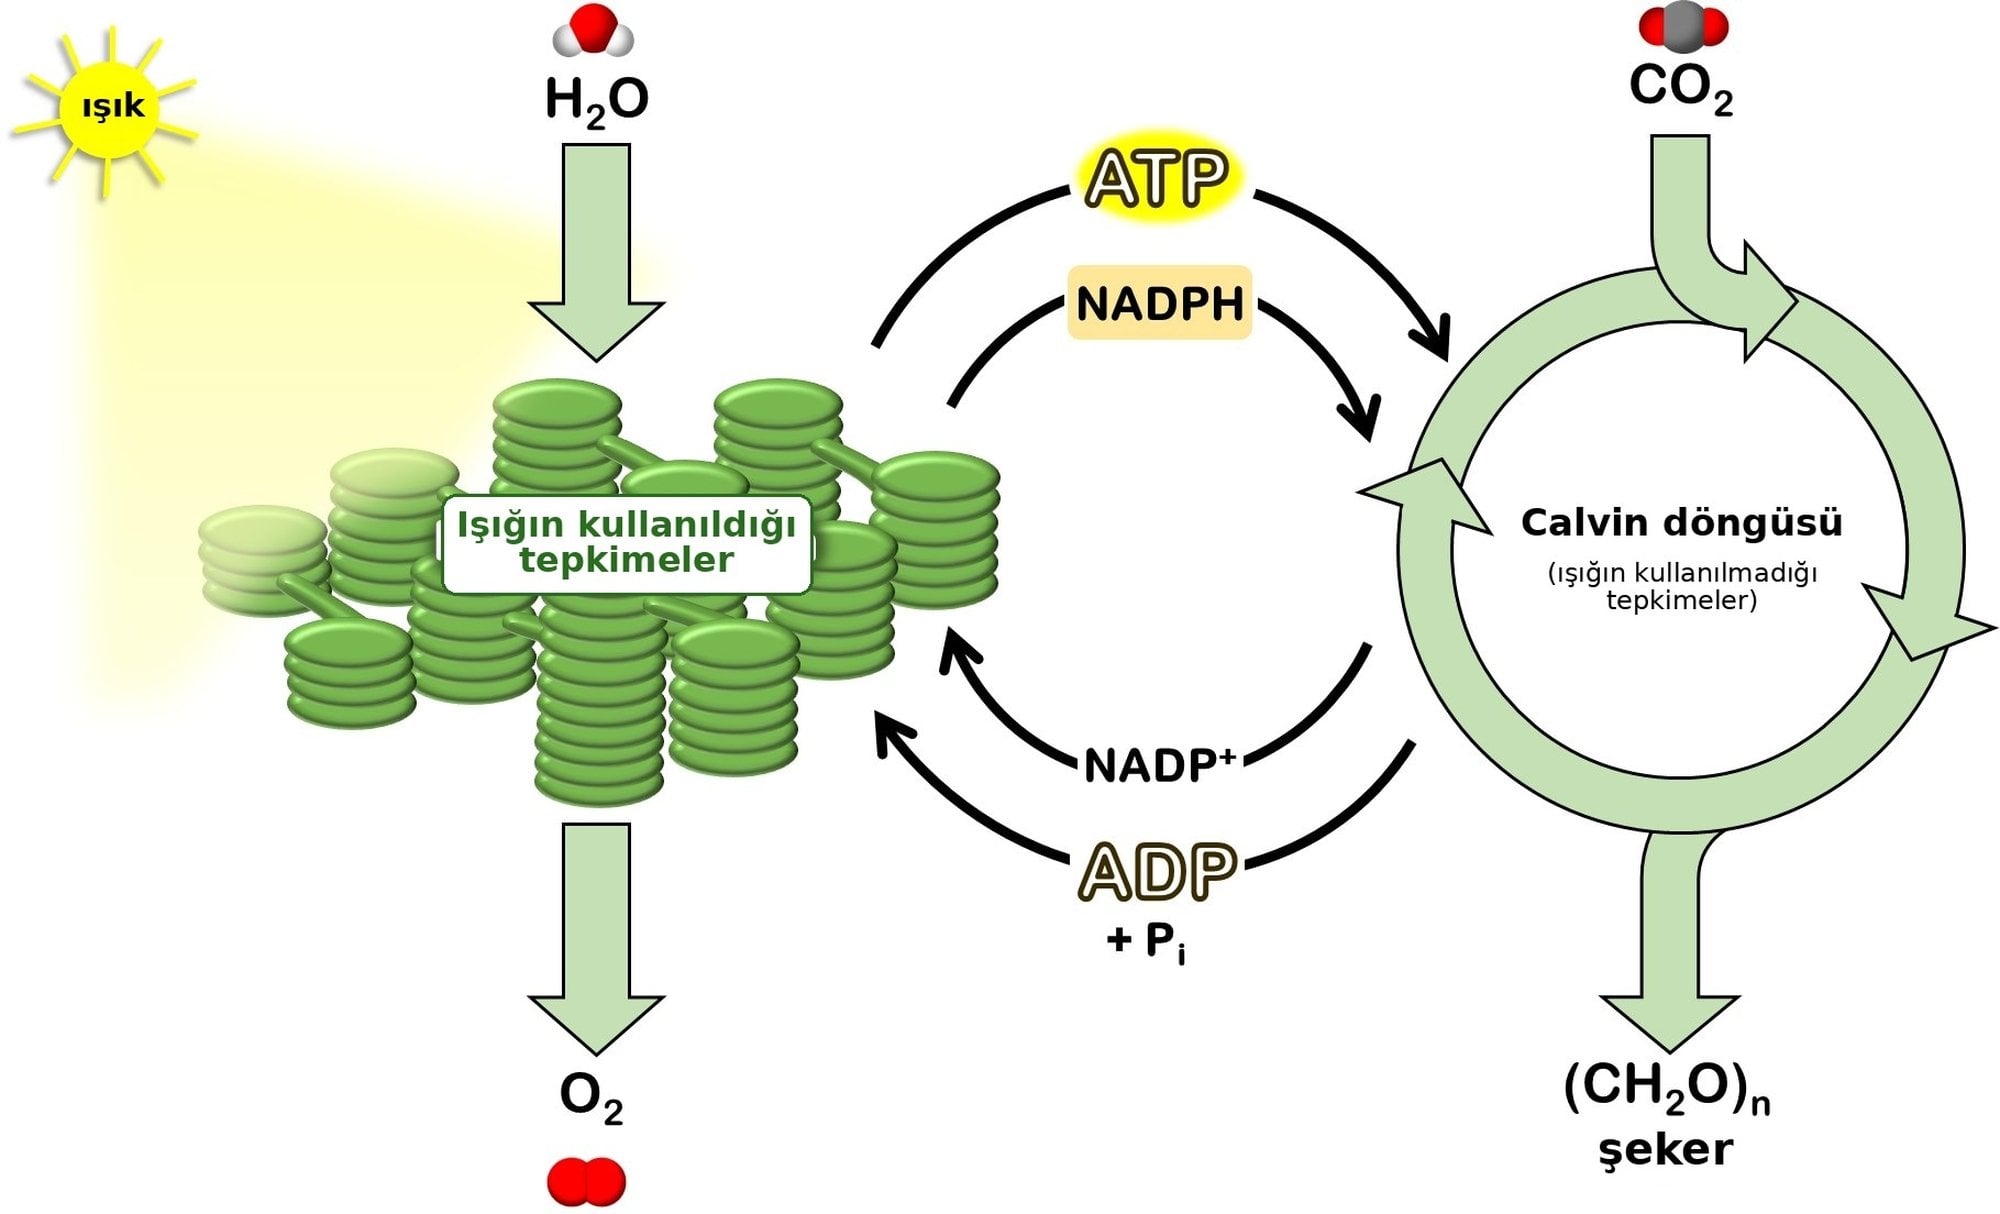
Canlılar dünyasında anabolik indirgenmenin en bilinen örneği bitkilerde görülmektedir. Bitkiler, fotosentezin ışığın kullanılmadığı tepkimeleri (Calvin döngüsü) (İng: "light-independent reactions") evresindeki indirgenme tepkimeleriyle karbohidrat (İng: "carbohydrate") sentezlerken büyük miktarda enerji harcamaktadır, ancak bu indirgenme sürecini besleyen nihai enerji kaynağı Güneş'tir. Böylece bitkilerin Güneş enerjisiyle kurduğu organik moleküller, daha sonra hem bitkilerin kendisi hem de bitkilerle beslenen hayvanlar için katabolizmanın başlangıç yakıtını oluşturmaktadır.
Hücresel Enerji Eşleşmesi ve ATP
Hücre içinde katabolizma enerji açığa çıkarırken anabolizma sürekli enerji talep etmektedir. Öyleyse bir yıkım tepkimesinden çıkan enerji, hücrenin başka bir köşesindeki endergonik tepkimeye dağılmadan nasıl ulaştırılır? Hücreler bu sorunu enerji eşleşmesi (İng: "energy coupling") adı verilen biyokimyasal bir stratejiyle çözmektedir. Enerji eşleşmesinde endergonik bir tepkime, güçlü biçimde ekzergonik olan başka bir tepkimeye ortak bir ara basamak üzerinden bağlanmaktadır, dolayısıyla toplam serbest enerji değişimi elverişli hale gelmekte ve tek başına yürüyemeyecek olan sentez işlemi gerçekleşebilmektedir.
Biyolojik sistemlerde bu eşleşmenin merkezinde adenozin trifosfat (İng: "adenosine triphosphate"), kısaca ATP yer almaktadır. Moleküler yapısına bakıldığında ATP molekülü azotlu bir baz olan adenin, beş karbonlu bir riboz şekeri ve bunlara ardışık biçimde bağlanmış üç fosfat grubundan oluşmaktadır. Bu üç fosfat grubundan uçtaki ayrıldığında geriye iki fosfatlı adenozin difosfat (İng: "adenosine diphosphate"), yani ADP kalmaktadır. ADP gerektiğinde yeniden üç fosfatlı yapıya döndürülebilir. ATP, hücre içinde enerji aktarımının ve kullanımının başlıca aracısı olarak görev yapmaktadır.
ATP'nin su ile tepkimeye girerek ADP ve inorganik fosfata ayrılmasına hidroliz (İng: "hydrolysis") denmektedir. Uçtaki fosfat grubu koparıldığı için bu tepkime defosforilasyon (İng: "dephosphorylation") olarak da adlandırılmaktadır. ATP'nin hidrolizi oldukça güçlü bir ekzergonik tepkimedir, dolayısıyla hücreler bu dönüşümü enerji alan sayısız tepkimeyle eşleştirmektedir. Öte yandan katabolik süreçlerden sağlanan enerji kullanılarak ADP molekülüne yeniden bir fosfat grubu eklenip ATP sentezlenmesine fosforilasyon (İng: "phosphorylation") denmektedir. Bu iki yönlü çevrim kesintisizdir.
Çalışan bir hücrede ATP, aylarca bekletilen bir yakıt deposu gibi biriktirilmemektedir. Hücredeki ATP miktarı sınırlıdır ve hızla harcanmaktadır. Bu nedenle ATP kesintisiz biçimde yenilenmektedir. Dinlenen bir insanda bile trilyonlarca hücrenin her birinde ADP'nin fosforilasyonu ile ATP'nin defosforilasyonu durmaksızın birbirini izlemektedir.
Fosforilasyon Mekanizmaları ve Hücresel İşlevler
Canlılar dünyasında ADP'den ATP üretilmesini sağlayan üç temel fosforilasyon mekanizması bulunmaktadır. Bunlar substrat düzeyinde fosforilasyon (İng: "substrate-level phosphorylation"), oksidatif fosforilasyon (İng: "oxidative phosphorylation") ve fotofosforilasyondur. Örneğin bitkiler ışık enerjisiyle fotofosforilasyon yapmaktadır. Hayvan hücreleri ise ATP sentezi için hücresel solunum (İng: "cellular respiration") ve yağ asitlerinin beta oksidasyonu gibi katabolik yollardan sağlanan enerjiyi kullanmaktadır. Bitki hücreleri de hücresel solunumla ATP üretmektedir. Substrat düzeyinde fosforilasyonda yüksek enerjili bir ara maddeden doğrudan ADP'ye fosfat aktarılmaktadır, ancak oksijenli solunum yapan hücrelerde ATP üretiminin büyük bölümünü oksidatif fosforilasyon üstlenmektedir.
Oksidatif fosforilasyon ökaryotik hücrelerde mitokondrinin iç zarında gerçekleşmektedir. Bu süreçte elektronlar elektron taşıma sistemi boyunca ilerlemekte ve son alıcı olan moleküler oksijen (O₂) tüketilmektedir. Elektron akışı, iç zarın iki yakası arasında elektrokimyasal bir proton (H⁺) gradyanı kurmaktadır. Zara yerleşmiş ve moleküler bir türbin gibi çalışan ATP sentaz enzimi, protonların gradyan yönündeki akışından yararlanarak ADP ve inorganik fosfattan ATP üretmektedir.
Üretilen bu ATP molekülleri hücrede kimyasal sentezin yanı sıra aktif iyon taşınmasını, sinirsel uyartı iletimini ve kas kasılmasını doğrudan desteklemektedir. Örneğin zarlardaki sodyum-potasyum pompası sürekli ATP tüketir. Bu zarsal taşıyıcıda her 1 ATP molekülü hidroliz edildiğinde 3 Na⁺ iyonu hücre dışına gönderilirken 2 K⁺ iyonu hücre içine taşınmakta, böylece zarın iki tarafı arasında sinirsel iletim için gereken Na⁺ ve K⁺ derişim farkları korunmaktadır.[7]
Çözümlü örnek 1: Sodyum-potasyum pompalarında 200 ATP harcandığında kaç iyon taşınır?
Verilenler: Bir sinir hücresinin zarındaki sodyum-potasyum pompalarında toplam 200 ATP molekülü hidroliz edilmektedir. Bu pompada her 1 ATP hidrolizi karşılığında 3 Na⁺ iyonu hücre dışına, 2 K⁺ iyonu ise hücre içine taşınmaktadır.
İstenen: Hücre dışına pompalanan toplam Na⁺ iyonu sayısı () ve hücre içine alınan toplam K⁺ iyonu sayısıdır ().
1. adım: Her 1 ATP molekülü başına 3 Na⁺ iyonu hücre dışına taşındığı için harcanan toplam ATP miktarı bu dönüşüm oranıyla çarpılmaktadır:
2. adım: Aynı süreçte her 1 ATP hidrolizi başına 2 K⁺ iyonu hücre içine alındığından toplam ATP sayısı K⁺ dönüşüm oranıyla çarpılmaktadır:
Sonuç: Toplam 200 ATP molekülünün hidroliz edildiği bu kesitte hücre dışına 600 Na⁺ iyonu gönderilmekte, hücre içine ise 400 K⁺ iyonu alınmaktadır.
İyon pompalarının ve mekanik işin birleştiği bir diğer kritik alan iskelet ve kalp kaslarının çalışmasıdır. Kas kasılmasının kendisi doğrudan ATP tüketmektedir. Kasılmış bir kasın yeniden gevşeyebilmesi de enerji gerektirmektedir, çünkü kas sitoplazmasındaki (miyoplazmadaki) Ca²⁺ iyonlarının derişim gradyanlarına karşı sarkoplazmik retikulum içine geri pompalanması aktif taşımayla yürütülmektedir. Vücut soğuğa maruz kaldığında bu kas mekanizmasını sıcaklık düzenlemesi için de devreye sokmaktadır. Titreme, kas kasılmalarını kullanarak ısı üreten istemsiz bir yanıttır.
ATP Bağları Hakkındaki Yaygın Yanılgı
Biyoloji anlatımlarında ATP molekülünün fosfat bağlarından sıkça "yüksek enerjili bağlar" diye söz edilmesi, oldukça köklü bir kavram yanılgısına zemin hazırlamaktadır. Örneğin pek çok kişi, ATP'nin uçtaki fosfat bağını kırmanın tek başına dışarıya doğrudan enerji fışkırttığını düşünmektedir. Oysa bu model kimyaya aykırıdır. Kimyasal bağların kırılması hiçbir molekülde dışarıya enerji vermemekte, aksine her zaman enerji girdisi gerektirmektedir.[16]
Öyleyse ATP hidrolizi eşleştirildiği tepkimeleri nasıl yürütebilir? Buradaki belirleyici etken kırılan tek bir bağ değil toplam kimyasal dönüşümdür, çünkü başlangıçtaki bağların kopması için bir miktar enerji harcansa da tepkime sonunda daha düşük serbest enerjili ve çok daha kararlı ürünler oluşmaktadır. Yeni bağların kurulması ve oluşan ADP ile inorganik fosfat ürünlerinin sulu ortamda kararlı bir yapıya kavuşması, başlangıçta harcanandan daha fazla enerji açığa çıkarmaktadır. Dolayısıyla ATP hidrolizinin ekzergonik niteliği, daha kararlı ürünlere yönelen bu toplam dönüşümden kaynaklanmaktadır.
Dahası, canlı hücrelerin içindeki gerçek işleyişte ATP molekülünün suyla buluşup bağımsız biçimde hidroliz olması oldukça nadir bir durumdur. Biyolojik sistemlerde kendi kendine gerçekleşen bağımsız hidroliz hücresel işi açıklamaya yetmez, çünkü bu durumda enerji sadece ısı yayılımına dönüşmektedir. ATP molekülü enerji eşleşmesine dayanan süreçlerin çoğunda doğrudan bir fosforil grubu aktarıcısı olarak görev yapmakta, böylece uçtaki fosforil grubunu hedef substrata veya taşıyıcı proteine devrederek oluşturduğu reaktif ara bileşik üzerinden kimyasal işin tamamlanmasını sağlamaktadır. Grup aktarımı eşleşmenin asıl anahtarıdır.
Besinlerin Hücresel Dönüşümü ve Düzenlenmesi
Hücrelerin kesintisiz ATP yenileyebilmesi ve yeni dokular kurabilmesi, dışarıdan alınan besinlerdeki büyük polimerlerin önce hücre içine girebilecek küçük yapı taşlarına ayrılmasını gerektirmektedir. Örneğin sindirimde karmaşık proteinler küçük peptitlere (oligopeptitlere) ve serbest amino asitlere parçalanmaktadır. Benzer şekilde besinlerdeki karmaşık şekerler disakkaritlere veya monosakkaritlere ayrıştırılmakta, lipitler ise gliserol ve serbest yağ asitlerine dönüştürülmektedir. Kana ve lenfe geçen bu yapı taşları hücrelere ulaştığında enerji üretimi için katabolizmaya sokulmaktadır, ancak hücrenin gereksinimine göre anabolizma yollarıyla yeniden büyük moleküllere de birleştirilebilir.
Canlılar fazla glikozu, ozmotik dengeyi bozmayan büyük polimerler halinde depolamaktadır. Karbohidrat depoları bitkilerde nişasta, hayvanlarda glikojendir. İnsan dahil hayvanlar fazla glikozu ağırlıklı olarak karaciğerde ve iskelet kaslarında glikojen biçiminde biriktirir, ancak kas glikojeni öncelikle kasın kendi kasılma gereksinimi için harcanırken karaciğerdeki glikojen depoları tüm vücudun kan şekeri dengesini desteklemektedir.
Karaciğer bu yakıt trafiğinin merkezindedir. Sindirim kanalından emilen amino asitler ve şekerler ilk olarak karaciğerin metabolik süzgecinden geçmektedir. Karaciğer hem glikojen depolanmasını ve açlıkta yeni glikoz üretimini yürütmekte hem de amino asit yıkımından doğan azotlu atıkların uzaklaştırıldığı üre döngüsünü düzenlemektedir, böylece dokular arasındaki yakıt ve yapı taşı akışı tek bir merkezden dengelenmektedir.
Glikoliz, Glukoneogenez ve Karşılıklı Düzenleme
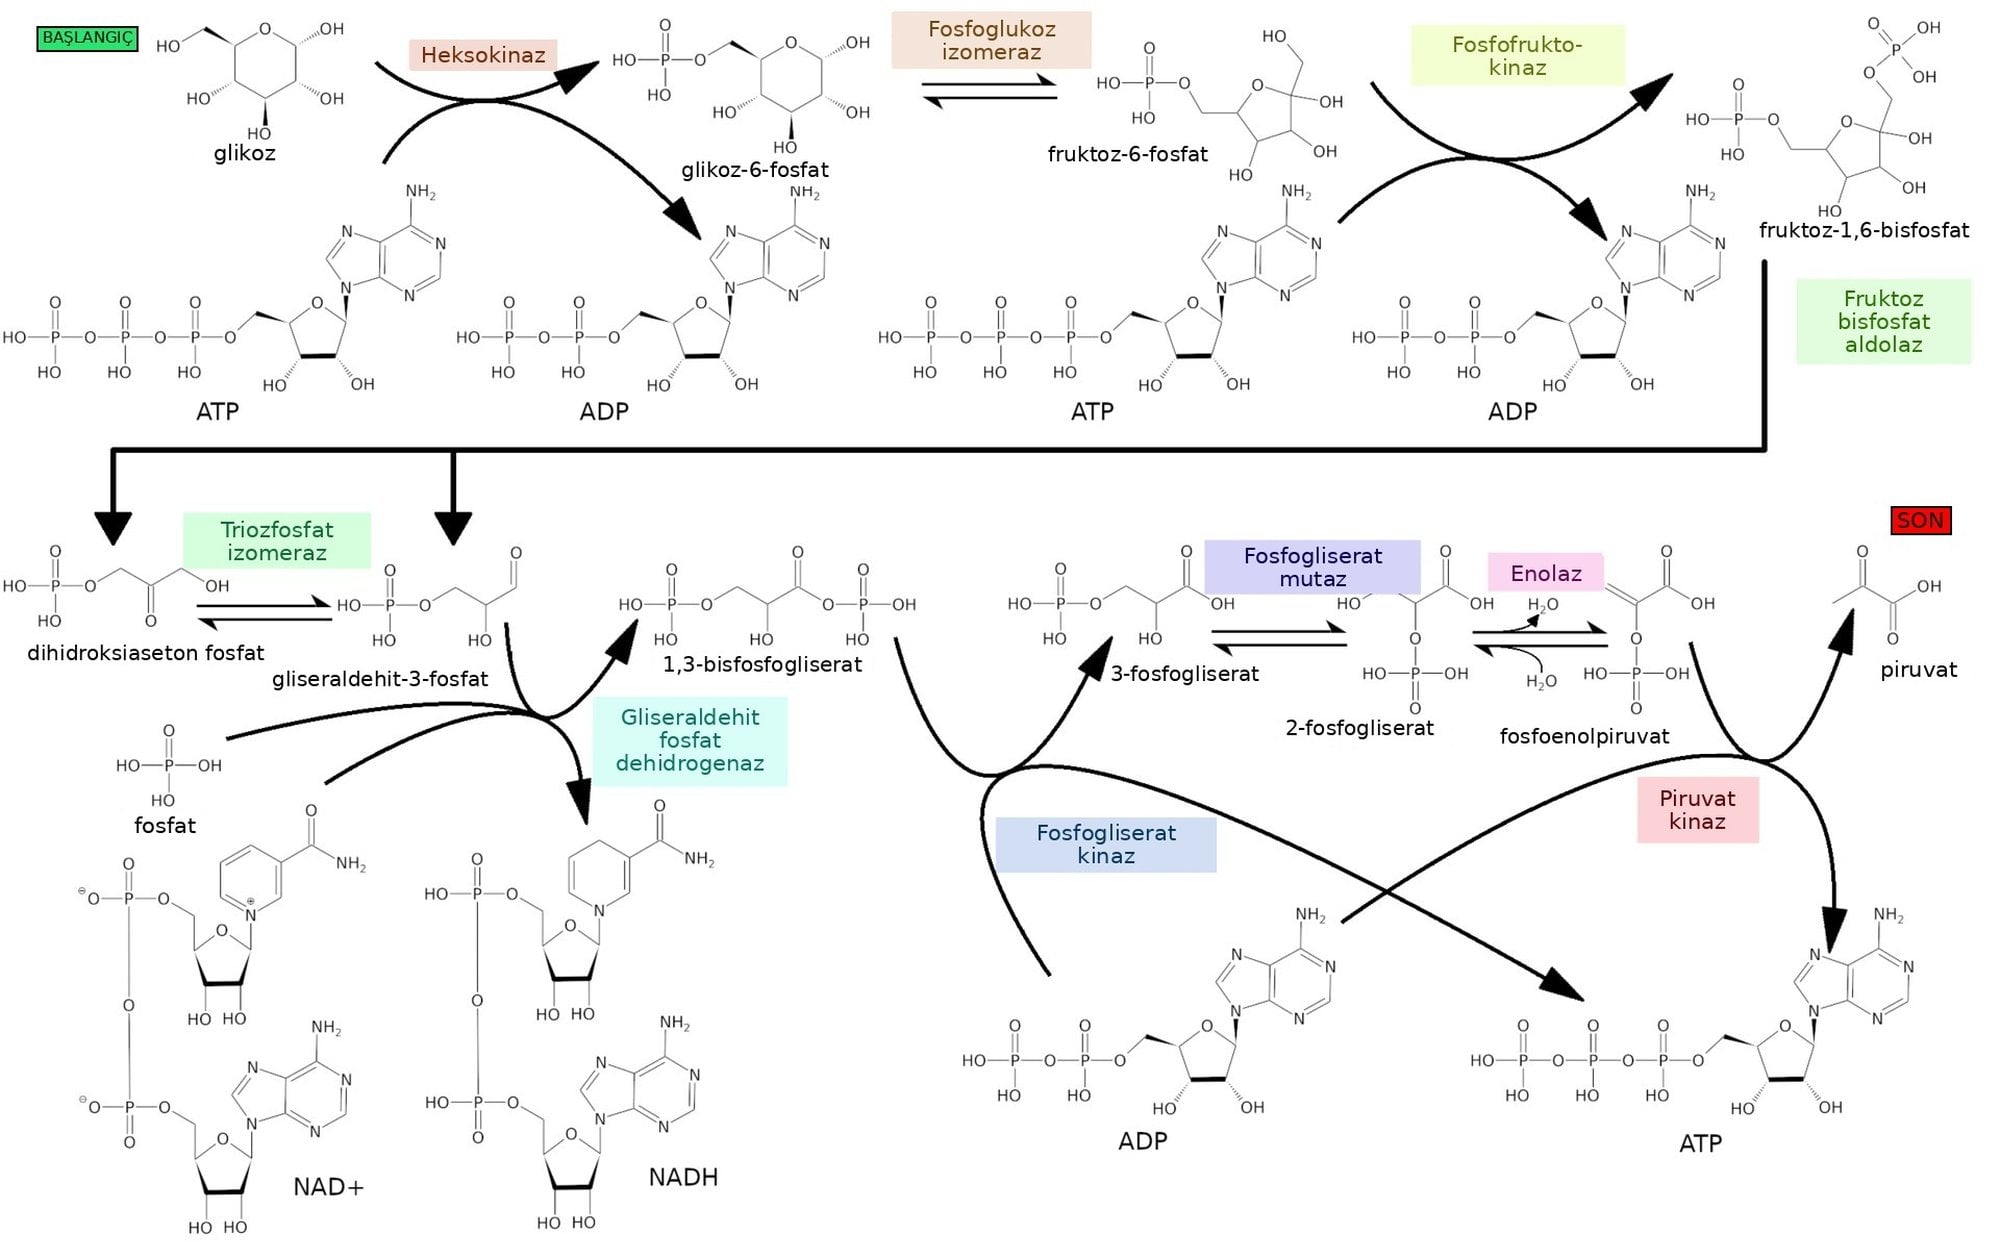
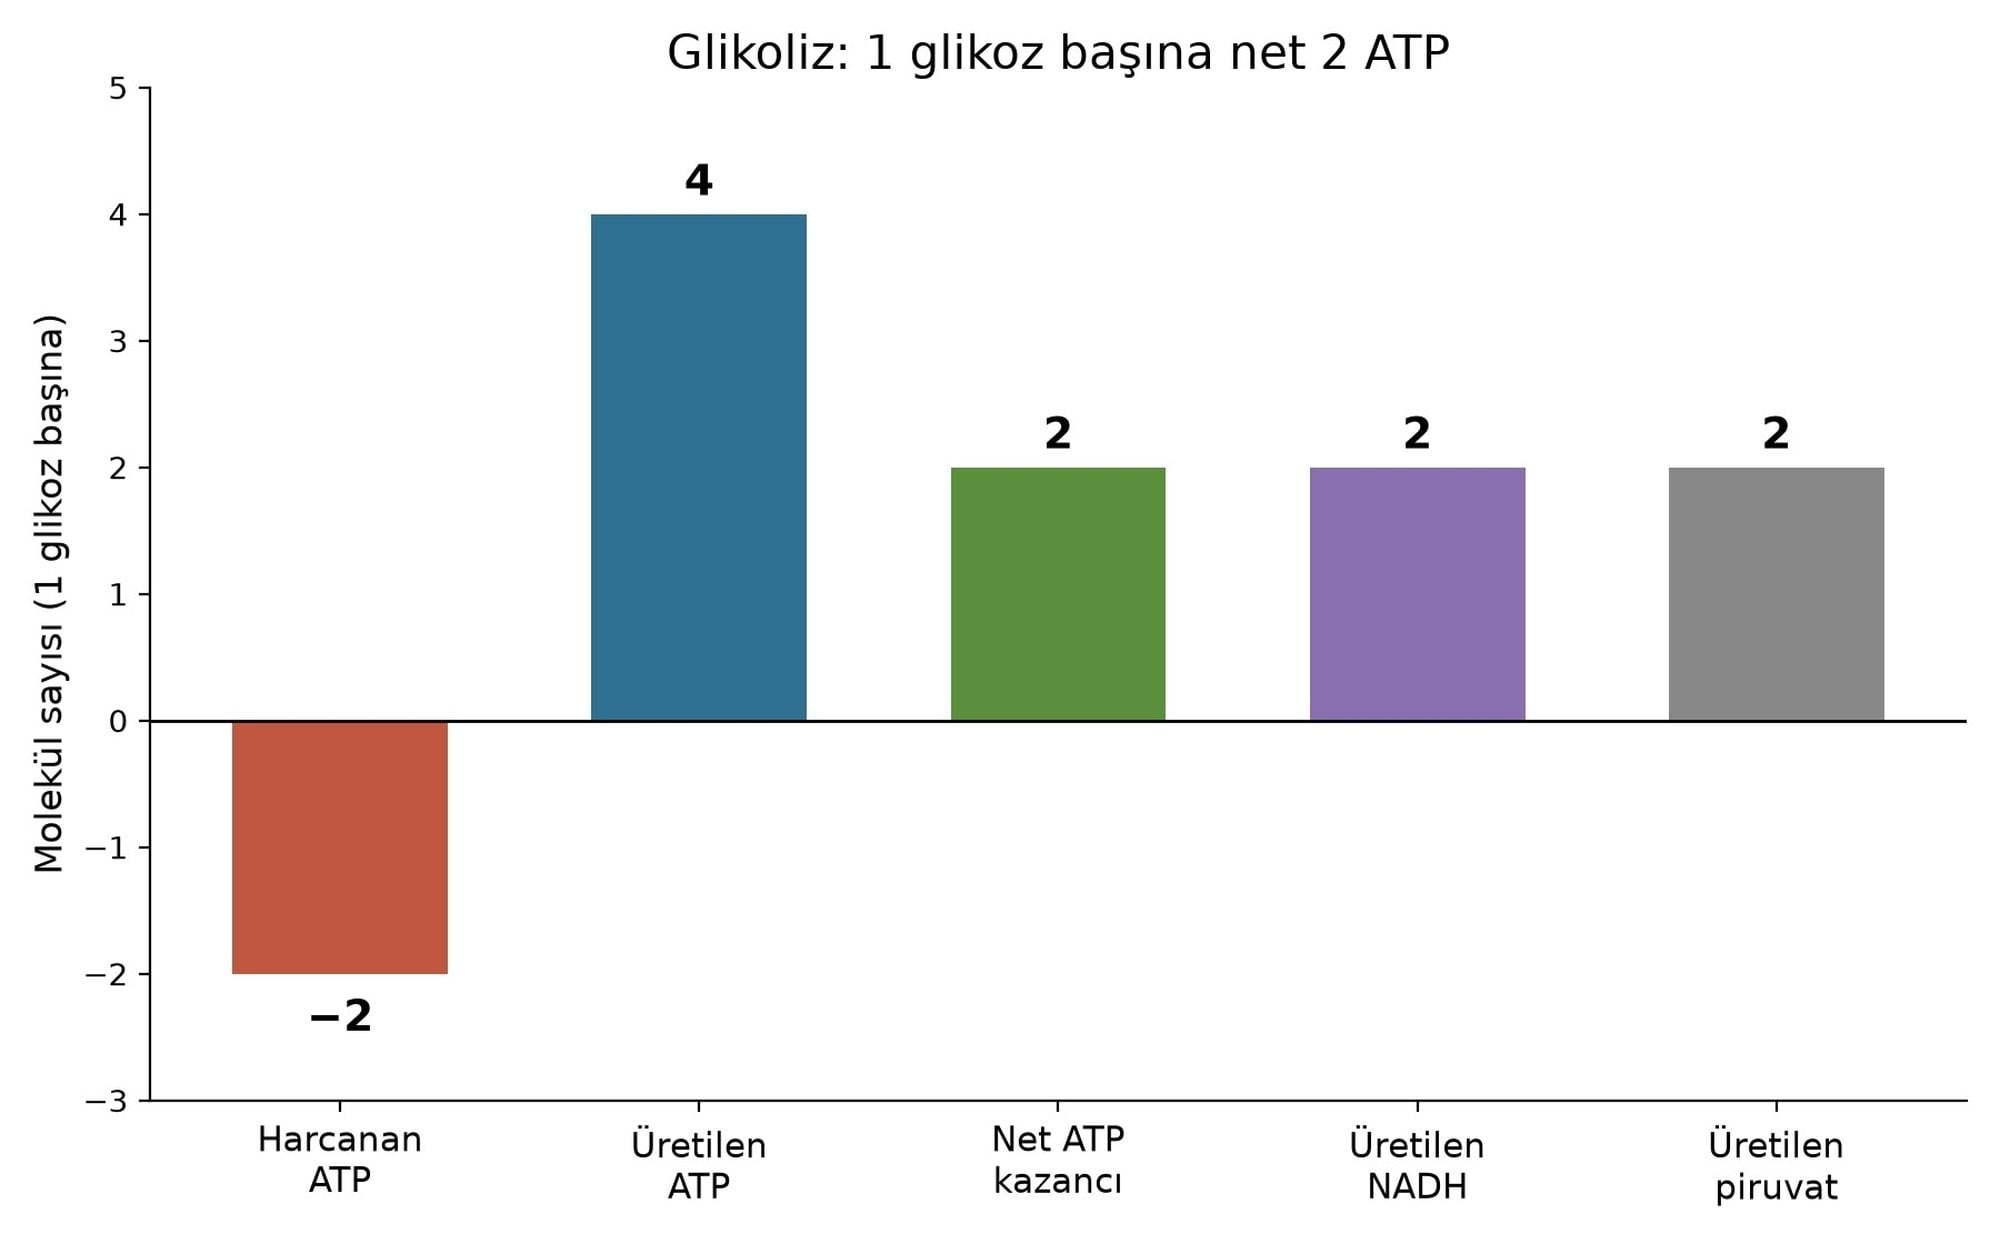
Hücre içine alınan glikozun hücresel solunum kapsamındaki ilk yıkım durağı glikoliz (İng: "glycolysis") yoludur. Glikoliz, şekerlerin oksitlenerek üç karbonlu piruvat (İng: "pyruvate") moleküllerine kadar parçalandığı on basamaklı katabolik bir metabolik yoldur. Glikolizin tüm enzimleri sitoplazmada bulunmaktadır. Ancak altı karbonlu bir glikoz molekülü bu sitoplazmik hatta girdiğinde hemen ilk adımda ATP üretmez, çünkü şeker iskeletini tepkimeye hazırlamak için önce hücreden ATP yatırımı talep etmektedir.
Sürecin başlangıç basamaklarında 1 glikoz molekülü başına 2 ATP hidroliz edilerek şeker iskeletine fosfat grupları eklenmektedir. Ardından altı karbonlu ara bileşik iki adet üç karbonlu birime bölünmekte ve sonraki basamaklarda substrat düzeyinde fosforilasyonla toplam 4 ATP üretilmektedir. Dolayısıyla tüm basamaklar tamamlandığında 1 glikoz molekülünün glikolizle yıkımından hücreye kalan ürünler net 2 ATP, 2 NADH ve 2 piruvat molekülüdür.
Çözümlü örnek 2: Bir glikoz molekülünün glikolizindeki net ATP kazancı kaçtır?
Verilenler: Sitoplazmada glikoliz yoluna giren 1 glikoz molekülü için başlangıç basamaklarında 2 ATP hidroliz edildiği ve sonraki basamaklarda toplam 4 ATP üretildiği bilgisidir.[1]
İstenen: Glikoliz sonunda 1 glikoz molekülü başına elde edilen net ATP kazancıdır ().
1. adım: Başlangıçtaki hazırlık basamaklarında 1 glikoz molekülü başına harcanan ATP miktarı dönüşüm oranıyla belirlenmektedir:
2. adım: Sonraki basamaklarda üretilen brüt 4 ATP'den başlangıç gideri çıkarılarak net kazanç hesaplanmaktadır:[1]
Sonuç: Bir glikoz molekülünün glikolizinde brüt 4 ATP sentezlense de başlangıçta harcanan 2 ATP düşüldüğünde hücrenin net kazancı 2 ATP olmaktadır.
Glikolizin sitoplazmada kesintisiz sürebilmesi, elektron alıcısı olarak görev yapan yükseltgenmiş NAD⁺ koenziminin ortamda bulunmasına bağlıdır. Oksijenin yeterli olduğu koşullarda NADH elektronlarını mitokondriye devrederek yeniden NAD⁺ haline dönebilmektedir, oysa yoğun kas egzersizinde veya oksijenin bulunmadığı ortamlarda bu yol sınırlanmaktadır. Bu durumda piruvatın laktata indirgendiği laktik asit fermantasyonu devreye girmektedir. Söz konusu tepkime doğrudan ATP üretmez, ancak glikolizin devam etmesi için kritik öneme sahip olan NAD⁺ molekülünün yeniden oluşmasını sağlamaktadır.
Vücudun glikoza ihtiyaç duyduğu açlık dönemlerinde ise hücreler piruvat gibi karbohidrat dışı öncüllerden yeniden glikoz sentezlemektedir. Glikozun sentezlendiği bu anabolik yola glukoneogenez (İng: "gluconeogenesis") adı verilmektedir. Fakat glukoneogenez, glikolizdeki on basamağın tersine çevrilmesiyle yürütülememektedir, çünkü glikolizin bazı basamakları yüksek düzeyde ekzergoniktir. Hücreler bu engelleri, dört farklı enzimin katalizlediği özel dolanma tepkimeleriyle aşmaktadır.
Hem glikoliz hem de glukoneogenez enzimlerinin büyük ölçüde aynı hücre bölmesinde bulunması ciddi bir denetim sorunu doğurmaktadır. Glikoz yıkılırken aynı anda piruvattan glikoz sentezlenirse ne olur? Bir yol etkinleştirilirken diğeri baskılanmazsa net hiçbir ürün sağlamadan sadece enerji harcayan ve ısı oluşturan verimsiz döngüler ortaya çıkmaktadır. Bu nedenle zıt işlevli metabolik yollar aynı hücrede karşılıklı düzenleme (İng: "reciprocal regulation") mekanizmasıyla eşgüdümlü biçimde denetlenmektedir.
Çözümlü örnek 3: Piruvatla başlayıp piruvatla biten eşzamanlı döngünün net enerji maliyeti nedir?
Verilenler: Karşılıklı düzenlemenin bulunmadığı varsayılan tek turluk bir döngünün piruvat ile başlayıp piruvat ile sonlandığı, bu turda yıkım kolunda 1 ATP üretilirken yapım kolunda 1 ATP ve 1 GTP tüketildiği bilgisidir.[4]
İstenen: Döngünün bir turundaki net molekül üretimi () ve net nükleozit trifosfat bilançosudur ().
1. adım: Süreç 1 piruvat ile başlayıp yine 1 piruvat ile bittiği için başlangıç ve bitiş miktarları arasındaki fark alınmaktadır:
2. adım: Aynı tur boyunca üretilen ve harcanan ATP sayıları birbirinden çıkarılarak net ATP değişimi hesaplanmaktadır:
3. adım: Sıfırlanan ATP farkına yapım basamağında harcanan 1 GTP eklenerek döngünün net enerji maliyeti bulunmaktadır:
Sonuç: Karşılıklı düzenleme olmadan çalışan bu döngüde net hiçbir molekül üretilmemekte, ATP kazancı ATP giderini karşılasa bile her turda net 1 GTP'lik enerji ısıya dönüşerek kaybedilmektedir.
Sitrik Asit Döngüsü ve Hormonlar
Oksijenli koşullarda sitoplazmadaki glikolizden çıkan piruvat, hücresel yıkımın ortak kavşağı olan mitokondriye taşınmaktadır. Burada sadece şekerler değil, hücrenin başlıca tüm yakıt grupları aynı merkeze bağlanmaktadır. Döngüye giriş bileşiği olan asetil-CoA hem glikolizden gelen piruvattan hem de yağ asitlerinin beta oksidasyonundan, keton cisimlerinden, hatta amino asit metabolizmasından elde edilebilmekte, böylece sofradaki ekmekten, zeytinyağından veya peynirden gelen karbon iskeletleri mitokondride tek bir kimyasal dilde buluşmaktadır.
Bu ortak merkez, sitrik asit döngüsü ya da Krebs döngüsü (İng: "citric acid cycle") olarak bilinmektedir. Döngüyü oluşturan tepkimelerin tamamı mitokondri içinde gerçekleşir, ancak görevli enzimlerden biri organelin iç zarına gömülü halde bulunmaktadır. Süreç, iki karbonlu asetil-CoA ile dört karbonlu oksaloasetatın birleşerek altı karbonlu sitrat molekülünü oluşturmasıyla başlamakta ve ardışık basamaklar boyunca şekerlerin, yağ asitlerinin ve amino asitlerin yıkım ürünleri karbondioksite (CO₂) kadar oksitlenmektedir.[5]
Evrim Ağacı ürünlerinden haberdar mısınız?
Ancak bu döngü sadece yıkıma hizmet etmemektedir. Sitrik asit döngüsü aynı zamanda hücrenin biyosentez tepkimelerinde ihtiyaç duyduğu öncül moleküllerin de önemli bir kaynağıdır. Örneğin ara bileşiklerden alfa-ketoglutarat ve oksaloasetat transaminasyon tepkimeleriyle sırasıyla glutamat ve aspartat amino asitlerinin üretiminde kullanılmaktadır. Hücrenin mevcut enerji durumu bu çift yönlü trafiğin hızını doğrudan ayarlamaktadır. Yüksek enerji göstergeleri olan ATP ve NADH döngüyü baskılama eğilimi göstermektedir, oysa düşük enerji göstergeleri olan NAD⁺, AMP ve ADP döngüyü etkinleştirmektedir.[5]
Tek bir hücrenin içindeki bu ince ayar, tüm vücut ölçeğinde endokrin sistemin salgıladığı hormonlarla üst düzeyde yönetilmektedir. Karaciğer ve kaslardaki glikojen sentezi ile glikojen yıkımı da birbirinden ayrı mekanizmalarla kontrol edilmektedir. Kan şekeri düştüğünde pankreastan salgılanan glukagon ve stres anında salınan adrenalin (epinefrin), hedef hücrelerde siklik AMP (cAMP) sentezini uyararak ardışık bir sinyal dizisini başlatmakta, böylece glikojen yıkımını hızla etkinleştirmektedir.
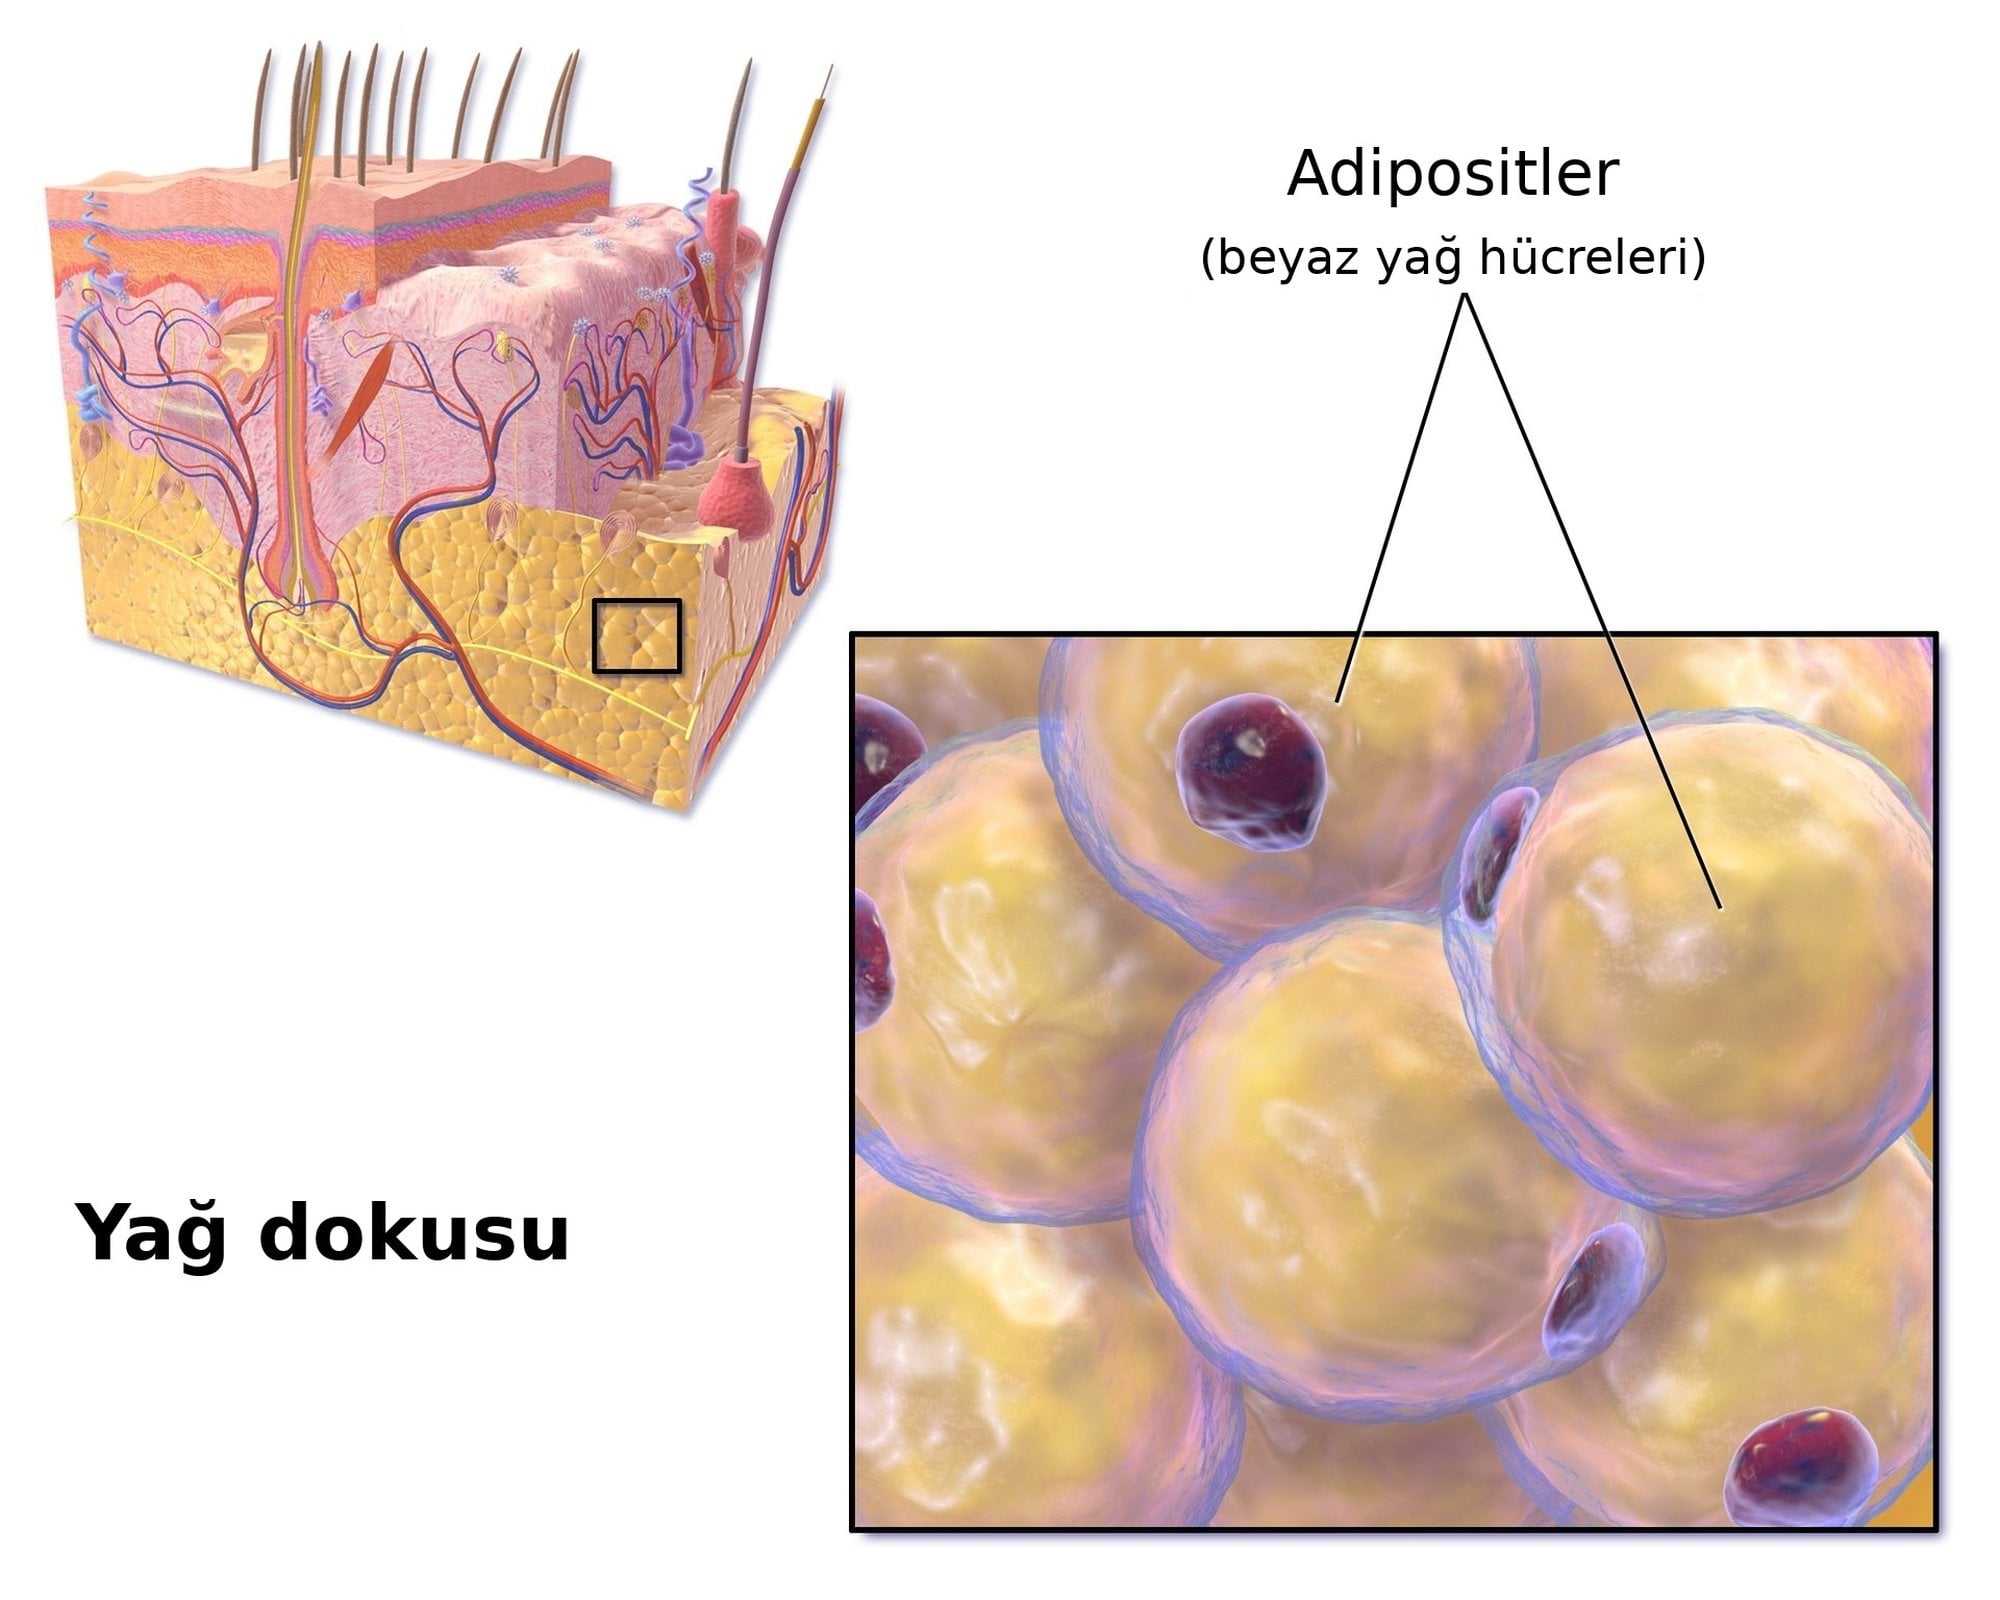
Tokluk hormonu insülin azaldığında ise tablo değişmektedir. İnsülin eksikliğinde katabolik yanıtların üzerindeki baskılanma zayıflar, dolayısıyla dokulardan kana doğru net bir substrat mobilizasyonu ortaya çıkmaktadır. Benzer şekilde uzun süreli açlıkta veya enerji harcamasının belirgin biçimde arttığı durumlarda yağ dokusundaki depolar devreye girmekte ve trigliseritler serbest yağ asitleri ile gliserole parçalanarak çalışan dokulara yakıt olarak sunulmaktadır.
Besin Enerjisi ve Metabolizma Hızı
Hücrelerin kesintisiz sürdürdüğü kimyasal tepkimeler, organizma ölçeğinde aldığımız besinlerin toplam enerji içeriğiyle doğrudan bağlantılıdır. Biyokimyada ve beslenme biliminde bu enerjiyi nicel olarak ifade etmek için kalori (İng: "calorie") birimi kullanılır, ancak günlük dilde ve gıda paketlerinde gördüğümüz değerler teknik anlamdaki küçük kalori değildir. Besin enerjisi ifade edilirken 1000 küçük kaloriye (cal) karşılık gelen kilokalori (İng: "kilocalorie"), yani 1 kcal veya 1 Cal birimi temel alınmaktadır. Dolayısıyla bir yiyeceğin etiketinde yazan her "kalori" aslında 1 kilokaloridir, yani 1000 küçük kaloriye karşılık gelmektedir.
Makro besinlerin enerji yoğunluğu birbirinden farklıdır. Sindirimle yapı taşlarına ayrılan karbohidratlar ve proteinler gram başına 4 kcal enerji sağlarken, yağlar gram başına 9 kcal enerji sunmaktadır.[8] Yağlar birim kütlede iki kattan fazla enerji barındırır, dolayısıyla vücudun uzun vadeli enerji rezervlerini neden ağırlıklı olarak yağ dokusunda tuttuğu da bu yoğunluk farkıyla açıkça anlaşılmaktadır. Hücreler bu üç yakıt grubunu oksitlerken açığa çıkan kilokalori miktarını kendi metabolik iş yüklerini karşılamak üzere kullanmaktadır.
Gıda paketlerinin üzerindeki besin değerleri tablosu bu enerjinin okura sunulduğu yerdir. Etikette yer alan kalori değeri, paketin tamamını değil, tanımlanmış tek bir porsiyonun enerjisini göstermektedir. Tablonun en üstünde belirtilen porsiyon büyüklüğü bir kişinin ne kadar yemesi veya içmesi gerektiğine dair tıbbi bir öneri niteliği taşımamaktadır. Paket içindeki toplam porsiyon sayısı dikkate alınmadığında tek öğünde alınan kilokalori miktarı kolayca yanlış hesaplanabilir.
Çözümlü örnek 4: Dört porsiyonluk bir lazanya paketinin tamamı tüketildiğinde kaç kilokalori alınır?
Verilenler: Bir lazanya paketinin besin etiketinde 1 porsiyonun 280 Cal (kcal) enerji içerdiği ve paketin toplam 4 porsiyondan oluştuğu bilgisidir.[14]
İstenen: Paketin tamamı tüketildiğinde vücuda alınan toplam enerji miktarıdır ().
1. adım: Tek bir porsiyonun sağladığı enerji miktarı paketteki toplam porsiyon sayısıyla çarpılmaktadır:[14]
Sonuç: Tek porsiyonu 280 kcal olan dört porsiyonluk lazanya paketinin tamamı yendiğinde vücuda toplam 1120 kcal enerji alınmaktadır.
Etiketlerdeki yüzdelik referans değerlerinin altında sıkça gördüğümüz günlük 2000 kcal ifadesi de benzer bir dikkat gerektirmektedir. Bu sayı genel beslenme tavsiyeleri için kullanılan standart bir kılavuzdur. Her bireyin günlük enerji ihtiyacı yaşına, cinsiyetine, boyuna, vücut ağırlığına ve fiziksel aktivite düzeyine göre bu değerin altında veya üzerinde olabilmektedir.[14]
Kalorimetri ve Bazal Metabolizma Ölçümü
Enerjinin harcanma hızı temel bir ölçüttür. Araştırmacılar, vücuda alınan besin enerjisinin hangi hızla harcandığını anlamak üzere yüzyılı aşkın süredir metabolizmayı birim zamandaki kalori miktarıyla ifade etmektedir. Zaman başına enerji dönüşümünde en temel referans noktası bazal metabolizma hızı (İng: "basal metabolic rate") kavramıdır, çünkü bu değer solunumun devam etmesi ve kan dolaşımının sürdürülmesi gibi kritik yaşamsal faaliyetleri korumak için gereken en düşük enerji harcamasını kapsamaktadır.
Ölçüm koşulları oldukça sıkıdır. Bu en düşük harcama düzeyini doğru ölçmek titiz laboratuvar standartları gerektirmektedir. Bazal metabolizma çalışmalarının tarihindeki önemli dönüm noktalarından biri, J. Arthur Harris ve Francis G. Benedict'in 8 Ekim 1918'de bildirdiği biyometrik araştırmadır.[13] Özgün tanımda bazal metabolizma, son öğünden 12 ilâ 14 saat sonra, yani emilim sonrası açlık durumunda ve tam kas istirahati halindeki bir bireyin ısı üretimi olarak belirlenmiştir. Ölçüm sırasında bireyin üşümemesi veya terlememesi için termonötr çevre koşullarının sağlanması büyük önem taşımaktadır.
Harris ve Benedict, 1918 tarihli bu klasik çalışmalarında ölçüm hatası yaratan en önemli iki kaynağın kas hareketleri ve yakın zamanda yenilen yiyeceklerin uyarıcı etkisi olduğunu vurgulamıştır. Fakat bu katı açlık ve tam dinlenme şartlarını her klinik ortamda sağlamak güçtür, dolayısıyla uygulamada sıklıkla dinlenme metabolizma hızı (İng: "resting metabolic rate") ölçümüne başvurulmaktadır. Bu ölçüm daha esnek koşullarda gerçekleştirilmektedir.
Bir insanın birim zamanda ürettiği ısı veya harcadığı enerji laboratuvarda nasıl ölçülür? Bunun için başlıca şu yöntemler kullanılmaktadır.
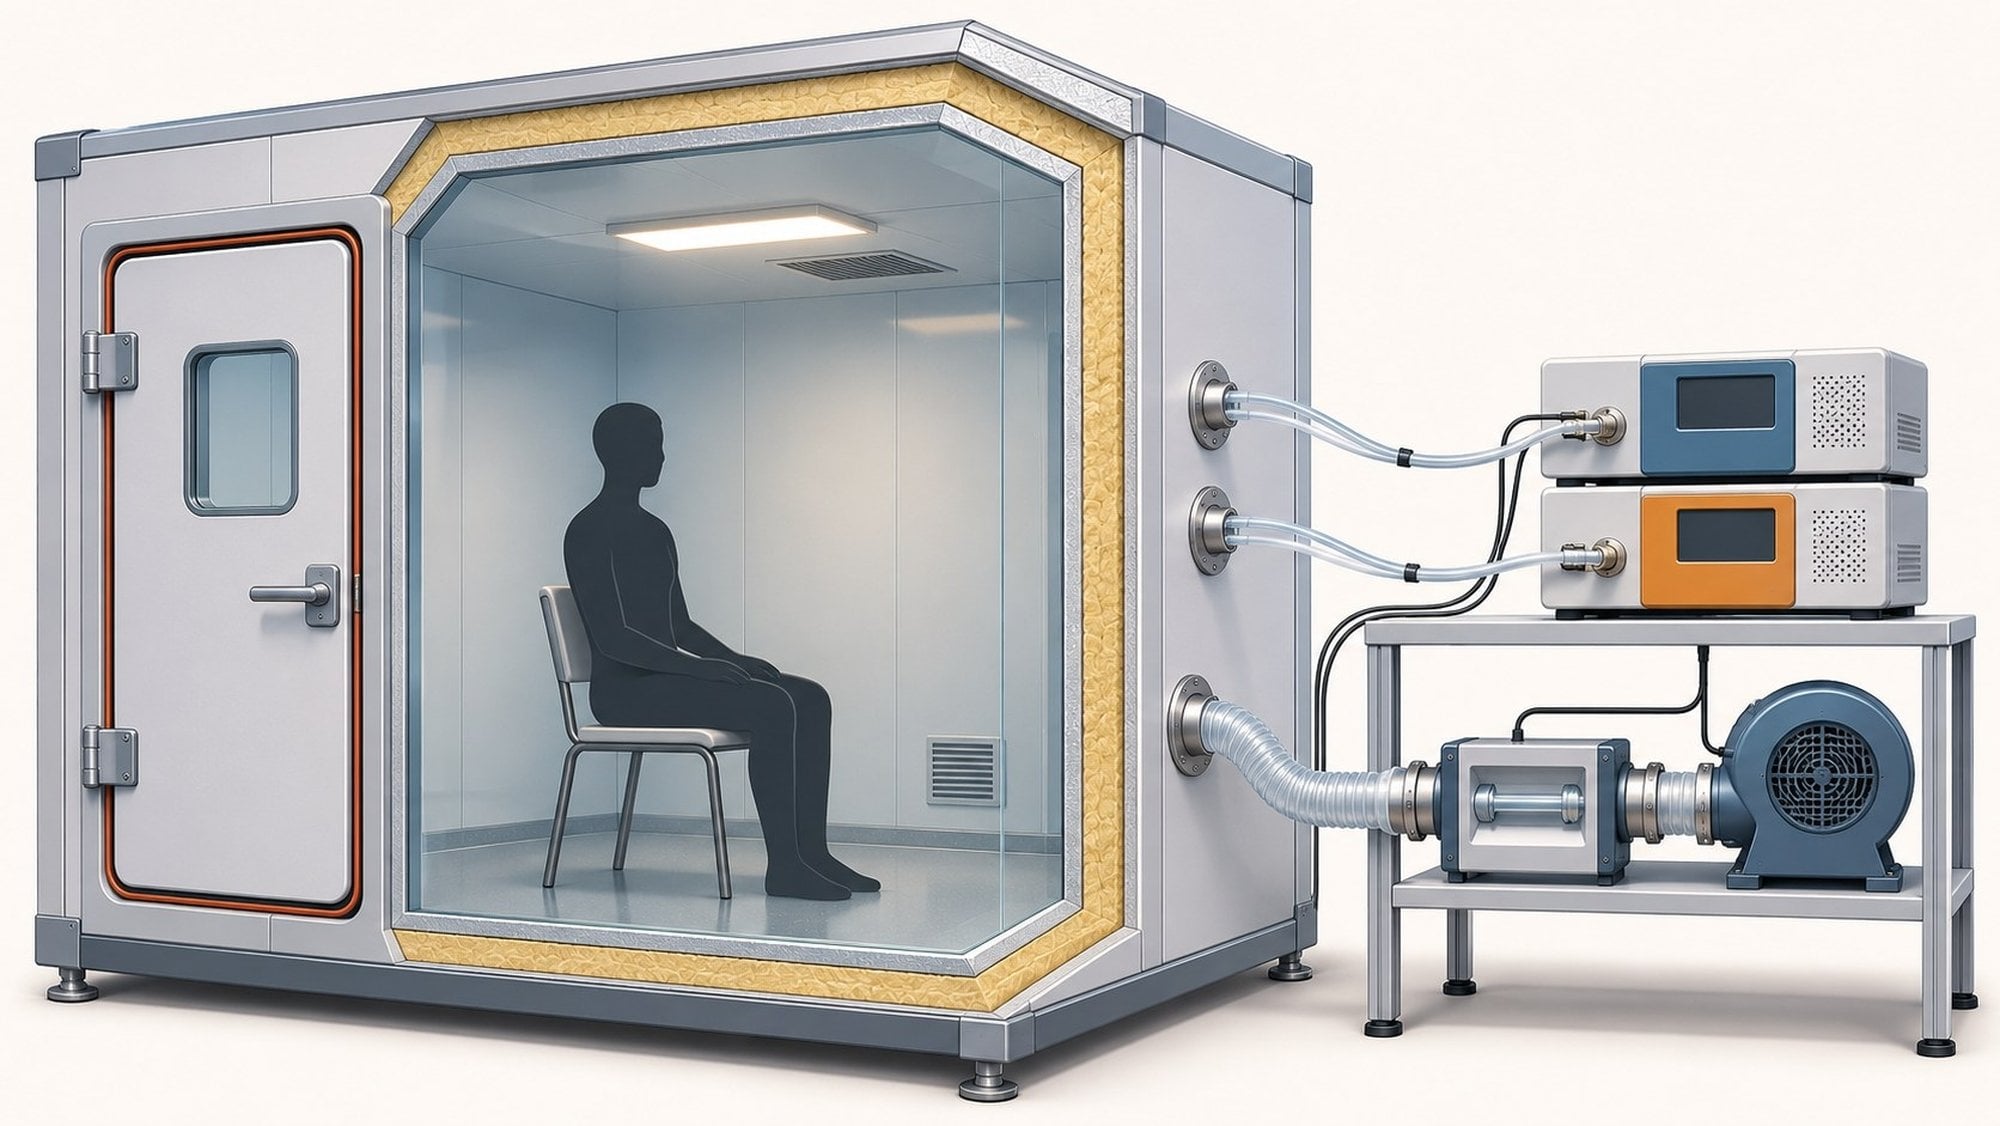
Doğrudan kalorimetri, bireyin yalıtılmış bir ölçüm bölmesi içinde belirli bir süre boyunca ürettiği toplam ısı miktarını doğrudan ölçmektedir. Dolaylı kalorimetri ise oksidatif fosforilasyonun oksijen tüketimine dayanmasından yararlanarak belirli bir sürede tüketilen toplam oksijen (O₂) ve solunum havasıyla verilen karbondioksit (CO₂) miktarları üzerinden enerji harcamasını hesaplamaktadır. * Yirmi dört saatlik solunum odaları, dolaylı kalorimetriyi daha uzun bir süreye yaymaktadır. Birey gün boyu normal öğünlerini tüketirken, fizyolojik koşullara daha yakın bir ortamda incelenebilmektedir.
Kalorimetri cihazlarının bulunmadığı durumlarda araştırmacılar biyometrik tahmin denklemlerine yönelmektedir. Harris ve Benedict, 136 erkek, 103 kadın ve 94 yenidoğan üzerinde yaptıkları ölçümleri biyometrik olarak incelediklerinde hem boy uzunluğunun hem de vücut ağırlığının bazal metabolizmayı tahmin etmede birbirinden bağımsız önem taşıdığını saptamıştır.[13] Böylece ikili, bu verilerden yola çıkarak günlük ısı üretimini kilogram cinsinden ağırlık (), santimetre cinsinden boy () ve yıl cinsinden yaş () değişkenleriyle tahmin eden çoklu regresyon denklemleri geliştirmiştir.
Günlük Enerji Harcamasının Bileşenleri
Bir insanın yirmi dört saat boyunca harcadığı toplam enerji tek bir sürece dayanmamaktadır, çünkü günlük toplam harcama bazal metabolizma hızı, diyete bağlı termogenez (İng: "diet-induced thermogenesis") ve fiziksel aktivitenin enerji maliyeti olmak üzere üç ana bileşenden oluşmaktadır.[10] En büyük payı yaşamsal işlevler oluşturmaktadır. Örneğin hareketsiz yaşam süren bireylerde bazal metabolizma hızı günlük toplam harcamanın yaklaşık %60 ilâ %75'ini tek başına oluşturabilmektedir, yani koltuğumuzda oturduğumuz bir günde harcadığımız enerjinin açık ara en büyük kısmı sadece hayatta kalma süreçlerimize gitmektedir.[15]
İkinci bileşen olan diyete bağlı termogenez, yemek yedikten sonra enerji harcamasının açlıktaki bazal düzeyin üzerine çıkması olarak tanımlanmaktadır. Sindirimin de bir enerji maliyeti vardır. Bu ek harcama, besin ögelerinin bağırsaklardan emilimi, metabolizmalarının ilk basamakları ve hemen oksitlenmeyen besinlerin dokularda depolanmasıyla ilişkilidir. Enerji dengesindeki bir kişide karma bir diyetin termik etkisi, günlük toplam enerji harcamasının %5 ilâ %15'i kadardır.[10]
Her makro besin ögesinin vücutta işlenme maliyeti ise aynı değildir. Yine de, besinin termik etkisini belirleyen başlıca etken, alınan yiyeceğin toplam enerji içeriğidir. Bunu besinin içindeki protein payı izlemektedir.[10] Oranlar besin grubuna göre ayrışmaktadır.
Yağlarda tüketilen yağ enerjisinin %0 ilâ %3'ü işlenme ve depolanma süreçlerinde harcanmaktadır. Karbohidratlarda alınan karbohidrat enerjisinin %5 ilâ %10'u metabolik işlem maliyeti olarak tüketilmektedir. * Proteinlerde ise alınan protein enerjisinin %20 ilâ %30'u emilim, ilk metabolik dönüşüm ve depolama süreçlerinde ısıya dönüşmektedir.
Diyete bağlı termogenezi laboratuvarda doğru ölçmek kolay değildir. Seçilen test öğününün büyüklüğü ve yemekten sonraki ölçüm aralığının uzunluğu çalışmalarda yönteme bağlı ciddi sorunlar yaratabilir, çünkü gözlem süresi kısa tutulduğunda sindirimin geç evrelerindeki harcama gözden kaçabilir. Yirmi dört saatlik solunum odaları ise ölçümü fizyolojik koşullara daha yakın bir ortamda yapmaya olanak tanımaktadır.[10]
Üçüncü bileşen olan fiziksel aktiviteye bağlı enerji harcaması ise günlük toplam harcamanın kişiden kişiye ve günden güne en çok değişen parçasıdır. Bu kalem sadece planlı antrenmanları kapsamamaktadır. Günlük kendiliğinden hareketlerin tamamı, örneğin işe yürüyerek gitmek, yazı yazmak, oturduğumuz yerde kıpırdanmak ve yük kaldırmak da egzersiz dışı hareketlere bağlı ısı üretimi kapsamında ciddi bir enerji harcaması yaratmaktadır.
Enerji Dengesi ve Bireysel Farklılıklar
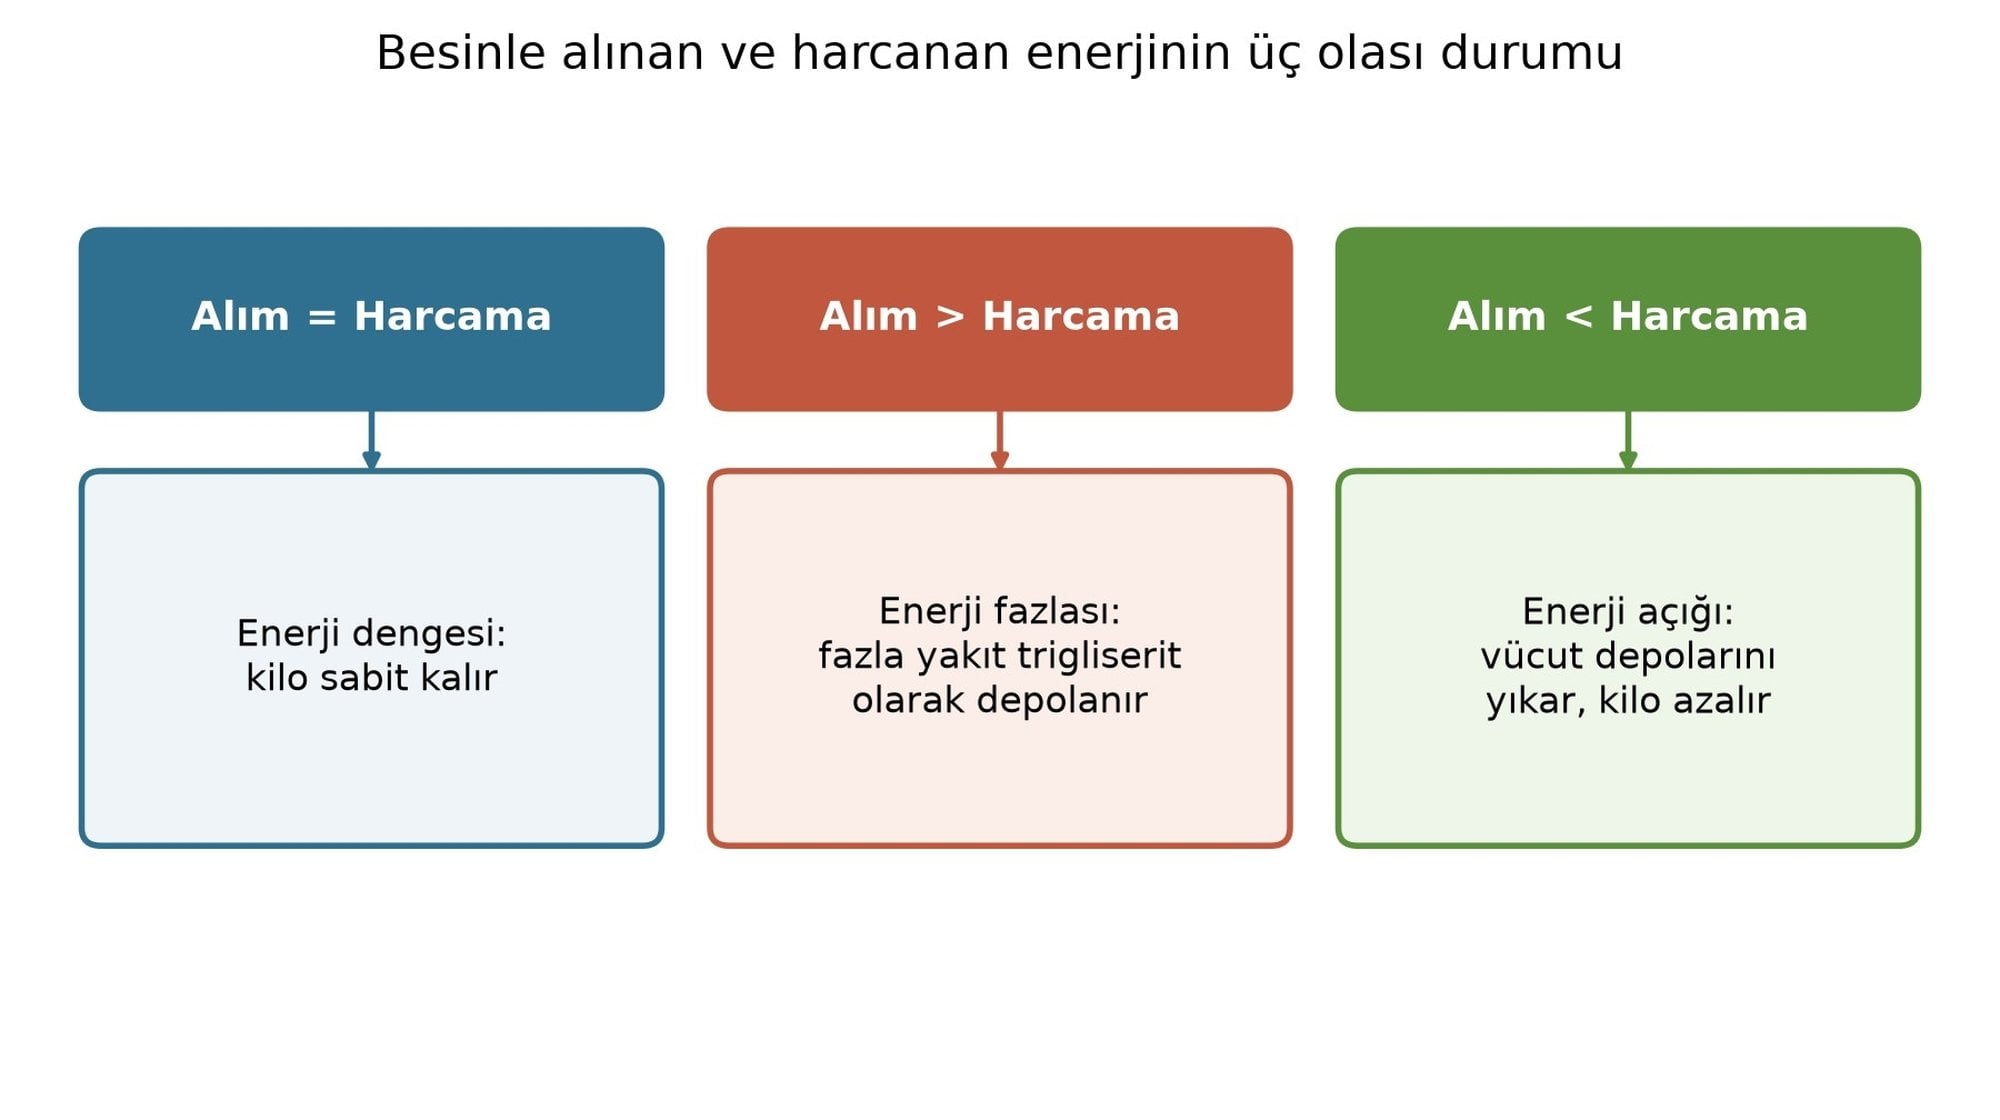
Besinlerle alınan kilokaloriler ile üç ana bileşen üzerinden harcanan kilokaloriler bir araya geldiğinde tüm vücudun enerji dengesi (İng: "energy balance") tablosu ortaya çıkmaktadır. Enerjinin korunumu ilkesi burada da geçerlidir. Besinlerle alınan enerji miktarı vücudun harcadığı toplam enerji miktarına eşit olduğunda organizma enerji dengesinde bulunmaktadır, dolayısıyla bu eşitlik korunduğu sürece vücudun toplam enerji depoları ve ağırlığı sabit kalmaktadır.[11]
Ancak günlük yaşamda bu eşitlik sıkça bozulmaktadır. Alınan enerjinin harcanan enerjiyi uzun süre aştığı kalıcı enerji fazlası, fazla yakıtın başta trigliseritler olmak üzere dokularda biriktirilmesiyle kilo artışına yol açmaktadır. Toplam enerji harcaması kalori alımını belirgin bir süre boyunca aştığında vücut kendi depolarını yıkar, böylece kilo kaybı gerçekleşmektedir.
Enerji dengesini oluşturan alım ve harcama bileşenleri birbirinden bağımsız sayılar değildir, çünkü herhangi bir bileşende meydana gelen değişiklik diğer bileşenleri de doğrudan etkileyebilir. Bir kişi besin alımını kısıtladığında veya fiziksel aktivitesini değiştirdiğinde, vücudun dinlenme harcaması ve hareket etme eğilimi de bu yeni duruma tepki vererek başlangıçtaki aritmetik hesabı değiştirmektedir.
Kilo Değişimi ve Metabolik Uyum
Kilo verme süreçlerinde başlangıçta hızlı ilerleyen tartı kaybının bir süre sonra yavaşlaması, enerji dengesi bileşenleri arasındaki bu karşılıklı etkileşimle kısmen açıklanabilmektedir. Vücut kütle kaybettikçe günlük toplam enerji gereksinimi de düşer, çünkü taşınan ve canlı tutulan doku miktarı azalmıştır.[11] Dolayısıyla enerji gereksinimi sabit varsayılmamalıdır. İlk aşamada enerji açığı oluşturan bir diyet, vücut kütlesi düştükçe bu yeni ve daha düşük harcama düzeyine eşitlenebilmektedir.
Yağ dokusu pasif bir yakıt deposu değildir. Aksine yağ dokusu aktif bir endokrin organ gibi işlev görmekte, yapısındaki yağ hücreleri (adipositler) de iştahı baskılayan leptin hormonunu salgılamaktadır.[9] Yağ depoları dolduğunda artan leptin sinyali beyne tokluk bilgisi iletir, oysa açlıkta veya yağ kütlesi azaldığında değişen hormonal sinyaller enerji alımını ve harcamasını yeniden düzenlemektedir.
Hormonlar ve sinir sistemi de devrededir. Dinlenme halindeki enerji harcaması üzerinde tiroit hormonu ve sempatik sinir sistemi etkinliği doğrudan artırıcı bir etki göstermektedir. Hem dış ortamın çevre sıcaklığı hem de vücudun kendi iç sıcaklığı dinlenme harcamasını değiştirir, çünkü vücut sıcaklığı yükseldiğinde veya organizma soğuğa karşı ısı üretmek zorunda kaldığında bazal düzeyin üzerinde enerji tüketilmektedir.
Bazı klinik tablolar bu dengeyi hızla bozabilir. Tiroit bezinin aşırı çalıştığı hipertiroidi, kanser ve ağır yanıklar gibi tıbbi tablolar vücutta hipermetabolik bir hal (aşırı artmış metabolik hız) yaratmaktadır. Bu tür hipermetabolik durumlar ciddi kilo kaybına katkıda bulunabilmektedir.
Yaş, Vücut Bileşimi ve Tahmin Sınırları
Dinlenme harcaması bireyden bireye değişmektedir. Sağlıklı bireyler arasında bu harcamanın neden farklılaştığını sorduğumuzda karşımıza yaş, cinsiyet, vücut bileşimi ve genetik etkenler çıkmaktadır. Bu etkenler içinde dinlenme metabolizma hızının en güçlü tekil öngördürücüsü yağsız vücut kütlesidir (İng: "fat-free mass").[9]
Herman Pontzer ve IAEA DLW Database Consortium çatısı altındaki çalışma arkadaşlarının 2021 yılında yayımladıkları geniş ölçekli araştırma, yetişkinlikte harcamanın yaşla nasıl değiştiğini ölçmüştür. Araştırmacılar, vücut büyüklüğüne göre düzeltilmiş toplam ve bazal enerji harcamalarının 20 ilâ 60 yaş arasındaki yetişkinlik dönemi boyunca sabit ve kararlı kaldığını ortaya koymuştur.[12] Aynı çalışmada yağsız vücut kütlesi ve yağ kütlesi birlikte çok değişkenli modellere dahil edildiğinde, cinsiyetin toplam enerji harcaması üzerinde bağımsız bir etkisi saptanmamıştır.[12] Yani bu modellerde kadınlar ve erkekler arasında görülen ortalama harcama farkı, yağsız doku ve yağ dokusu kütleleri hesaba katıldığında cinsiyete ayrıca bağlanamamıştır.[12]
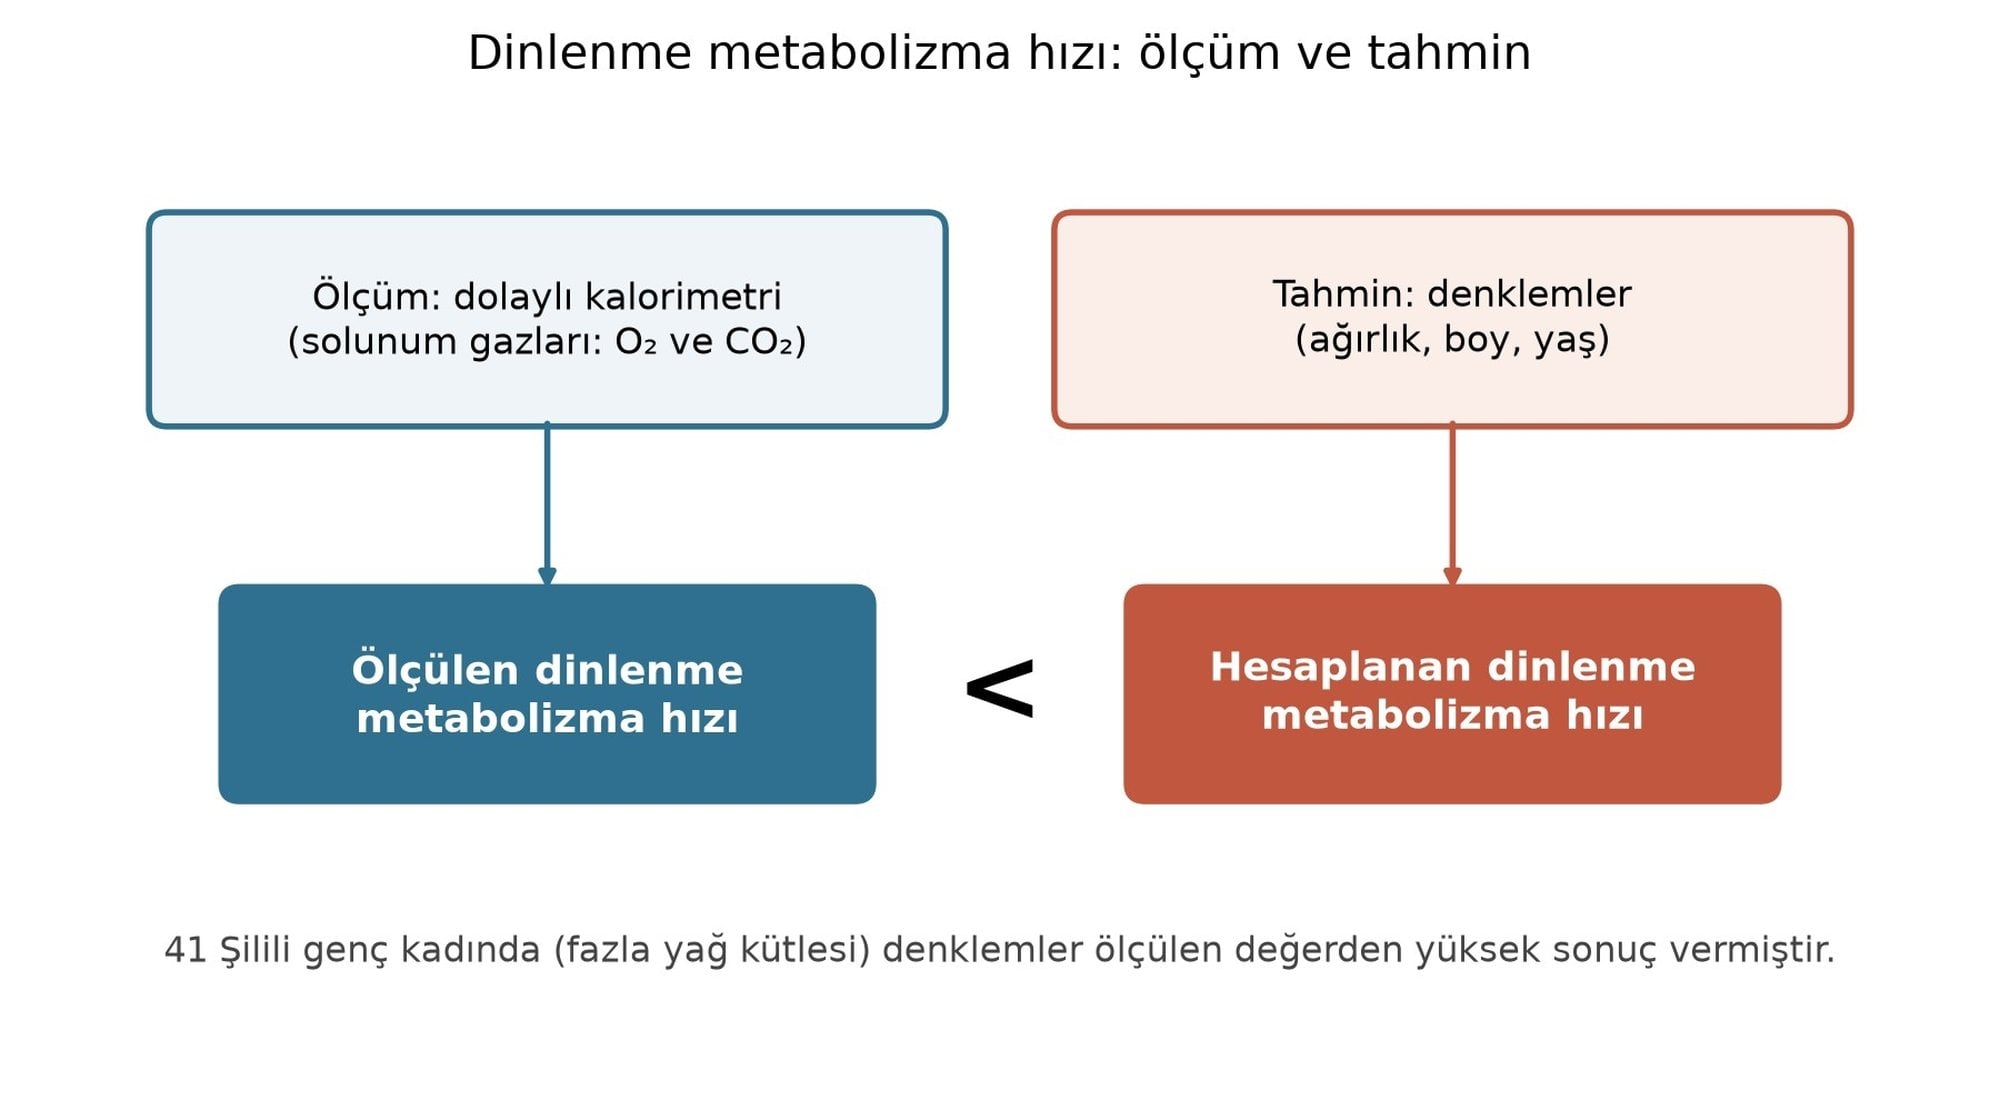
Doku bileşiminin bu belirleyici gücü, sadece ağırlık, boy ve yaşa dayanan klasik tahmin denklemlerinin önemli bir sınırını da açığa çıkarır, çünkü bireyin yağ oranı değiştikçe toplam ağırlık içindeki metabolik olarak aktif yağsız kütle payı da değişmektedir. Örneğin Eduard Maury-Sintjago, Alejandra Rodríguez-Fernández ve Marcelo Ruíz-De la Fuente tarafından 2023 yılında yayımlanan kesitsel bir araştırma söz konusu sınırı nicel verilerle ortaya koymuştur. Çalışmanın örneklemini aşırı kilolu veya obez kategorisinde yer alan, 18 ilâ 28 yaşlarındaki 41 genç Şilili kadın oluşturmuştur.[15]
Araştırmacılar bu örneklemde dolaylı kalorimetriyle ölçülen dinlenme metabolizma hızını yaygın klinik tahmin formülleriyle karşılaştırmıştır. Bulgular net bir sapma göstermiştir. İncelenen bu genç kadın örnekleminde tahmin denklemlerinin tamamı, fazla yağ kütlesi bulunan bireylerde dinlenme metabolizma hızını olduğundan daha yüksek tahmin etmiştir. Aynı örneklemde Mifflin-St Jeor denklemi diğer formüllere göre daha küçük bir sapma göstermiştir, ancak bu denklem de hatasız değildir.[15] Bu sapmanın olası bir nedeni, toplam vücut ağırlığına dayanan formüllerin artan kütlenin ne kadarının düşük enerji harcayan yağ dokusundan geldiğini ayırt edememesidir.
Sonuç
Metabolizma, canlı hücrelerin dışarıdan aldıkları besinleri katabolik yollarla parçalayıp anabolik sentezlerle yeni yapılara dönüştürdüğü, bu iki zıt akışı ise ATP döngüsü üzerinden eşleştirdiği kesintisiz bir kimyasal tepkimeler bütünüdür. Hücrenin içinden tüm organizmaya uzanan bu ağda enerji ne yoktan var edilmekte ne de bağ kırarak bedavaya kazanılmaktadır.[16] Süreçteki her basamak termodinamik yasalara uymakta, metabolik yollar da enzimler ve hormonlar gibi düzenleyici unsurlarla kontrol edilmektedir.
Bu tablo, beslenme ve klinik değerlendirmelerde tek tip sayıların neden yetmediğini göstermektedir. Enerji dengesi sadece alınan ve harcanan kilokalorilerin basit bir çıkarması değildir. Vücut kütlesi azaldıkça enerji gereksinimi düşmektedir. Dinlenme harcamasının en güçlü öngördürücüsü de toplam ağırlık değil, yağsız vücut kütlesidir.
Örneğin 18 ilâ 28 yaşlarındaki, fazla yağ kütlesine sahip 41 Şilili kadını kapsayan çalışmada Mifflin-St Jeor dahil incelenen tüm formüller dinlenme harcamasını olduğundan yüksek tahmin ederken, aralarındaki en küçük sapma Mifflin-St Jeor denkleminde görülmüştür.[15] Hücrede verimsiz döngüleri sınırlayan karşılıklı düzenleme gibi, organizma ölçeğinde de hesaplama formüllerinin yanı sıra bireyin doku bileşimini gözeten ölçümler önem taşımaktadır.
- Tebrikler!1
- Bilim Budur!1
- Muhteşem!0
- Mmm... Çok sapyoseksüel!0
- Güldürdü0
- İnanılmaz0
- Umut Verici!0
- Merak Uyandırıcı!0
- Üzücü!0
- Grrr... *@$#0
- İğrenç!0
- Korkutucu!0
Bilimsel bir hata mı gördün?
Evrim Ağacı'na her ay sadece 1 kahve ısmarlayarak destek olmak ister misin?
Şu iki siteden biriyle hemen destek olabilirsin:
kreosus.com/evrimagaci | patreon.com/evrimagaci
Çıktı Bilgisi: Bu sayfa, Evrim Ağacı yazdırma aracıyla 20.11.2026 17:59:23 tarihinde oluşturuldu. Evrim Ağacı'ndaki içerikleri birden fazla editör sürekli gözden geçiriyor, güncelliyor ve geliştiriyor. Bu çıktıdan sonraki güncellemeleri görmek ve içeriğin en güncel hâlini okumak için şu adrese git: evrimagaci.org/s/24174
İçerik Kullanım İzinleri: Evrim Ağacı'ndaki yazılı içerikler orijinallerine hiçbir şekilde dokunulmadığı sürece izin alınmaksızın paylaşılabilir, kopyalanabilir, yapıştırılabilir, çoğaltılabilir, basılabilir, dağıtılabilir, yayılabilir, alıntılanabilir. Ancak bu içeriklerin hiçbiri izin alınmaksızın değiştirilemez ve değiştirilmiş hâlleri Evrim Ağacı'na aitmiş gibi sunulamaz. Benzer şekilde, içeriklerin hiçbiri, söz konusu içeriğin açıkça belirtilmiş yazarlarından ve Evrim Ağacı'ndan başkasına aitmiş gibi sunulamaz.