Kemosentez Nedir? Canlılar Işık Olmadan Nasıl Besin Üretir?
Zifiri Karanlıkta Amonyak ve Kükürtle Yaşam Kurmak Mümkün mü?


Bu Makalede Neler Öğreneceksin?
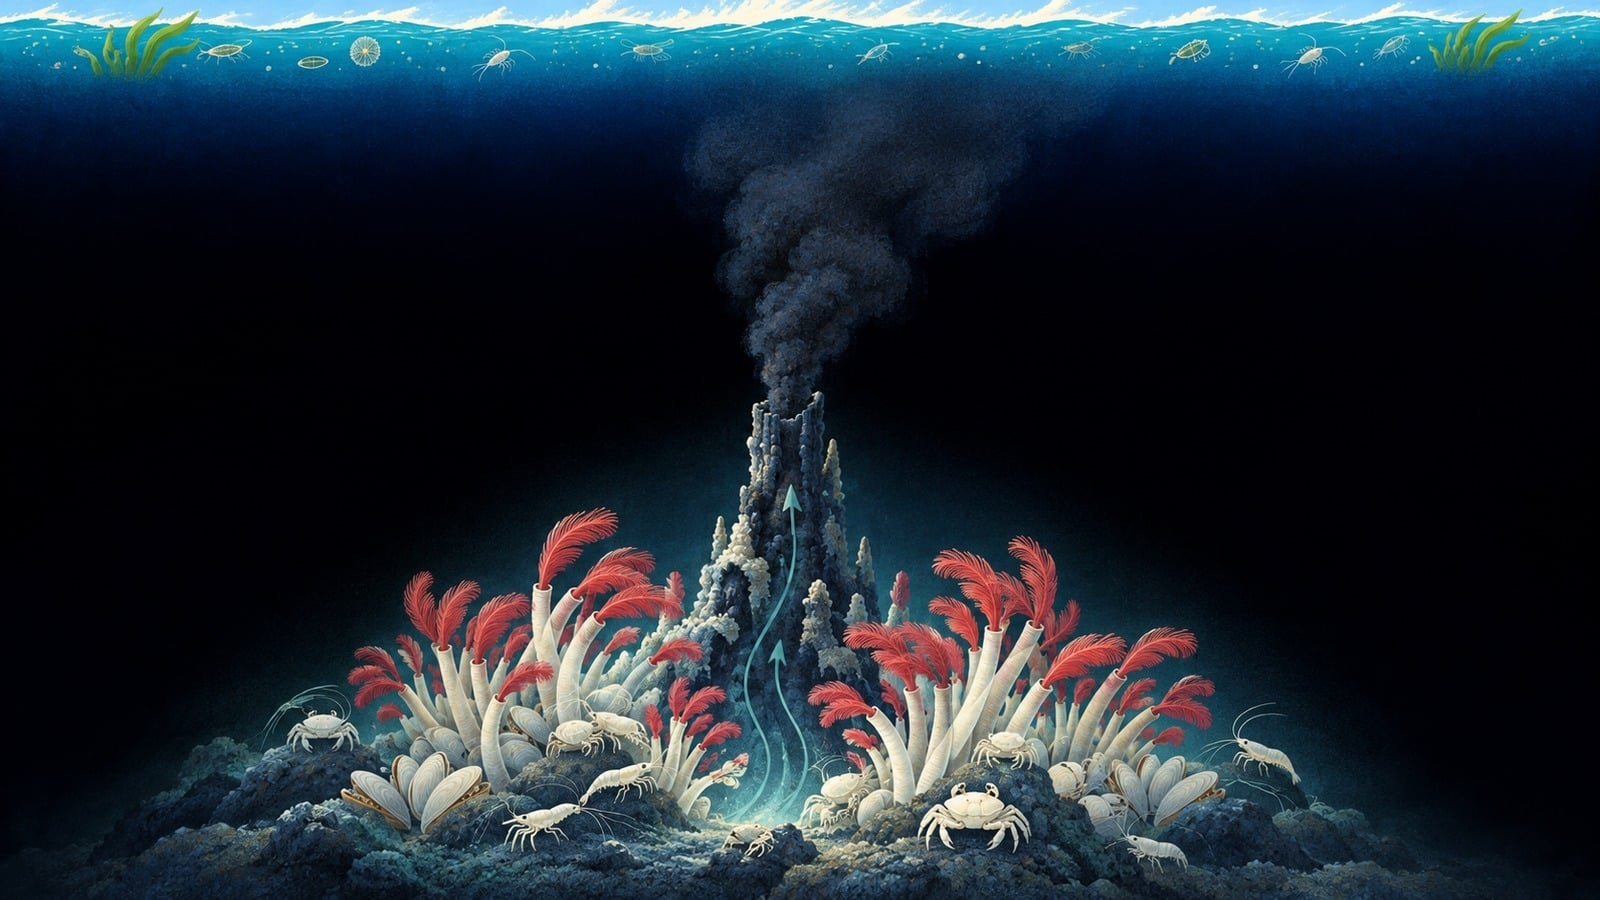
Bu bölümü yapay zekâ hazırlar.- Kemosentez, bazı bakteri ve arkelerin güneş ışığı olmadan inorganik maddelerden enerji elde edip karbondioksitten organik besin üretmesidir.
- Bu mikroorganizmalar hidrojen sülfür, amonyum, demir veya hidrojen gibi maddeleri kullanarak derin okyanuslarda ve karanlık mağaralarda besin zincirinin temelini oluşturur.
- Kemosentez enerji ve karbon üretimini farklı hücresel aşamalarda yürütür; çeşitli yolları azot, kükürt, demir ve karbon döngülerine katkı sağlar.
Kemosentez (İng: "chemosynthesis"), canlıların güneş ışığına gereksinim duymadan inorganik maddelerin kimyasal tepkimelerinden açığa çıkan enerjiyi kullanarak kendi besinlerini üretmesi sürecidir. Karasal ormanlardan sığ denizlere kadar aşina olduğumuz yüzey ekosistemlerinde besin zincirinin ilk halkasını güneş enerjisini yakalayan yeşil bitkiler oluşturmaktadır. Ancak bitkiler karanlıkta yaşayamamaktadır. Güneş ışığının erişemediği derin okyanus çukurlarında ve deniz mağaralarının iç bölümlerinde klorofilli üreticilerin varlığı bu yüzden büyük ölçüde kısıtlanmaktadır.
Bu karanlık ortamlarda belirli bakteri ve arke grupları devreye girmektedir. Mikroskobik üreticiler çevredeki hidrojen sülfür, amonyum, nitrit, iki değerlikli demir ya da hidrojen gazı gibi maddeleri kimyasal tepkimelere sokarak organik madde (İng: "organic compound") sentezlemektedir. Üretilen bu besinler sadece mikroorganizmaların kendisini doyurmamaktadır. Zifiri karanlıkta yaşayan çok hücreli hayvan toplulukları da bu mikroskobik üretimle beslenmektedir. Bilim dünyasında uzun yıllar boyunca yeryüzündeki bütün canlılığın doğrudan ya da dolaylı biçimde Güneş'e bağımlı olduğu varsayılmıştır. Bu varsayım artık geçerliliğini yitirmiştir. 1977 yılında araştırmacılar derin okyanus tabanındaki bir hidrotermal bacayı ilk kez gözlemlediğinde beklenmedik bir manzarayla karşılaşmıştır. Tek bir ışık fotonunun bile ulaşmadığı bu zifiri karanlıkta gelişip serpilen yoğun bir canlı topluluğu saptanmıştır.[1]
Okyanus tabanındaki bu çarpıcı gözlemden yaklaşık bir asır önce yürütülen toprak ve su mikrobiyolojisi araştırmaları, ışıksız besin üretiminin ilk deneysel kanıtlarını çoktan ortaya koymuştur. Kimyasal enerjiyle çalışan mikroorganizmalar yeryüzündeki azot, kükürt, demir ve karbon döngülerinde görev almaktadır. Bu yazıda söz konusu kimyasal üretim mekanizmasının hücre içinde nasıl işlediğini, hangi prokaryot gruplarınca yürütüldüğünü ve doğadan endüstriye uzanan etkilerini adım adım ele alacağız.
Videonun Sayfası: Dünya'da Bizden Farklı Yaşam Formları Olabilir mi?
Kemosentez Nedir?
Biyokimyasal düzeyde kemosentez olayı, çevreden alınan bir inorganik madde (İng: "inorganic compound") çeşidinin yükseltgenmesinden sağlanan kimyasal enerjinin şeker ve diğer hücresel besin moleküllerinin inşasında kullanılmasıdır. Enerji gereksinimini sadece inorganik tepkimelerden karşılayan prokaryotlar atmosferdeki ya da suda çözünmüş haldeki karbondioksidi (CO₂) özümseyerek kendi organik yapıtaşlarını kurmaktadır. Bu canlılara kemoototrof (İng: "chemoautotroph") denmektedir. Güncel mikrobiyoloji yazınında bu beslenme biçimi genel olarak doğrudan kemosentez kavramıyla eş anlamlı biçimde anılmaktadır.[15] Işıksız ekosistemlerde birincil üretimi üstlenen kemoototrof canlılar, cansız jeokimyasal dünyayla biyolojik besin ağları arasındaki ilk köprüyü kurmaktadır. Güneş ışığının ve bitkilerin bulunmadığı ortamlarda diğer organizmaların tüketebileceği taze organik besinleri bu prokaryotlar üretip besin zincirine sunmaktadır.
İnorganik bileşiklerden kimyasal enerji elde eden her mikroorganizma yine de kendi besinini sıfırdan üreten bir kemoototrof değildir. Enerji kazanımı ile karbon temini ayrı süreçlerdir. Hücresel enerji metabolizmasında inorganik maddelerin oksidasyonu (İng: "oxidation") ile enerji üretilmesi, karbon kaynağının nereden alındığından bağımsız ilerlemektedir. Dolayısıyla bazı mikroorganizmalar enerji ve elektron gereksinimlerini inorganik bileşiklerden karşılarken karbon ihtiyaçları için çevrede hazır bulunan organik maddelere bağımlı kalmaktadır. Derin denizlerdeki ortaklıklarda yaşayan bazı kemosentetik (İng: "chemosynthetic") mikroorganizmalar, metan (CH₄) gibi tek karbonlu organik bileşikleri hem enerji hem de karbon kaynağı olarak tüketmektedir.[15] Bu mikroorganizmalar hücresel karbon gereksinimlerini söz konusu tek karbonlu bileşiklerden karşılamaktadır.[15] Doğadaki metabolik sınırlar bu nedenle her zaman keskin çizgilerle ayrılmamaktadır.
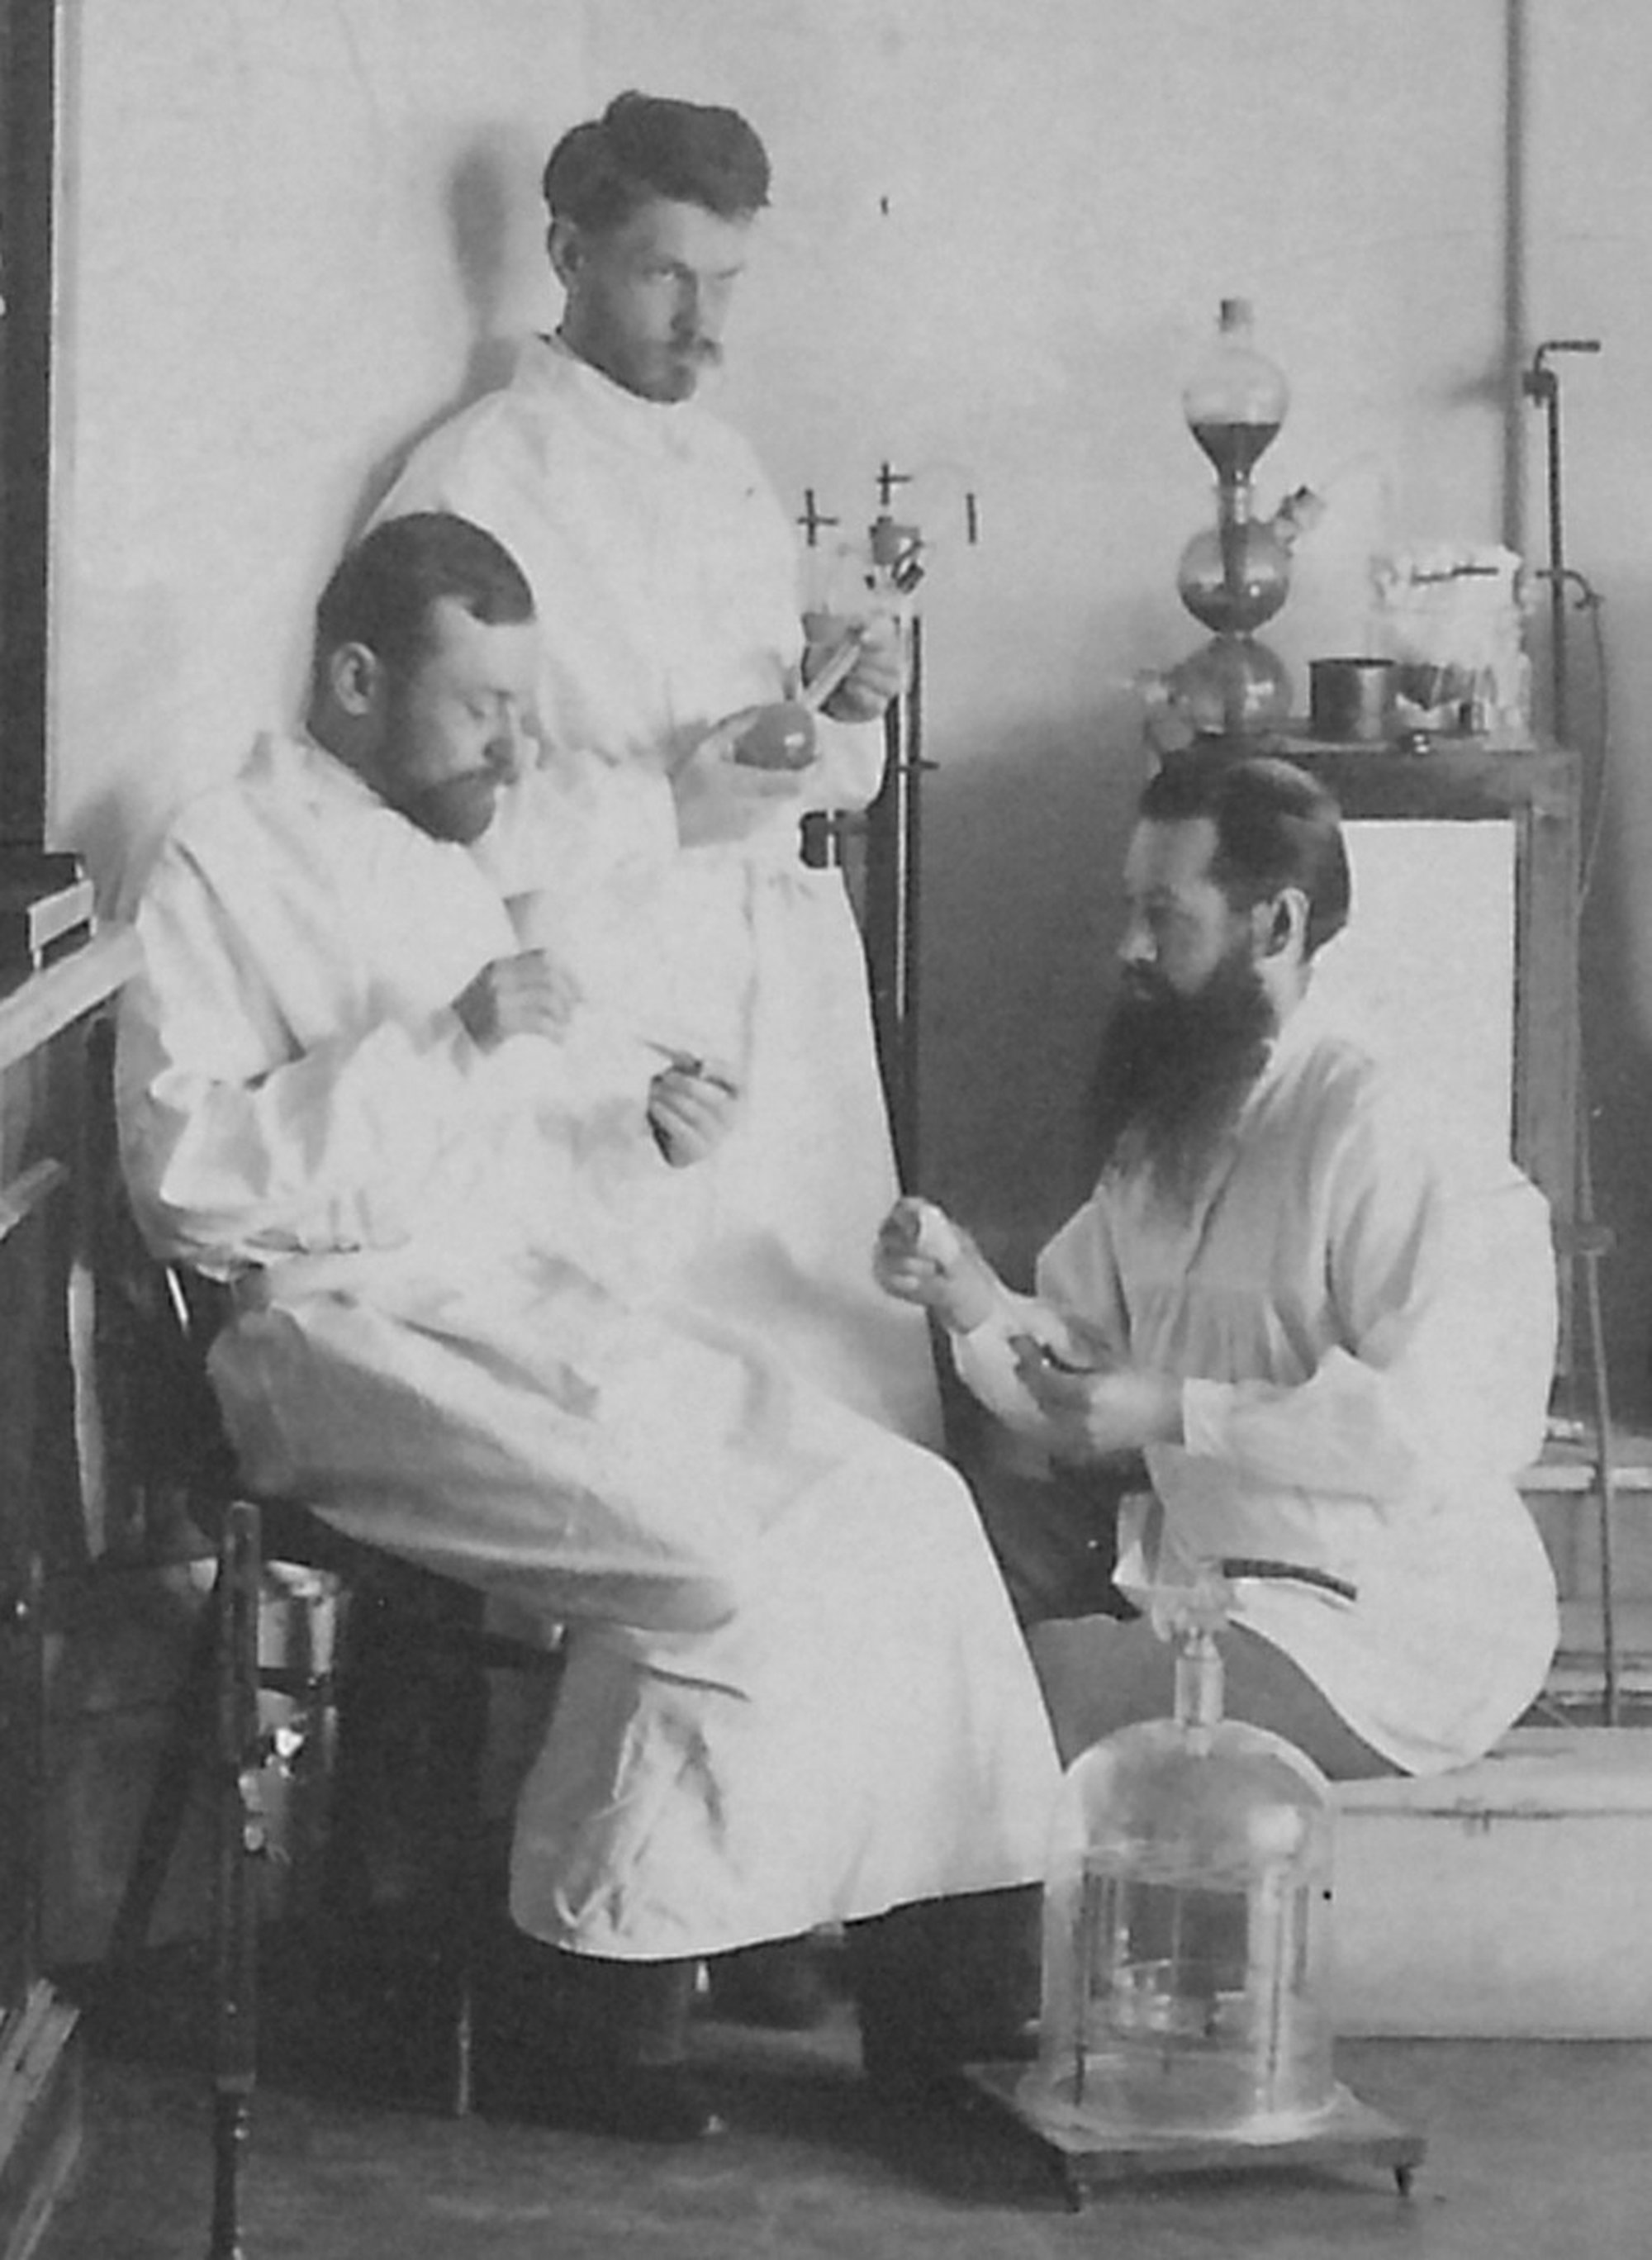
Işıktan bağımsız bu sıra dışı yaşam biçiminin keşif öyküsü, derin okyanus dalışlarından çok önce sıradan toprak ve atık su örneklerinde başlamıştır. On dokuzuncu yüzyılın son çeyreğine kadar topraktaki amonyumun nitrata dönüşmesinin cansız yüzeylerde kendiliğinden ilerleyen basit bir kimyasal tepkime olduğu düşünülmüştür. Fakat 1877 yılında bu yerleşik görüş sarsılmıştır. Jean-Jacques Schloesing ve Achille Müntz, kanalizasyon sularında ve toprakta gerçekleşen amonyum oksidasyonunun doğrudan yaşayan mikroorganizmalarca yürütülen biyolojik bir süreç olduğunu deneysel olarak kanıtlamıştır.[5]
Bu öncü bulgunun hemen ardından 1879 yılında Robert Warington, topraktaki nitrifikasyon sürecinin tek bir hamlede tamamlanmadığını saptamıştır. Warington'ın dikkatli laboratuvar gözlemleri, amonyumun nitrata dönüşümünün birbirini izleyen iki ayrı biyolojik basamak halinde ilerlediğini ilk kez ortaya koymuştur.[5] Ancak bu bakterileri organik besin içeren klasik kültür ortamlarında tek başına çoğaltmak çok güç olduğundan ilk saf nitrifikasyon kültürünü gerçekte kimin izole ettiği tartışmalı kalmıştır.[5] Tarihsel düğümü çözen kavramsal sıçrama 1887 ilâ 1890 yılları arasında Winogradsky tarafından gerçekleştirilmiştir. Strasbourg Üniversitesi'nde çalışan araştırmacı 1887 yılında Beggiatoa cinsi kükürt okside edici bakteri (İng: "sulfur-oxidizing bacterium") topluluklarını incelemiştir. Bu çalışma sonucunda kükürt okside eden bakterilerin inorganik maddelerden enerji sağlayabildiği, yani litotrofi özelliği saptanmıştır.[5]
Winogradsky bu keşfini nitrifikasyon mikroorganizmalarına taşıyarak 1890 yılında yayımladığı ünlü makalesinde incelediği bakterinin yaşamı için gereken bütün enerjiyi amonyağın oksidasyonundan sağladığını bildirmiştir.[4] Kükürt ve iki değerlikli demir tuzlarını kullanan mikroorganizmaların da aynı fizyolojik tipe ait olduğunu savunmuştur. Güneş ışığı artık zorunlu sayılmamıştır. Araştırmacı bu bulgulardan yola çıkarak gezegenimizde güneş ışınlarından tamamen bağımsız ve eksiksiz bir organik madde sentezinin canlılar eliyle gerçekleşebildiğini bilim dünyasına ilan etmiştir.[4]
Kemosentez Nasıl Gerçekleşir?
Kemoototrof bir hücrenin inorganik dünyadan besin üretebilmesi, birbirine sıkıca kenetlenmiş iki ayrı biyokimyasal aşamanın uyumlu çalışmasına dayanmaktadır. İlk aşamada hücre, çevresinden aldığı inorganik bir bileşiği oksidasyona uğratarak kimyasal enerji ve elektron elde etmektedir. Kazanılan bu kimyasal enerji ve elektronlar ikinci aşamada harcanmakta, böylece karbondioksit indirgenerek organik madde sentezlenmektedir. Bu iki aşama arasında kesintisiz bir enerji akışı bulunmak zorundadır. Hücre dış ortamdan aldığı inorganik yakıt tükendiğinde enerji üreten ilk basamak durmakta, buna bağlı olarak karbondioksidin şekere dönüştürüldüğü ikinci basamak da sona ermektedir.
Yaygın bir yanılgının aksine doğadaki kemosentez reaksiyonu tek bir evrensel kimyasal denkleme sıkıştırılamamaktadır. Bütün kemosentetik canlılar aynı başlangıç maddesini tüketmemektedir. Yan ürünler de türden türe değişmektedir. Örneğin derin denizdeki hidrotermal bacalarda yaşayan bazı bakteriler hidrojen sülfürü (H₂S) okside edip karbondioksit ve oksijenle birleştirerek şeker, elementel kükürt ve su üretmektedir. Başka habitatlardaki türler ise amonyumu, nitriti, iki değerlikli demiri, hidrojen gazını ya da karbonmonoksidi yakıt olarak seçip farklı metabolik yollar işletmektedir.
İnorganik Madde Oksidasyonu ve Enerji Eldesi
Hücresel enerji üretimi, mikroorganizmanın dış ortamdan uygun bir inorganik elektron verici (İng: "electron donor") molekülü yakalamasıyla başlamaktadır. Hidrojen gazı (H₂), çeşitli kükürt bileşikleri, amonyum (NH₄⁺) ile nitrit (NO₂⁻) gibi azot bileşikleri ve iki değerlikli demir (Fe²⁺) doğadaki kemoototroflar arasında en yaygın elektron vericilerdir. Hücre bu inorganik maddenin yükseltgenme (İng: "oxidation") tepkimesini katalizlediğinde elektron koparmaktadır. Koparılan elektronlar doğrudan hücre zarında dizili özel protein ve kofaktör taşıyıcılarına aktarılmaktadır. Zara yerleşmiş olan bu taşıyıcılar dizisi elektron taşıma sistemi (ETS) (İng: "electron transport chain") olarak adlandırılmaktadır. Serbest enerji burada korunmaktadır. İnorganik vericiden alınan elektronlar ETS elemanları boyunca kademe kademe ilerlerken taşıyıcı kompleksler açığa çıkan bu enerjiyi boşa harcamayarak hücre içindeki protonları (H⁺) zarın dış yüzüne pompalamaktadır.
Zar boyunca biriken protonlar hücrenin iç ve dış yüzeyi arasında hem elektriksel hem de kimyasal bir yoğunluk farkı yaratmaktadır. Biyoenerjetikte bu potansiyele proton itici kuvvet denmektedir. Hücre kurulan bu elektrokimyasal kuvveti tıpkı oksijenli ve oksijensiz solunum yapan canlılarda olduğu gibi oksidatif fosforilasyon (İng: "oxidative phosphorylation") mekanizmasıyla değerlendirmektedir. Dışarıda biriken protonlar zar üzerindeki ATP sentaz (İng: "ATP synthase") enziminin iç kanalından geri akarken dönel katalitik birim hücresel enerji para birimi olan ATP moleküllerini sentezlemektedir.[2] Elektronların ETS içindeki yolculuğu en sonda bekleyen bir son elektron alıcısı (İng: "electron acceptor") moleküle ulaşmasıyla tamamlanmaktadır. Yüzeye yakın topraklarda ya da oksijenli sularda yaşayan pek çok kemoototrof tür bu son basamakta moleküler oksijeni (O₂) tüketmektedir.
Bu süreç ise oksijenle sınırlı kalmamaktadır. Oksijenin hiç bulunmadığı derin tortullarda ve yer altı katmanlarında yaşayan kemoototroflar da oksijensiz kemosentez gerçekleştirebilmektedir. Bu türler ETS sonunda oksijen yerine nitrat (NO₃⁻), nitrit (NO₂⁻) ya da nitrik oksit (NO) gibi alternatif son elektron alıcılarını kullanmaktadır.[2], [16] Oksijen dışındaki elektron alıcılarından yararlanabilme yeteneği, kemoototrof canlıların hem evrimsel çeşitliliğini hem de yeryüzünde yerleşebildikleri yaşam alanlarının kapsamını önemli ölçüde genişletmektedir. Her kemosentez tepkimesi hücreye aynı miktarda mı ATP kazandırmaktadır? Bu sorunun yanıtı hayırdır. Elde edilen ATP miktarı, seçilen inorganik elektron vericisi ile son elektron alıcısı arasındaki kimyasal potansiyel farkına doğrudan bağlı kalmaktadır.
Hidrojen gazı gibi elektronlarını kolayca veren zengin bir yakıtla oksijen gibi güçlü bir alıcı eşleştiğinde hücre yüksek miktarda enerji yakalamaktadır. Oysa nitrit ya da iki değerlikli demir gibi enerji verimi çok daha sınırlı vericiler kullanıldığında tek bir tepkimeden kazanılan enerji birimi belirgin biçimde düşmektedir. Doğada hem vericiler hem de alıcılar türden türe değiştiği için kemosentezde sabit bir evrensel verim bulunmamaktadır.
Organik madde inşası için hücrede tek başına ATP üretilmesi de yeterli olmamaktadır. Hücreye ayrıca indirgeme gücü gerekmektedir. Karbondioksidin şeker gibi besinlere dönüştürülebilmesi için NADH ya da NADPH biçiminde yüksek enerjili elektron taşıyıcılarına gereksinim duyulmaktadır. Bazı inorganik vericilerden koparılan elektronların enerji düzeyi NAD⁺ ya da NADP⁺ moleküllerini doğrudan indirgemeye yetmemektedir. Bu engeli aşması gereken bazı kemoototroflar ters elektron akışı işletmekte ve proton itici kuvvetin enerjisini harcayarak elektronları ETS boyunca ters yönde itip NADH ya da NADPH sentezlemektedir.[2]
Karbondioksit Özümlemesi ve Karbon Yolları
Hücre ilk aşamada yeterli miktarda ATP ve indirgeme gücü (NADH/NADPH) biriktirdiğinde kemosentezin ikinci ana evresi olan karbondioksit özümlemesi (İng: "carbon dioxide fixation") başlamaktadır. Karbondioksit (CO₂), karbon atomunun tamamen yükseltgenmiş biçimidir. Kimyasal enerjisi en alt düzeydedir. Hücrenin bu gazdan glikoz gibi büyük ölçüde indirgenmiş bir organik madde kurabilmesi için CO₂ moleküllerine elektron ve hidrojen ekleyerek indirgenme (İng: "reduction") tepkimeleri yürütmesi gerekmektedir. İlk aşamada büyük zahmetle üretilen ATP ve NADH/NADPH stokları tam bu noktada harcanmaktadır. Ters elektron akışı ile karbon özümlemesi hücreye yüksek bir enerji maliyeti yüklemektedir.
Karbondioksit özümlemesinin bütün kemoototrof canlılarda sadece Calvin döngüsü (İng: "Calvin cycle") üzerinden yürüdüğünü sanmak kemosentez anlatımlarında sıklıkla düşülen önemli bir kavram yanılgısı olmakla birlikte, amonyak okside eden bakteriler, hidrojen kullanan Cupriavidus necator ve kükürt ya da demir kullanan Thiobacillus denitrificans ile Acidithiobacillus ferrooxidans gibi türler yeşil bitkilerle aynı Calvin döngüsünü işletmektedir.[7], [9], [10], [11] Ne var ki karbondioksidin bu döngü üzerinden özümsenmesi yüksek miktarda enerji gerektirmektedir.[7] Başka kemoototrof gruplarında ise Calvin döngüsü dışında kalan farklı karbon özümleme mekanizmaları işlemektedir. Bu nedenle kemosentetik dünyada ekolojik nişlere göre farklılaşmış çoklu biyokimyasal döngüler görülmektedir.
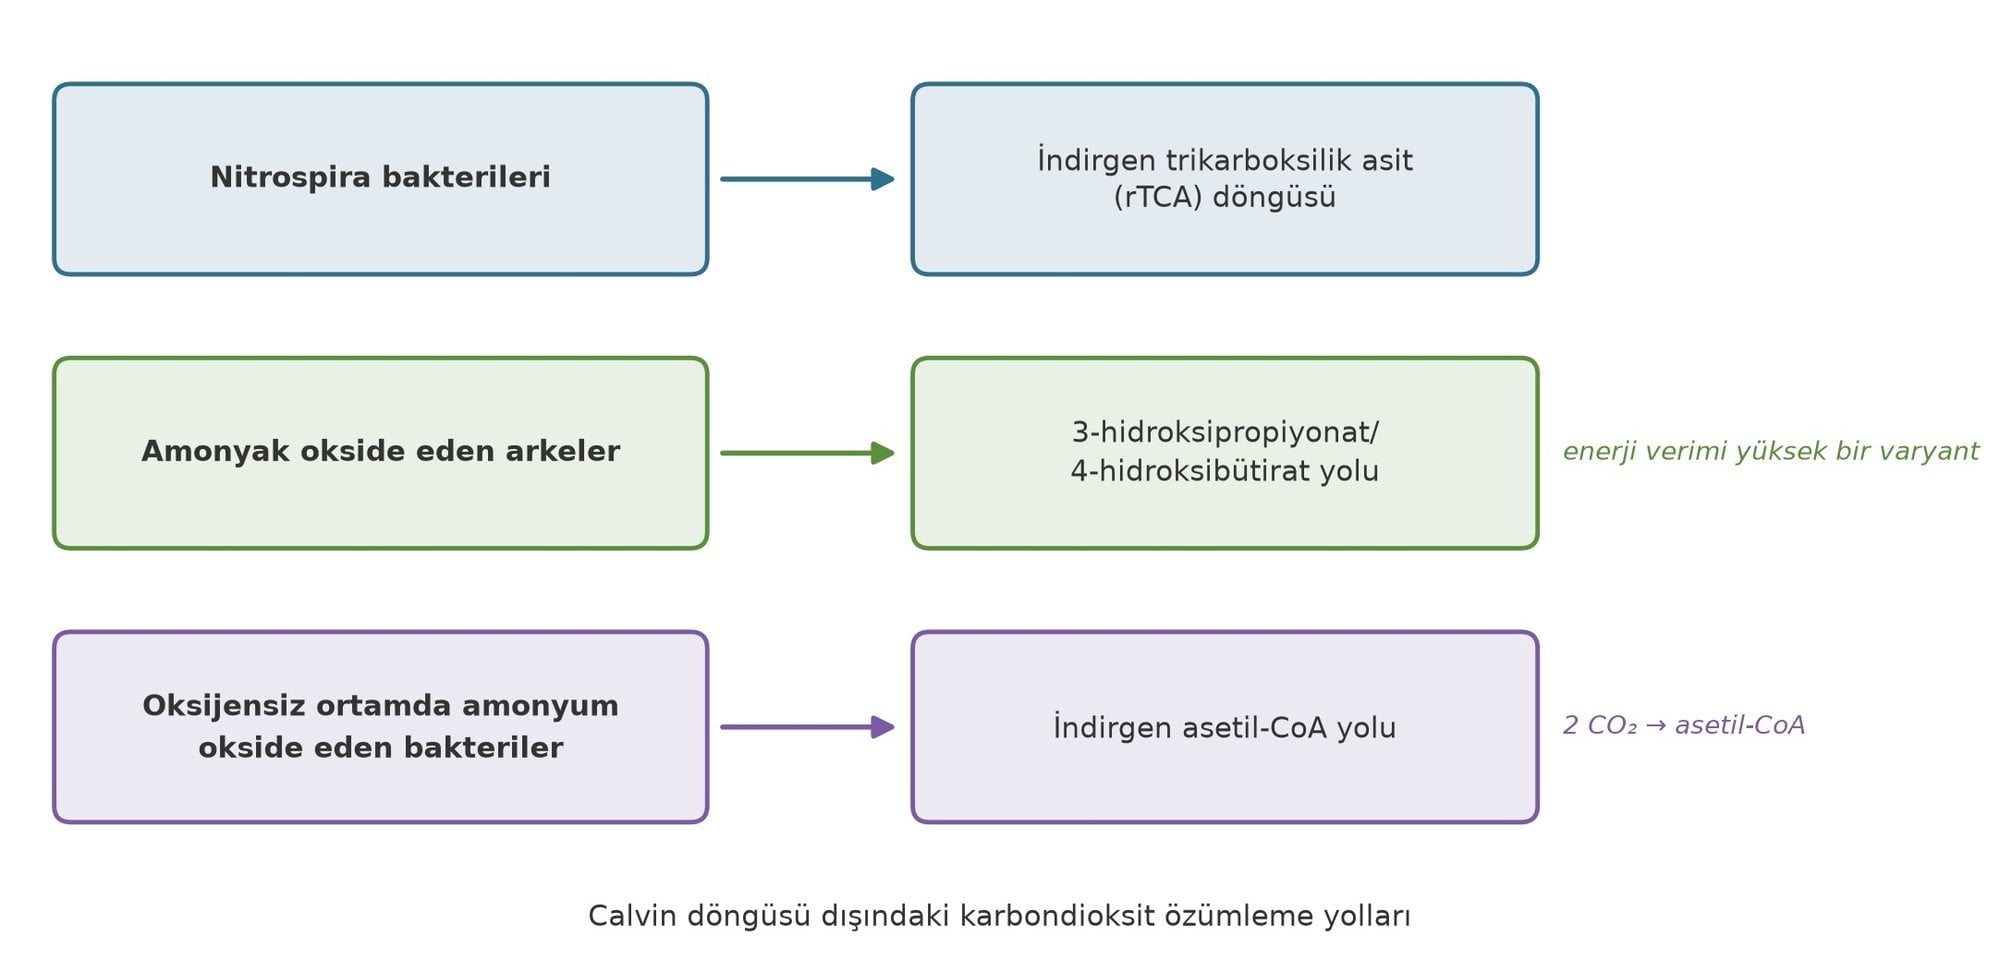
Bu alternatif yolların çeşitliliği azot döngüsü mikroorganizmalarında açıkça görülmektedir. Örneğin Nitrospira cinsine ait bakteriler karbondioksidi Calvin döngüsüyle özümsememektedir. Bunun yerine indirgen trikarboksilik asit (rTCA) döngüsü çalıştırılmaktadır. Amonyak okside eden arkeler ise 3-hidroksipropiyonat/4-hidroksibütirat yolunun kendilerine özgü ve enerji verimi son derece yüksek bir varyantını işletmektedir.[7] Oksijensiz ortamlarda yaşayan amonyum okside edici bakterilerde ise farklı bir karbon özümleme yolu devreye girmektedir. Bu mikroorganizmalar iki ayrı CO₂ molekülünü doğrudan doğruya birleştirerek asetil-CoA oluşturan doğrusal indirgen asetil-CoA yolunu kullanmaktadır.[12], [16] Oksijensiz koşullarda hücresel karbon kazanımı böylece bu doğrusal yol üzerinden gerçekleşmektedir.
Hücre hangi özümleme yolunu seçerse seçsin ulaşılan biyolojik hedef aynıdır. Bu yollardan elde edilen merkezi karbon ara ürünleri bütün yaşamsal makromoleküllere ham madde sağlamakta ve mikroorganizma kendi karbonhidratlarını, proteinlerini, nükleik asitlerini ve lipitlerini sentezlemektedir.[12] Kayalardan, sudan ve çözünmüş gazlardan alınan inorganik maddeler böylelikle bölünüp çoğalan bir hücrenin yapısına katılmaktadır.
Kemosentez Yapan Canlılar ve Metabolik Çeşitlilik
Bu yazıda incelenen kemosentetik canlıların tamamı prokaryot hücre yapısına sahip bakteri ya da arke gruplarında yer almaktadır. Kemosentetik bakteri ve arkelerin sahip olduğu elektron verici ve alıcı çeşitliliği iki farklı beslenme stratejisi yaratmaktadır. İlk gruptaki Thiobacillus denitrificans gibi zorunlu kemoototrof türler büyüyüp çoğalabilmek için mutlaka inorganik bir enerji kaynağına ve karbondiokside gereksinim duymaktadır.[10] Hazır şekerler işe yaramamaktadır. Ortama organik besinler eklense bile bu uzmanlaşmış hücreler heterotrof tüketime geçememektedir.
İkinci gruptaki fakültatif kemoototrof türler ise ortam koşullarına göre metabolik vites değiştirebilmektedir. Ortamda hazır organik bileşikler varken bunları tüketerek heterotrof düzende çoğalan hücreler, organik kaynaklar tükendiğinde karbondioksidi tek karbon kaynağı yapıp ototrof büyümeye yönelmektedir.[11] İnorganik maddelere dayalı bu enerji metabolizması oksijenli ortamların yanı sıra oksijensiz koşullarda da işleyebilmektedir.[2] Sınırlar pH açısından da geniştir. Nitrifikasyon süreci sadece nötre yakın sularla sınırlı kalmamakta, asidik topraklardan soda göllerine kadar uzanan geniş bir pH yelpazesinde işlemektedir.[8]
Aşırı asidik ya da aşırı bazik ortamlarda yaşamak hücre için ağır biyofiziksel tehditler barındırmaktadır. Böylesi uç pH koşullarında çalışan nitrifikasyon mikroorganizmaları hücre içi pH dengesini korumak, zar potansiyelini sürdürmek, reaktif azot bileşiklerini zararsızlaştırmak ve enerji ile karbon teminini aksatmamak üzere özel fizyolojik uyumlar geliştirmiştir.[8]
Azot Dönüştüren Bakteriler ve Arkeler
Karasal topraklardaki ve su ekosistemlerindeki azot döngüsünün merkezinde yer alan nitrifikasyon, amonyumun (NH₄⁺) oksijenli koşullarda nitrata (NO₃⁻) yükseltgenmesi sürecidir. Klasik mikrobiyolojide bu dönüşüm iki prokaryot grubu arasında paylaşılmaktadır. İlk basamakta amonyum iyonu oksijen yardımıyla nitrite (NO₂⁻) dönüştürülmektedir. Laboratuvar reaktörlerinde 5,0 ilâ 8,0 pH aralığında etkinliği ayrıntılı biçimde incelenen Nitrosomonas europaea türü bu ilk adımı yürüten amonyak okside edici bakterilerin tipik bir temsilcisidir.[8]
Ancak bu ilk basamak sadece bakterilerle sınırlı değildir. Bu ilk dönüşüm adımını amonyak okside edici arkeler de gerçekleştirmektedir.[8] Amonyak okside eden bir arke olan Nitrosopumilus maritimus türünün ilk saf kültürü 2005 yılında izole edilerek bilim dünyasına tanıtılmıştır.[5] Bakterilerin ve arkelerin yürüttüğü bu ilk basamağın stokiyometrik tepkimesi şu şekildedir:[6]
Denklemde açıkça görüldüğü üzere 1 mol amonyum iyonunun nitrite dönüştürülmesi için 1,5 mol moleküler oksijen (O₂) tüketilmektedir. Tepkime sonunda ortama 1 mol nitrit ve 1 mol suyun yanı sıra 2 mol hidrojen iyonu (H⁺) salındığından bu süreç topraklarda asitleşmeye neden olabilmektedir. Standart serbest enerji değişimi ise −274,7 kJ/mol düzeyindedir. İlk basamaktan ortama salınan nitrit, ikinci basamakta nitratlayıcı bakteri (İng: "nitrite-oxidizing bacterium") grupları tarafından yakalanarak nitrata yükseltgenmektedir. Nitrobacter üyeleri başlıca temsilcilerdir. Nötr suların yanı sıra asidik topraklara da uyum sağlayabilen bu bakterilerden asidik bir orman toprağından izole edilen Nitrobacter IOacid suşunda en yüksek nitrit oksidasyon etkinliği pH 5,5 değerinde ölçülmüştür.[8]
İkinci basamağı oluşturan nitritin nitrata yükseltgenmesi ve ilk basamaktan kalan azot dönüşümünün tamamlanması şu denklemle ilerlemektedir:
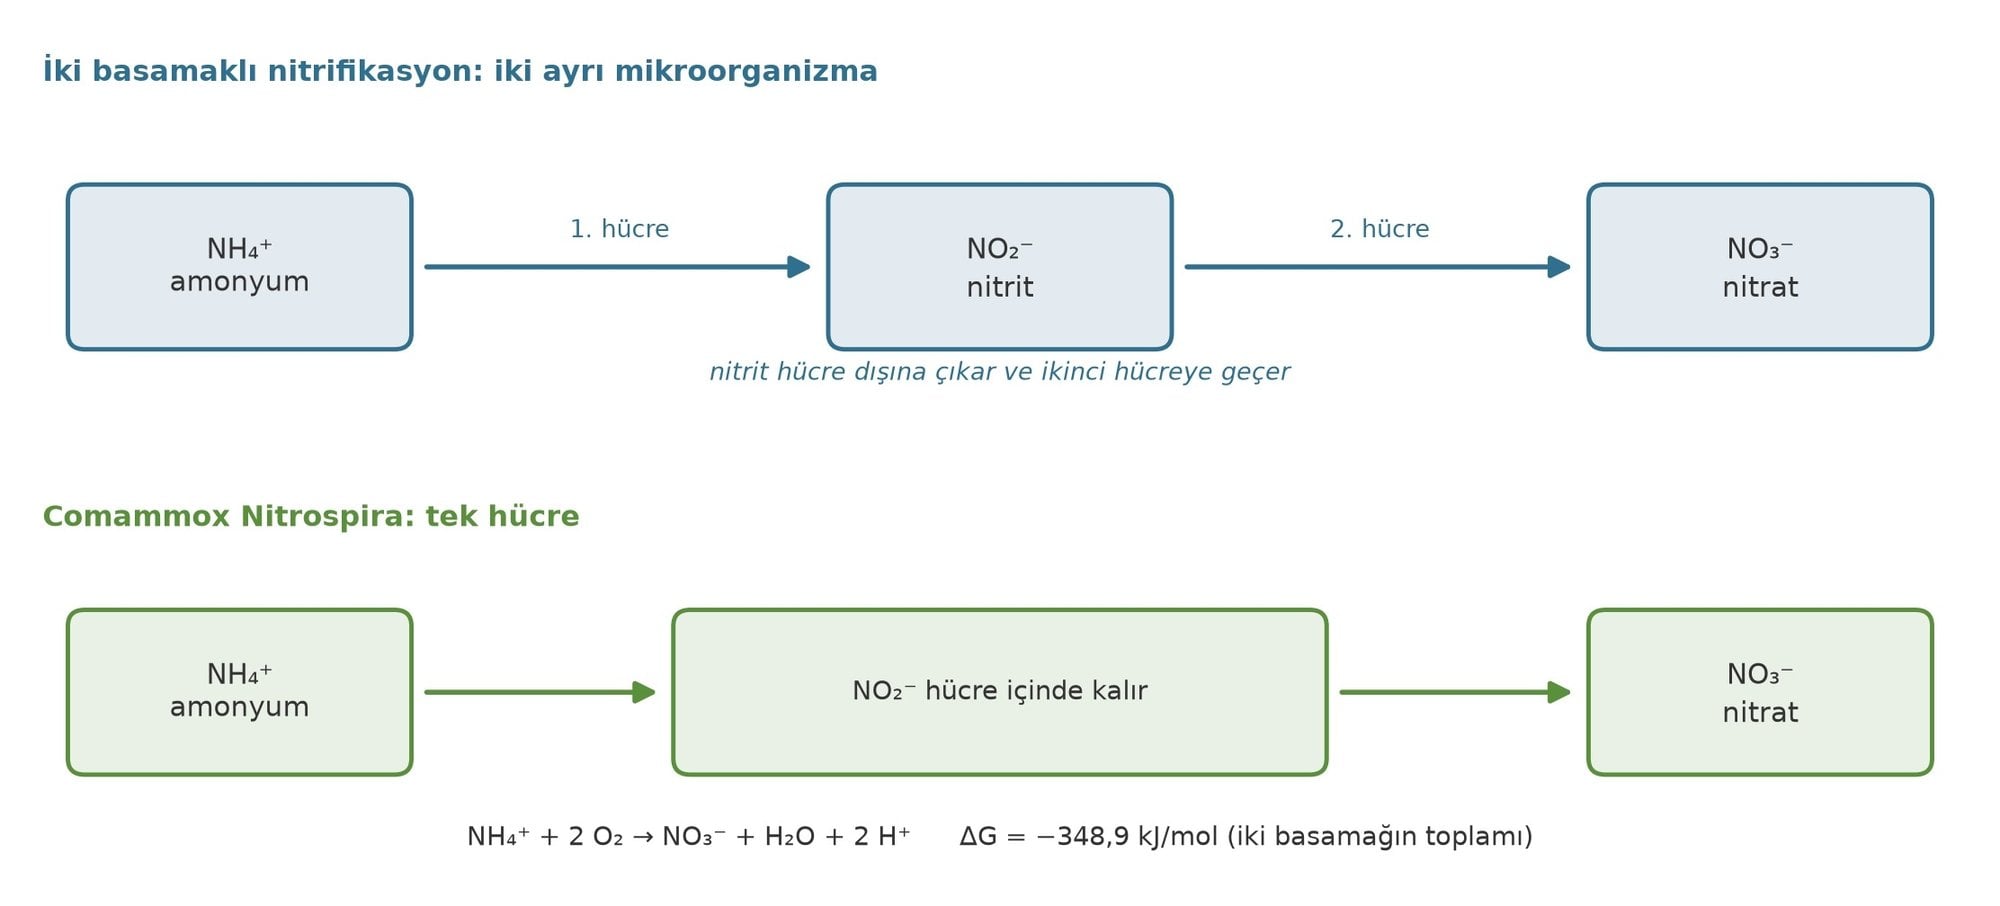
İkinci basamakta enerji verimi düşmektedir. Denklem incelendiğinde 1 mol nitrit başına sadece 0,5 mol O₂ harcandığı ve tek ürün olarak 1 mol nitrat oluştuğu görülmektedir. Bu tepkimenin standart serbest enerji değişimi −74,1 kJ/mol düzeyindedir. Bu enerji kazancı, ilk basamaktaki serbest enerji değişiminin dörtte birinden biraz fazlasına karşılık gelmektedir. Robert Warington'ın on dokuzuncu yüzyıldaki gözlemlerinden itibaren yaklaşık bir asır boyunca nitrifikasyonun her zaman iki ayrı canlı grubu arasındaki zorunlu iş bölümüyle yürüdüğü kabul edilmiştir. Tek hücrenin yetmeyeceği düşünülmüştür. Oysa amonyak okside eden arkelerin keşfinden sadece on yıl sonra, 2015 yılında iki ayrı araştırma grubu paralel yayımladıkları çalışmalarla tam amonyum oksidasyonu yapan tekil bakterilerin varlığını kanıtlamıştır.[5]
İngilizce "Complete Ammonium Oxidation" ifadesinin kısaltmasıyla comammox diye adlandırılan bu Nitrospira türleri nitrifikasyonda zorunlu iş bölümü bulunduğu yönündeki yüzyıllık görüşü kökünden değiştirirken, içme suyu ve atık su arıtma tesislerinin yanı sıra orman topraklarında, çeltik tarlalarında, çeltik bitkisinin kök çevresinde ve göl çökeltilerinde bu bakterilerin yaygın biçimde yaşadığı saptanmıştır. Söz konusu bakterilerin amonyumdan sağladıkları enerjiyle doğrudan karbondioksit özümsediği laboratuvarda gösterilmiştir. Toplam tepkime şu şekildedir:[6]
Bu toplam tepkimede tek bir hücre 1 mol amonyumu doğrudan nitrata dönüştürürken tam 2 mol O₂ harcamaktadır. Ara ürün nitrit dışarıya kaçmamaktadır. Comammox Nitrospira hücresi iki basamağın toplamına karşılık gelen −348,9 kJ/mol tutarındaki serbest enerji değişiminin tamamından tek başına yararlanmaktadır.
Amonyumun kemosentetik oksidasyonu oksijensiz ortamlarda da kesintiye uğramamaktadır. Oksijensiz amonyum oksidasyonu yürüten anammox bakterileri çözünmüş oksijenin bulunmadığı su katmanlarında ve tortullarda genellikle nitriti son elektron alıcısı yapıp nitrat ve moleküler azot gazı (N₂) üretmektedir. Hücredeki hidrazin sentaz enzimi nitrik oksit (NO) ile amonyumu (NH₄⁺) birleştirmektedir. Oldukça reaktif bir ara ürün olan hidrazin (N₂H₄) böylece oluşmaktadır. Hidrazinin yükseltgenmesinden çıkan dört elektronun biri nitriti indirgerken kalan üç elektron yeni hidrazin sentezini sürdürmek üzere döngüye dönmektedir.[16] Bu oksijensiz metabolizma nitritin tükendiği koşullarda bile şaşırtıcı bir esneklik sergilemektedir. Anammox grubunun önemli temsilcilerinden Kuenenia stuttgartiensis, ortamda hiç nitrit bulunmadığında doğrudan doğruya nitrik oksidi (NO) son elektron alıcısı yapıp amonyum oksidasyonuna bağlayarak enerji koruyabilmekte ve indirgen asetil-CoA yoluyla büyüyebilmektedir:[16]
Söz konusu oksijensiz denklemde her 4 mol amonyum iyonuna karşılık 6 mol NO harcanmakta ve tepkime sonunda 5 mol N₂ gazı, 6 mol su ve 4 mol hidrojen iyonu açığa çıkmaktadır. Bağlı azot böylece nitrat yan ürünü bırakmadan doğrudan atmosferik azot gazına çevrilmektedir. Azot döngüsündeki bu kemosentetik tepkimeler, terim benzerliği nedeniyle sıklıkla iki farklı mikrobiyal süreçle karıştırılmaktadır. Bunların ilki olan azot bağlanması, atmosferdeki oldukça durağan azot gazının (N₂) amonyağa (NH₃) dönüştürülmesidir ve hücreye enerji sağlamak yerine dışarıdan enerji gerektiren bir indirgenme tepkimesidir. İkincisi ise denitrifikasyondur. Mikroorganizmaların oksijensiz solunumda oksijen yerine nitratı (NO₃⁻) son elektron alıcısı olarak kullandığı bu süreçte elektron vericisi hazır organik maddeler de olabildiğinden denitrifikasyon tek başına kemosentez anlamına gelmemektedir. Dolayısıyla her azot dönüşümü kemosentez değildir.
Kükürt ve Demir Kullanan Kemoototroflar
Volkanik sahalarda, sıcak su kaynaklarında, deniz çökeltilerinde ve hidrotermal bacalarda bolca bulunan indirgenmiş kükürt bileşikleri, kemosentetik bakterilerin en yaygın enerji kaynaklarından biridir. Kükürt okside edici bakteri grupları tek bir elektron vericiyle yetinmemektedir. Hidrojen sülfür (H₂S), elementel kükürt (S⁰), tiyosülfat (S₂O₃²⁻) ve sülfit (SO₃²⁻) gibi farklı yükseltgenme basamaklarındaki kükürt formları yakıt olarak değerlendirilmektedir. Kükürt bileşiklerinin kemosentetik oksidasyonu aşamalı biçimde ilerleyebilmektedir. Bu oksidasyon tepkimelerinin sonunda ürün olarak çoğunlukla sülfat (SO₄²⁻) iyonu ortaya çıkmaktadır.[2]
Evrim Ağacı ürünlerinden haberdar mısınız?
Bu fizyolojik grubun ayrıntılı biçimde incelenmiş türlerinden biri olan Thiobacillus denitrificans, hem karbon hem de enerji bakımından inorganik dünyaya tam bağımlı zorunlu bir kemoototroftur. Dizilenmiş genomu Calvin döngüsünün bütün enzim genlerini eksiksiz barındırmaktadır. Solunum zinciri ise oldukça esnektir. Ortamda oksijen varken inorganik kükürt bileşiklerini oksijenle okside eden T. denitrificans, oksijen tükendiğinde denitrifikasyon koşullarına geçerek nitratı son elektron alıcısı yapmakta ve kükürt oksidasyonunu sürdürmektedir.[10] Jeokimyasal döngülerde görev alan bir diğer önemli topluluk da demir okside eden bakteri (İng: "iron-oxidizing bacterium") gruplarıdır. Bu mikroorganizmalar suda çözünmüş haldeki iki değerlikli ferröz demiri (Fe²⁺) elektron verici olarak alıp üç değerlikli ferrik demire (Fe³⁺) yükseltgenme tepkimesiyle dönüştürerek enerji üretmektedir.
Fakat demirden enerji elde etmek güçtür. Demir kullanan bakteriler oksijenli sularda doğrudan cansız doğayla yarışmak zorundadır, çünkü oksijen bulunan ortamlarda Fe²⁺ iyonları biyolojik bir müdahale olmaksızın da kendiliğinden Fe³⁺ biçimine yükseltgenebilmektedir.[2] Bakteri bu cansız tepkimeden hızlı davranmak zorundadır. Çevredeki Fe²⁺ iyonları ancak daha önce yakalanıp elektron taşıma sistemine aktarıldığında hücre hayatta kalabilmektedir.
Çok düşük pH değerlerine sahip asidik sularda ise Fe²⁺ iyonları kendiliğinden yükseltgenmeden kalabildiğinden demir ve kükürt metabolizmasını tek hücrede birleştiren asitçil türler öne çıkmaktadır. Piritli cevher yataklarında, kömür damarlarında ve asitleşmiş drenaj sularında bolca bulunan Acidithiobacillus ferrooxidans bu uyumun en bilinen örneğidir. Demir ve kükürt minerallerinin oksidasyonundan büyüme enerjisi ve indirgeme gücü sağlayan bu bakteri karbondioksidi Calvin döngüsüyle özümsemektedir. En uygun büyüme koşulları 30 °C ve pH 2 düzeyindedir. Hücre pH 1 ya da daha düşük aşırı asidik değerlerde bile çoğalabilmektedir.[9]
Hidrojen ve Karbonmonoksit Kullanan Mikroorganizmalar
Gaz halindeki moleküler hidrojen (H₂), kemosentetik dünyada yüksek enerji verimi sağlayan güçlü bir inorganik elektron vericidir. Hidrojen gazı pek çok prokaryot tarafından enerji kaynağı olarak kullanılmaktadır. Bu gazın oksidasyonunu hidrojenaz enzimleri katalizlemektedir.[2] Hidrojen okside eden kemoototroflar tek tip bir solunum koşuluna hapsolmamıştır. Hem oksijenli hem oksijensiz türleri vardır. Doğada bu metabolizmayı farklı katmanlarda işleten temsilcilerin bulunması sayesinde sığ toprak gözeneklerinden derin yer altı çökeltilerine kadar hidrojen sızıntısının ulaştığı her ortamda besin üretimi gerçekleşebilmektedir.
Toprağa ve tatlı su ortamlarına uyum sağlamış bir bakteri olan Cupriavidus necator, hidrojen kullanan fakültatif kemoototrofların hücre içi işleyişini açık biçimde göstermektedir. Ortamda organik asitler ya da şekerler varken heterotrof düzende çoğalan bu bakteri, organik besin kalmadığında CO₂ gazını tek karbon ve H₂ gazını tek enerji kaynağı yapıp Calvin döngüsüyle ototrof büyümeye geçmektedir. Hidrojenaz enzimleri H₂ molekülünü parçalamaktadır. Tepkimede iki proton (H⁺) ve iki elektron ayrılmaktadır.
Cupriavidus necator hücresinde bu oksidasyon işi iki ayrı hidrojenaz enzimi arasında bölüşülmektedir. Sitoplazmadaki çözünür hidrojenaz enzimi NAD⁺ molekülünü doğrudan NADH biçimine indirgeyerek hücreye indirgeme gücü kazandırmaktadır. Zara bağlı hidrojenaz ise H₂ molekülünden ayırdığı elektronlarla zardaki ubikinon havuzunu indirgemektedir.[11]
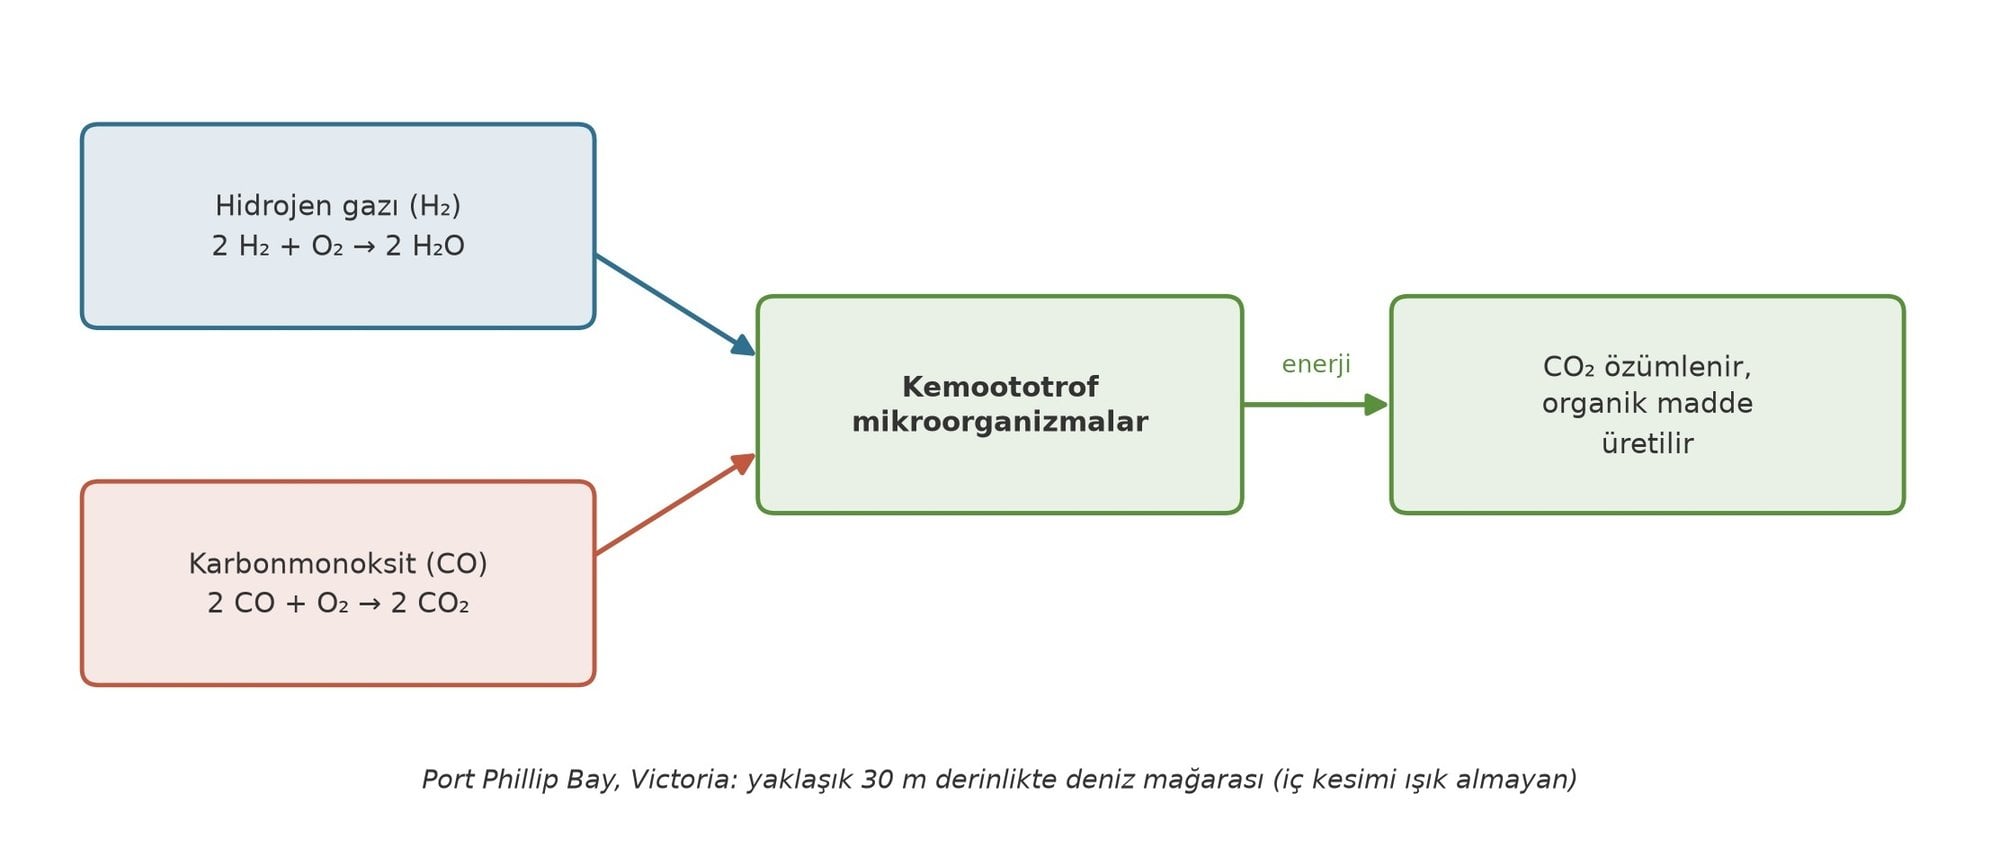
Kemosentetik toplulukların gaz yakıtları sadece moleküler hidrojenle sınırlı kalmamaktadır. Karbonmonoksit (CO) gazı da belirli kemoototrof mikroorganizmalar tarafından inorganik enerji kaynağı olarak kullanılmaktadır. İz gazlar mağara çökeltilerinde yaşayan mikroorganizmalara enerji sağlayabilmektedir. Örneğin aşağıda ayrıntılı olarak incelenen Port Phillip Bay'deki deniz mağarasında yaşayan mikrop topluluklarının, hidrojenin yanı sıra karbonmonoksidi de oksijenli koşullarda enerji elde etmek için tükettiği saptanmıştır. Söz konusu gazların oksidasyonu mağara çökeltilerindeki karbondioksit özümlemesini desteklemektedir.[17]
Kemosentez ile Fotosentez Arasındaki Farklar
Yeryüzündeki birincil besin üretim mekanizmaları karşılaştırıldığında fotoototrof (İng: "photoautotroph") ya da fotosentetik canlılar ile kemoototroflar arasındaki en temel ayrım başlangıçtaki enerji kaynağıdır. Fotosentetik dönüşümde güneşten ulaşan ışık enerjisi yakalanıp ATP biçiminde kimyasal bağ enerjisine çevrilmektedir. Fotoototrof canlılar ışıkla sentezledikleri bu ATP moleküllerini Calvin döngüsünde karbondioksit özümlemesi yapmak ve sıfırdan organik madde kurmak için harcamaktadır. Ancak tıpkı inorganik madde okside eden canlılarda gördüğümüz ayrıma benzer biçimde, güneş ışığından ATP üreten her mikroorganizma kendi besinini üreten bir fotoototrof değildir. Işıktan ATP üretmek tek başına yetmemektedir. Bazı bakteriler güneş ışığını ATP'ye dönüştürmelerine karşın karbondioksit özümseyememekte ve karbon kaynağı olarak çevrede önceden oluşmuş hazır organik maddeleri tüketmektedir. Dolayısıyla enerjisini ışıktan ya da inorganik tepkimelerden sağlayan bir canlının ototrof sayılabilmesi, karbondioksidi organik besine dönüştürmesine bağlıdır.
Işık enerjisinin hücresel kimyasal enerjiye çevrilebilmesi için fotosentetik hücrede mutlaka ışığa duyarlı özel pigmentlerin bulunması gerekmektedir. Bitkiler, algler ve siyanobakteriler fotonları yakalamak için klorofil pigmentlerini kullanırken mor ve yeşil fotosentetik bakteriler hücrelerinde bakteriyoklorofil taşımaktadır. Işıkla uyarılan yüksek enerjili elektronlar ferredoksin ve sitokromlar gibi taşıyıcılardan oluşan elektron taşıma sisteminde ilerleyerek zarda bir proton itici kuvvet oluşturmaktadır. Başlangıçtaki enerji kaynağı kimyasal bir madde yerine doğrudan güneş ışığı olduğu için buradaki ATP sentezine fotofosforilasyon (İng: "photophosphorylation") denmektedir.[3] Kemosentetik bakteriler ve arkeler ise klorofil ya da bakteriyoklorofil gibi ışığa duyarlı pigmentlere gereksinim duymamaktadır. Bu prokaryotlar zifiri karanlıkta oksidatif fosforilasyonla ATP üretebilmektedir.
İki üretim yolu karşılaştırılırken sıklıkla başvurulan bir diğer ölçüt, tepkime sonunda yan ürün olarak moleküler oksijen gazı (O₂) salınıp salınmadığıdır. Siyanobakterilerde, alglerde ve kara bitkilerinde işleyen oksijenli fotosentezde su molekülü elektron verici olarak kullanılıp parçalanmakta ve atmosfere oksijen bırakılmaktadır. Kemosentezde ise su yerine hidrojen, kükürt bileşikleri, amonyum ya da demir gibi inorganik maddeler elektron vericisi olarak kullanıldığından ortama oksijen salınmamaktadır.[2] Fakat oksijen çıkışı bütün fotosentez türlerini kemosentezden ayıran mutlak bir sınır değildir. Mor fotoototrof bakteriler oksijensiz fotosentez yürütmektedir. Bu canlılar ışık enerjisiyle besin üretirken süreç boyunca hiç oksijen açığa çıkarmamaktadır. Bu temel farkların ötesinde her iki mekanizma da elektron taşıma sistemleri, proton itici kuvvet, ATP sentaz enzimi ve karbondioksidin indirgenmesi gibi ortak hücresel araçları paylaşmaktadır.
Karanlık Ekosistemlerde Birincil Üretim ve Ortaklıklar
Güneş ışığının ulaşamadığı ve bu nedenle hiçbir bitkinin ya da algin barınamadığı ekosistemlerde besin ağının temelini kemosentezle gerçekleştirilen birincil üretim oluşturmaktadır. Kemosentetik bakteri ve arkelerin inorganik bileşiklerden sentezlediği organik biyokütle hayvanlar tarafından besin olarak değerlendirilmektedir. Tek bir fotonun bile girmediği derinliklerde karmaşık hayvan topluluklarını besleyen besin zincirleri ortaya çıkmaktadır. Bu tür ışıksız yaşam alanları yeryüzünde sadece tek bir coğrafi yapıyla sınırlı değildir. Karadaki jeotermal sıcak su kaynaklarında, derin okyanus tabanındaki hidrotermal bacaların çevresinde ve metan ile sülfürce zengin suların deniz tabanından sızdığı soğuk sızıntı bölgelerinde yoğun kemosentetik mikrobiyal topluluklar gelişmektedir.
Karanlık okyanus tabanında beklenmedik geçici vahalar da oluşabilmektedir. Okyanus dibine çökmüş dev balina kalıntılarında ve hatta çürüyen batık gemi enkazlarında bile kemosentetik birincil üretime dayanan özelleşmiş ekosistemler saptanmıştır.
Hidrotermal Bacalar ve Dev Tüp Solucanları
Derin okyanus tabanlarında güneş ışığı olmadan da son derece zengin bir ekosistemin kurulabileceği gerçeği ilk kez 1977 yılında doğrudan gözlemlenmiştir. Okyanus ortası sırtlarda yer kabuğunun çatlaklarından fışkıran sıcak ve mineral yüklü sıvılar, dondurucu dip sularıyla karşılaştığında baca benzeri yapılar inşa etmektedir. Kimyasal açıdan son derece etkin olan bu hidrotermal bacalar, zengin mikroorganizma topluluklarına ev sahipliği yapmaktadır.[13] Derin baca ekosistemlerinin en simgesel sakinlerinden biri olan dev tüp solucanı (İng: "tubeworm"), ihtiyaç duyduğu bütün besini kendi vücudunda yaşayan ortakçı bakterilerden sağlamaktadır. Solucanın gövdesinde trofozom (İng: "trophosome") adlı özelleşmiş bir organ yer almakta ve kemoototrof endosimbiyotik bakteri (İng: "bacterial symbiont") toplulukları buradaki hücrelerin içinde yaşamaktadır. Dışarıdan katı besin alınmamaktadır. Omurgasız hayvanın beslenme fabrikası doğrudan bu iç dokudur.
Konak solucanın son derece özelleşmiş kan dolaşım sistemi, deniz suyundaki oksijeni ve baca sıvısındaki sülfürü yakalayarak trofozom hücrelerindeki bakterilere düzenli biçimde taşımaktadır. Hücre içindeki kükürt okside edici endosimbiyotik bakteriler, sülfürü oksijenle yükseltgenme tepkimesine sokmanın sağladığı serbest enerjiyle karbondioksit özümseyip konak hayvan için organik karbonhidratlar üretmektedir.[14] Zehirli hidrojen sülfür gazı böylece büyüme enerjisine dönüşmektedir. Derin denizdeki bu çarpıcı ortaklık buna karşın yeryüzündeki güneşli dünyadan bütünüyle bağımsız değildir. Oksijen ihtiyacı bu bağı kurmaktadır. Dev tüp solucanının kendi hücresel metabolizması tıpkı diğer pek çok hayvan gibi karbonhidratların oksijenli solunumla parçalanmasına dayandığı için hem konak dokuları hem de trofozomdaki bakteriler çözünmüş moleküler oksijene muhtaçtır.
Derin okyanus sularında bulunan bu çözünmüş oksijen, yüzeydeki fotosentetik canlılar tarafından üretilmektedir.[14] Dolayısıyla güneş ışığını doğrudan kullanmayan dev tüp solucanı ortaklığı, tükettiği oksijen bakımından yüzeydeki fotosenteze bağımlı olabilmektedir. Oksijen dışındaki son elektron alıcılarını kullanan kemoototroflar ise fotosentez kaynaklı bu oksijen bağımlılığından bağımsız yaşayabilmektedir.[2] Baca çevresindeki hayvan kolonilerinin varlığı aynı zamanda yer altından gelen kimyasal yakıtın sürekliliğine bağlıdır. Jeotermal etkinlik sönümlenip bacalar sülfür sağlamayı kestiğinde dev tüp solucanı kolonileri besinsiz kalarak ölmektedir.[14] Erken yaşam araştırmaları bu kesintisiz jeokimyasal enerji akışına odaklanmaktadır. Günümüz ototroflarının biyokimyasının gezegenimizde yaşamın kimyasını başlatan ilk tepkimelere ipucu barındırabileceği bu alanda önemli bir hipotez olarak ele alınmaktadır.[13]
Deniz Mağaralarında Kemosentetik Üretimin Ölçümü
Kemosentetik birincil üretim sadece binlerce metre derindeki okyanus ortası bacalarda değil, kıyıya yakın deniz mağaralarının karanlık kısımlarında da saptanmıştır. Kıyısal kemosentez yerinde incelenebilmektedir. Avustralya'nın Victoria eyaletindeki Port Phillip Bay'de yaklaşık 30 metre derinlikte yer alan bir deniz mağarası incelenmiş ve mağara girişinden karanlık iç galerilere ilerlendikçe fotosentez kapasitesinin düştüğü belirlenmiştir. Genetik analizler bu düşüşü sayısal olarak ortaya koymaktadır. Mağaranın karanlık iç kesimindeki çökeltilerde fotosistem II'ye ait psbA genlerinin göreli bolluğu mağara girişine kıyasla tam 76 kat azalmıştır. Buna karşılık aynı iç çökeltilerde kemosentetik bakteri ve arkelerin metabolik genleri belirgin biçimde zenginleşmiştir.[17]
Araştırmacılar mağara çökeltilerindeki mikrobiyal toplulukların gerçek besin üretim hızlarını saptamak amacıyla radyoizotopla işaretlenmiş karbondioksit () katılımını ölçmüştür. Cansız mineral tepkimelerini dışlamak için deney düzeneğine ısıyla öldürülmüş kontrol örnekleri de katılmış ve hidrojen, karbonmonoksit ile amonyum tüketiminin doğrudan yaşayan hücrelerden kaynaklandığı doğrulanmıştır. Deney sonuçlarında hidrojen gazı (H₂) eklenen iç mağara örneklerinin mağara girişindeki örneklere göre ortalama 2,6 kat daha fazla özümsediği belirlenmiştir. Dışarıdan amonyum ya da sülfür eklenmesi ise katılımını artırmamış, bu durum söz konusu maddelerin elektron verici olarak çok az kullanılmasıyla ya da çökelti gözenek suyunda zaten yeterli derişimde bulunmasıyla açıklanmıştır.[17]
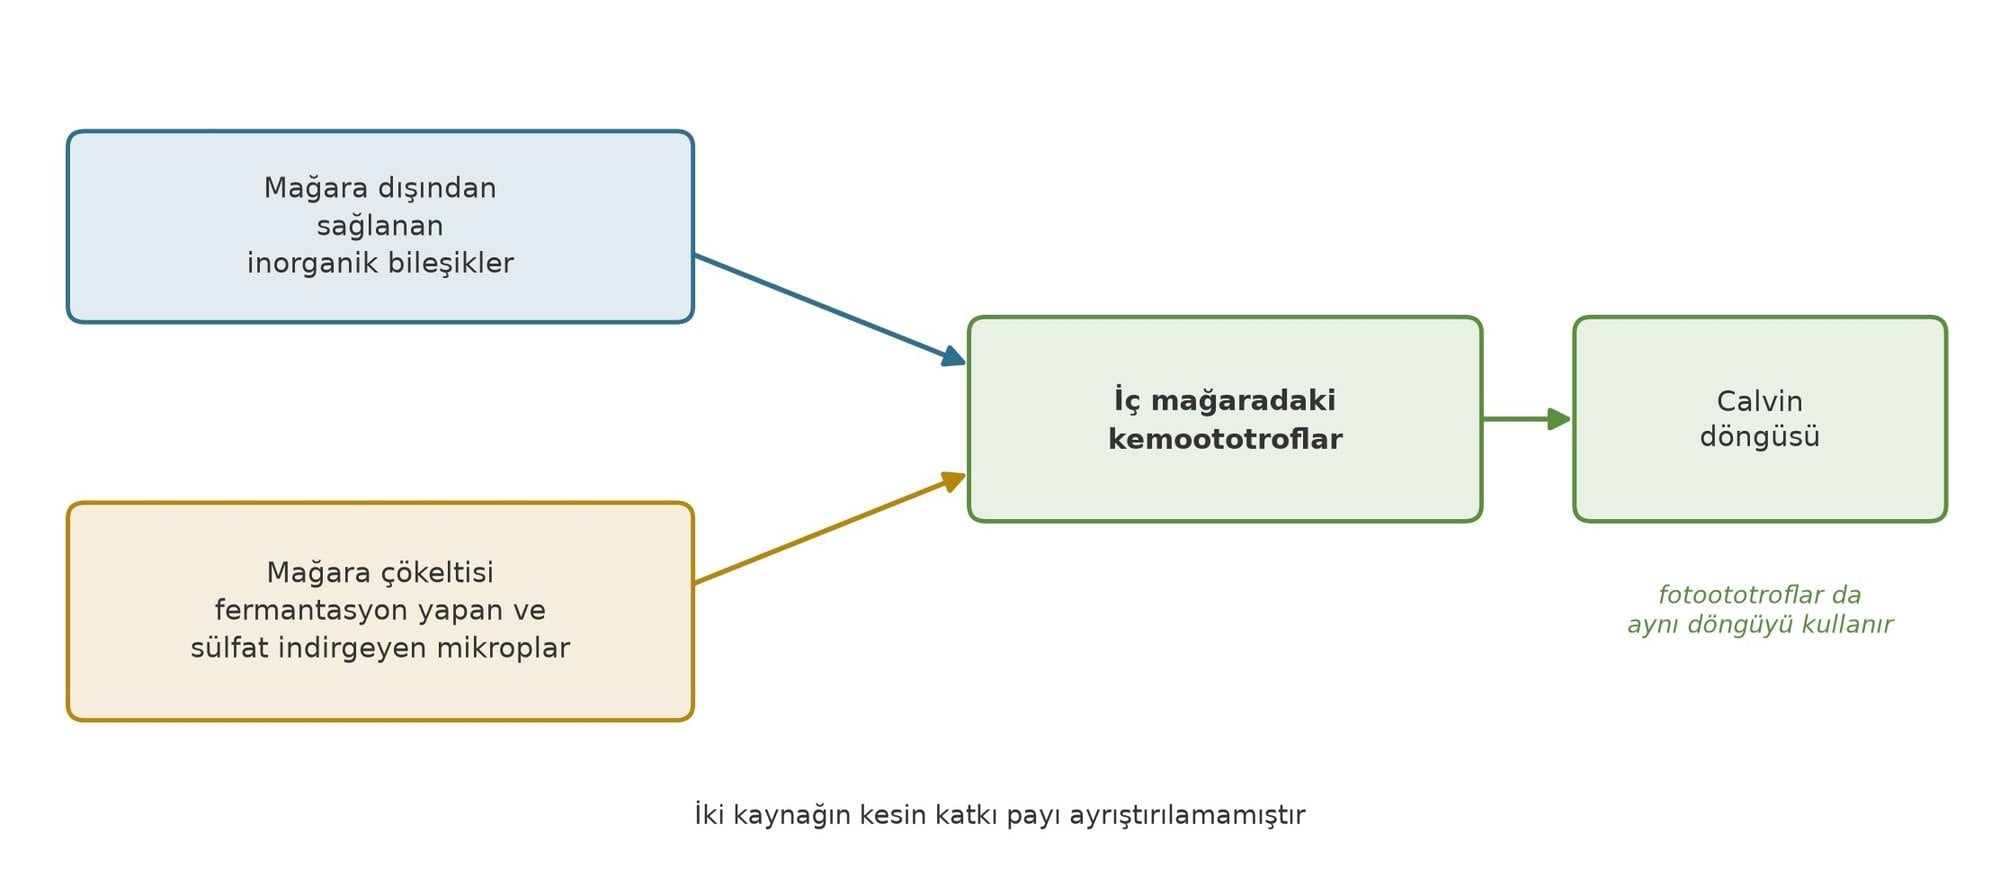
Mağaranın iç kesimindeki kemosentetik mikroorganizmalar tükettikleri bu inorganik yakıtları iki ayrı yoldan temin etmektedir. İnorganik bileşikler mağaraya dışarıdan ulaşabildiği gibi doğrudan mağara çökeltisinde yaşayan fermantasyon yapıcı ve sülfat indirgeyici diğer mikroplarca içeride de üretilebilmektedir. Bununla birlikte kesin katkı oranları bu çalışmada tam ayrıştırılamamıştır, çünkü mağaradaki hem fotoototrof hem de kemoototrof topluluklar en yaygın karbondioksit özümlemesi yolu olarak aynı Calvin döngüsünü kullanmakta ve toplam organik karbon arzındaki fotosentez ile kemosentez payları iç içe geçmektedir.[17]
Doğadaki Döngüler, Biyomadencilik ve Biyoteknoloji
Kemoototrof mikroorganizmaların yürüttüğü inorganik madde oksidasyonu sadece uzak mağaraları ve okyanus tabanlarını değil, modern kentlerin altyapısını ve endüstriyel üretimi de doğrudan şekillendirmektedir. Arıtma tesisleri bu bakterilerle çalışmaktadır. Biyolojik içme suyu ve atık su arıtma tesislerinde sudaki amonyum kirliliğinin giderilmesi nitrifikasyon bakterilerinin gerçekleştirdiği ilk azot dönüşüm basamağıyla başlamaktadır.[7] Fakat arıtma tesislerinde aranan bu aynı biyokimyasal süreç tarım arazilerinde ve orman topraklarında aşırı hızlandığında ciddi bir çevre sorununa dönüşebilmektedir. Toprak taneciklerine sıkıca tutunan amonyumun aksine, nitrifikasyonla oluşan eksi yüklü nitrit ve nitrat iyonları yağış ve sulama sularıyla toprak matrisinden kolayca yıkanmaktadır. Söz konusu iyonlar yer altı sularına karışabilmekte ve akarsu ile göl ekosistemlerine ulaşabilmektedir.[7]
Maden endüstrisinde ise demir ve kükürt kullanan kemoototrofların metabolizmasından cevherlerden metal kazanımında yararlanılmaktadır. Biyoliç ya da biyomadencilik adı verilen bu uygulamada Acidithiobacillus ferrooxidans içeren mikrop toplulukları özellikle bakırın cevherden çözündürülmesinde kilit bir görev üstlenmektedir. Bakır kimyasal olarak çözünürken ferrik demir (Fe³⁺) harcanmaktadır. Üç değerlikli bu iyon tepkimede iki değerlikli ferröz demire (Fe²⁺) indirgenmektedir. Tam bu aşamada Acidithiobacillus ferrooxidans devreye girerek Fe²⁺ iyonlarını yeniden Fe³⁺ biçimine yükseltgenme tepkimesiyle dönüştürmekte ve bakır çözündürme çevriminin kesintisiz sürmesini sağlamaktadır. Bakterinin indirgenmiş kükürt bileşiklerini biyolojik olarak okside etmesiyle ürettiği sülfürik asit (H₂SO₄) de bakır iyonlarının çözeltiye geçmesini hızlandırmaktadır. Bununla birlikte çevresel riskler ortaya çıkmaktadır. Biyoliç işlemleri çevreye yayılmasını önlemek amacıyla yönetilmesi gereken asit maden drenajı doğurmakta, biriken ferrik demir ile sülfürik asit kayalardaki arsenik gibi zehirli metalleri harekete geçirebilmektedir.[9]
Kemosentez yapan bazı bakteriler biyoteknolojik üretim süreçlerinde de değerlendirilmektedir.[11] Hidrojen okside eden Cupriavidus necator bakterisi, karbon kaynağı olarak CO₂ ve enerji kaynağı olarak H₂ ile beslendiğinde özümsediği karbonu hücre içinde doğal olarak poli-3-hidroksibütirat biçiminde depolamaktadır. Bu biyopolimerden biyobozunur plastik üretilebilmektedir. Ancak hidrojen gazının (H₂) sudaki çözünürlüğünün oldukça düşük olması endüstriyel biyoreaktörlerde gazın sıvıdaki hücrelere geçişini kısıtlamakta ve önemli bir kütle aktarımı sınırı yaratmaktadır.[11]
Sonuç
Kemosentez, güneş ışığının bulunmadığı ortamlarda yaşayan bakteri ve arkelerin inorganik maddelerin oksidasyonundan sağladıkları kimyasal enerjiyi kullanarak karbondioksit özümlemesi yapması ve organik madde üretmesidir.[1] Bu biyokimyasal mekanizma birincil besin üretiminin sınırlarını genişletmektedir. Yeryüzündeki üretimin sadece güneş ışığına ve klorofil taşıyan canlılara bağımlı olmadığı böylece kanıtlanmaktadır.[1]
Bununla birlikte kemosentetik yaşam hakkındaki bilgilerimiz hala hızla değişmektedir. Comammox Nitrospira türlerinin yüzyıllık zorunlu iş bölümü kabulünü yakın dönemde yıkması, en temel azot döngüsü basamaklarında bile yeni metabolik oyuncuların bulunabildiğini göstermiştir.[7] Karanlık deniz mağaralarında fotosentez ile kemosentezin ortak Calvin döngüsü kullanımı yüzünden toplam organik karbon bütçesindeki kesin paylarının ayrıştırılamaması, biyosferin ışıksız üretime ne ölçüde dayandığı konusunda açık sorular bırakmaktadır.[17] Mağara ekosistemlerindeki karbon bütçesi paylarının netleştirilmesi ile hidrojen kullanan biyoreaktörlerdeki gaz çözünürlüğü kısıtının aşılması bu alanda yanıt bekleyen başlıklardır.[17], [11]
- Muhteşem!1
- Tebrikler!1
- Bilim Budur!0
- Mmm... Çok sapyoseksüel!0
- Güldürdü0
- İnanılmaz0
- Umut Verici!0
- Merak Uyandırıcı!0
- Üzücü!0
- Grrr... *@$#0
- İğrenç!0
- Korkutucu!0
Bilimsel bir hata mı gördün?
Evrim Ağacı'na her ay sadece 1 kahve ısmarlayarak destek olmak ister misin?
Şu iki siteden biriyle hemen destek olabilirsin:
kreosus.com/evrimagaci | patreon.com/evrimagaci
Çıktı Bilgisi: Bu sayfa, Evrim Ağacı yazdırma aracıyla 20.11.2026 16:45:55 tarihinde oluşturuldu. Evrim Ağacı'ndaki içerikleri birden fazla editör sürekli gözden geçiriyor, güncelliyor ve geliştiriyor. Bu çıktıdan sonraki güncellemeleri görmek ve içeriğin en güncel hâlini okumak için şu adrese git: evrimagaci.org/s/24177
İçerik Kullanım İzinleri: Evrim Ağacı'ndaki yazılı içerikler orijinallerine hiçbir şekilde dokunulmadığı sürece izin alınmaksızın paylaşılabilir, kopyalanabilir, yapıştırılabilir, çoğaltılabilir, basılabilir, dağıtılabilir, yayılabilir, alıntılanabilir. Ancak bu içeriklerin hiçbiri izin alınmaksızın değiştirilemez ve değiştirilmiş hâlleri Evrim Ağacı'na aitmiş gibi sunulamaz. Benzer şekilde, içeriklerin hiçbiri, söz konusu içeriğin açıkça belirtilmiş yazarlarından ve Evrim Ağacı'ndan başkasına aitmiş gibi sunulamaz.