İskelet Kası Nedir? Kemik, Eklem ve Kaslar Hareketi Birlikte Nasıl Sağlar?
Bir Kitabı Tutmak Dirseğe Neden Yüzlerce Newton Yük Bindirir?


Bu Makalede Neler Öğreneceksin?
Bu bölümü yapay zekâ hazırlar.- İskelet, eklemler ve kaslar birlikte çalışarak hareketi sağlar; kemikler destek ve kaldıraç görevi görürken kaslar kuvvet üretir.
- Kasılmada aktin ve miyozin filamentleri kısalmadan birbirinin üzerinden kayar; sinir sinyalleri ve ATP bu süreci düzenler.
- Refleksler, kas gruplarının sinir sistemiyle eş güdümünü gösterir; kemiklerin korunması ve eklem hareketi ise çevre koşulları ile anatomik yapıya bağlıdır.
İskelet kası (İng: "skeletal muscle"), bilinçli olarak kontrol edilebilen, mikroskop altında çizgili görünen ve ürettiği çekme kuvvetini bağ dokusu bantları üzerinden kemiklere aktararak eklemler etrafında hareket oluşturan kas dokusu türüdür.[4], [8] Vücutta harekete dayalı bir tepkinin doğması tek bir dokunun eseri değildir. Aslında üç ayrı yapı iş birliği yapmaktadır. Kemikler kuvvetin iletildiği sert kaldıraçları, eklemler bu kaldıraçların döndüğü destek noktalarını, iskelet kasları ise sinir sisteminden gelen emirlerle kasılarak mekanik işi başlatan aktif motor gücü oluşturmaktadır.
Masadaki bir kitabı elde tutmak veya sıcak bir yüzeye değince kolu geri çekmek zahmetsiz birer eylem gibi görünmektedir. Oysa 4,00 kg kütleli bir kitap tutulurken bile kolun ön yüzündeki biseps kası 470 N büyüklüğünde bir kuvvet üretmektedir. Bu kuvvet, ön kol ile kitabın toplam ağırlığının 7,38 katıdır. Üstelik bu biyomekanik düzenek sabit bir makine değildir. Bebekler yaklaşık 300 kemikle doğmakta, yetişkinlerde ise 206 kemik bulunmaktadır. Gömülü kemiğin korunması da ortama göre değişmektedir.
Kemik dokusunun hücresel yenilenmesinden sinovyal eklemlerin hareket sınırlarına, kayan filamentlerden omurilik reflekslerine ve kaldıraç tork hesaplamalarına kadar her basamak birbiriyle kenetlenmiş durumdadır. Hiçbiri tek başına anlam taşımamaktadır. Bu nedenle yazı önce hareketin çatısını kuran iskelet ve eklem yapılarını ele almakta, ardından kas kasılmasının sinirsel eş güdümünü ve tork denklemlerini incelemektedir. Son bölümde ise tek bir kas lifinden bütün kasın kuvvetini çıkarma veya eklem yıkımını sadece mekanik aşınmaya bağlama gibi yanılgılar değerlendirilmektedir.
İskelet Sisteminin Yapısal Mimarisi
Bir organizmanın yerçekimine karşı dik durabilmesi, yumuşak dokularını dış darbelerden koruyabilmesi ve bulunduğu ortamda yer değiştirebilmesi için mekanik bir destek sistemine ihtiyacı vardır. İskelet sistemi (İng: "skeletal system") biyolojik bir çerçevedir. Bu çerçeve üç temel ihtiyacı, yani vücudun desteklenmesini, iç organların korunmasını ve organizmanın hareket etmesini karşılamaktadır. İnsan vücudunda bu çerçeve, yumuşak dokuların derinliklerine yerleşmiş sert ve mineralleşmiş yapılardan meydana gelen bir iç iskelet (İng: "endoskeleton") biçiminde örgütlenmiştir. Standart anatomik anlatımda yetişkin bir insanın iç iskeleti 206 ayrı kemikten oluşmaktadır.[1]
İskeletin üstlendiği görevler sadece mekanik taşıyıcılıkla sınırlı değildir. Ayrıca kemikler vücudun mineral ve lipit (yağ) depoları olarak işlev görmekte, kemik iliği aracılığıyla kan hücresi üretimini de gerçekleştirmektedir. Bu çok yönlü sistem, konumlandığı bölgelere ve üstlendiği mekanik rollere göre iki ana bölüme ayrılmaktadır. Eksen iskeleti (İng: "axial skeleton") vücudun merkezi hattını kurmaktadır. Kafatası kemiklerini, orta kulakta yer alan kemikçikleri, boğaz bölgesindeki hiyoid kemiği, omurgayı ve göğüs kafesini kapsamaktadır.
Merkezi eksenin dışına uzanan hareketli yapılar ise üyeler iskeleti (İng: "appendicular skeleton") çatısı altında toplanmaktadır. Bu ikinci bölümde kol, ön kol ve el kemiklerinden oluşan üst üyeler ile uyluk, bacak ve ayak kemiklerinden oluşan alt üyeler yer almaktadır. Ayrıca üst üyeleri gövdeye bağlayan omuz kemeri (pektoral kemer) ile alt üyeleri eksene tutturan kalça kemeri (pelvik kemer) de üyeler iskeletinin birer parçasıdır.
Eksen iskeletinin merkezinde uzanan omurga, sert kemik halkalarının üst üste dizilmesiyle kurulmuş olmasına rağmen kaskatı bir sütun değildir. Aslında omurga esnek bir zincire benzemektedir. Omurların arasında yer alan diskler, her bir omur çiftinin oluşturduğu eklemin bir parçası olarak omurganın belirli ölçüde eğilip bükülmesine izin vermektedir. Üstelik söz konusu diskler birer yastık gibi davranarak yürüme ve koşma gibi gündelik hareketler sırasında oluşan mekanik darbeleri sönümlemektedir.[1]
Kemik Dokusunun Hücresel Matriksi
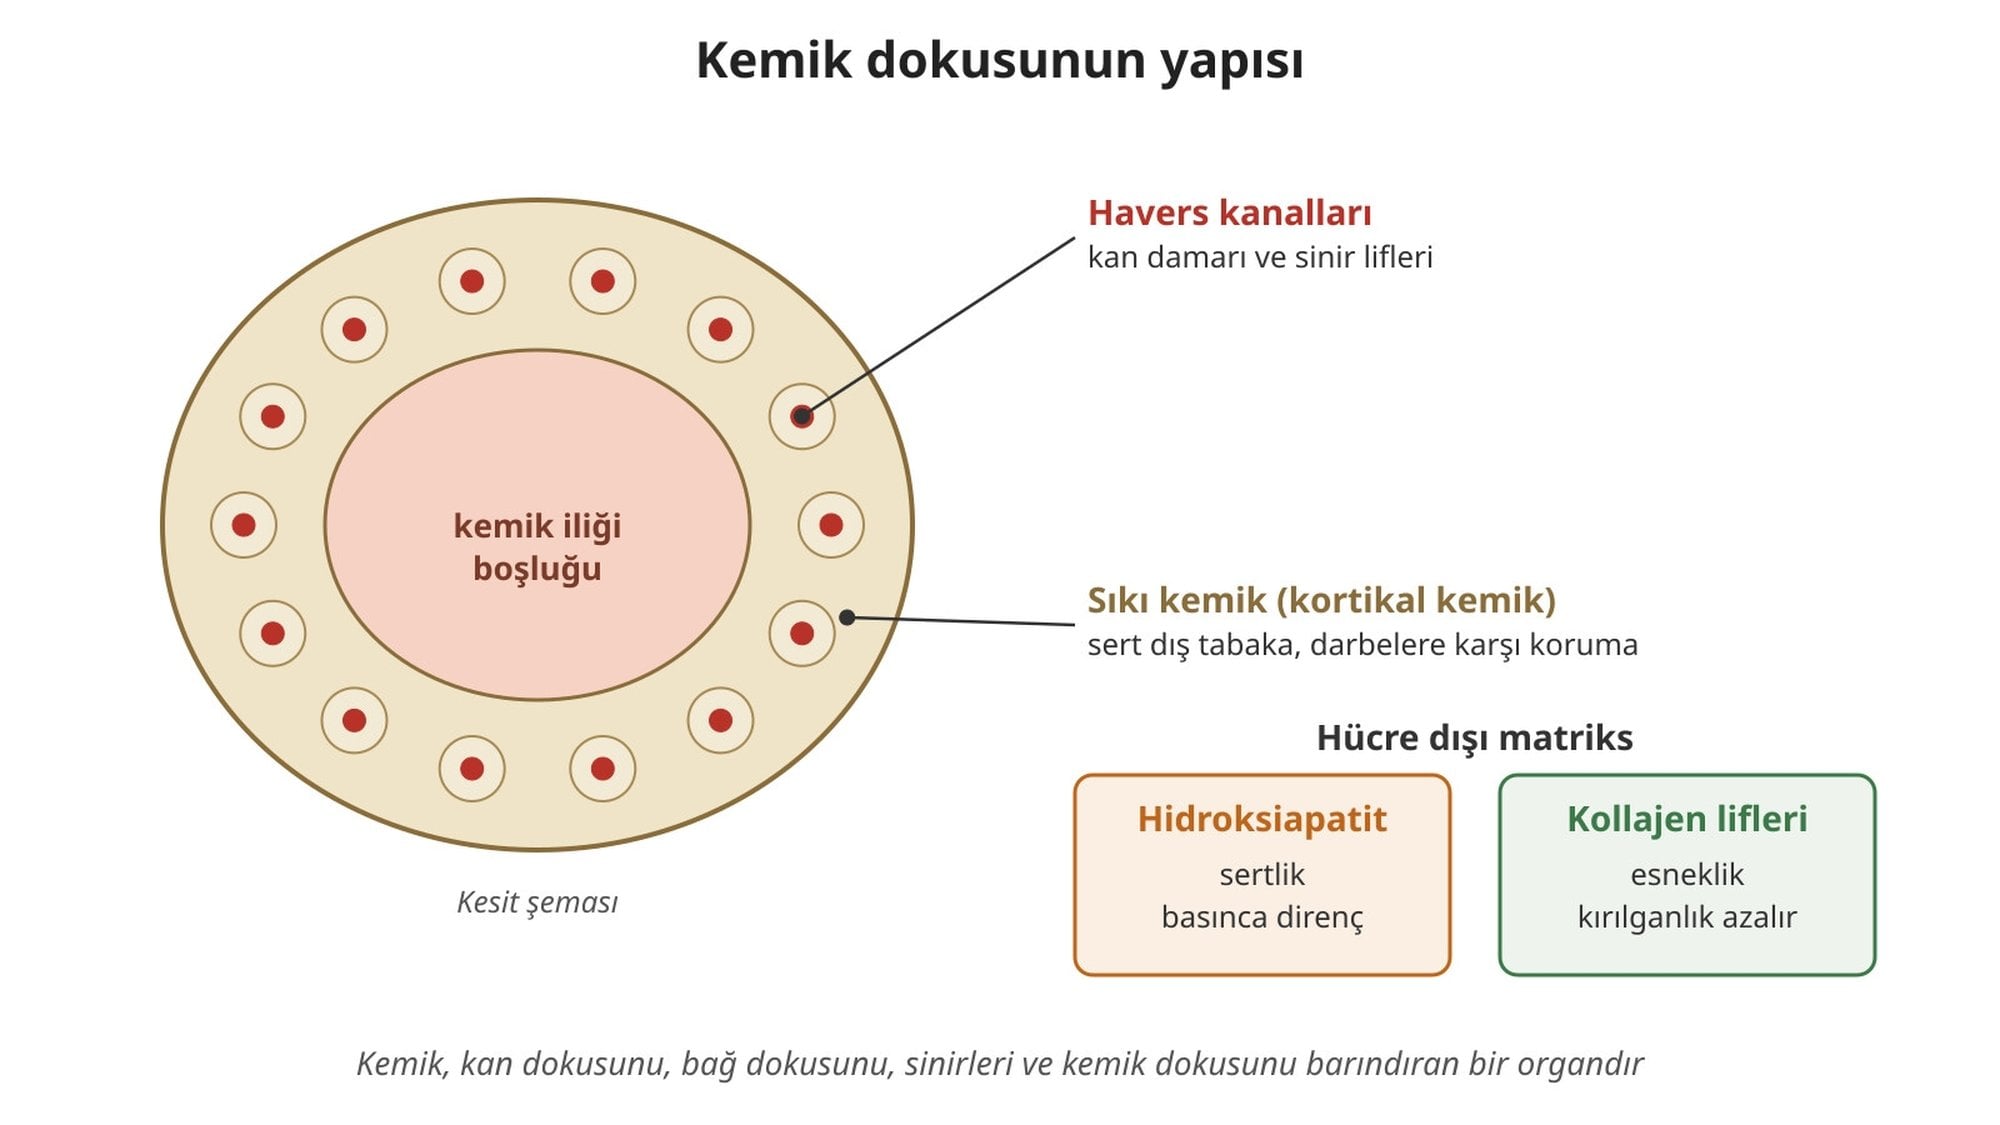
Gündelik dilde kemik sözcüğü çoğu zaman kuru ve cansız bir mineral parçasını çağrıştırmaktadır. Oysa gerçek tablo çok farklıdır, çünkü iç iskeleti oluşturan her bir kemik sadece kemik dokusundan meydana gelmemektedir. Kemikler biyolojik açıdan birer organ sayılmaktadır. Bunun nedeni, kemiklerin kendi içlerinde kan dokusunu, bağ dokusunu, sinirleri ve kemik dokusunu bir arada barındıran karmaşık yapılar olmasıdır.[2]
Bu organların ana çatısını kuran kemik dokusu (İng: "bone tissue" veya "osseous tissue"), özelleşmiş hücreler ile mineral tuzları ve kollajen lifleri içeren hücre dışı bir matriksten oluşan özel bir bağ dokusudur. Matriksin içindeki mineral tuzlarının başında, kalsiyum fosfattan oluşan bir mineral olan hidroksiapatit (İng: "hydroxyapatite") gelmektedir. Bu iki bileşen birbirini tamamlamaktadır. Hidroksiapatit kristalleri dokuya sertlik ve basınca karşı direnç kazandırırken, kollajen lifleri kemiğe esneklik katarak kırılganlığı azaltmaktadır.
Kemik organının dış yüzeyi ile iç kısımları, maruz kaldıkları kuvvetleri en verimli biçimde karşılamak üzere iki farklı mimari düzen sergilemektedir. Bütün kemiklerin sert dış tabakasını oluşturan ve kemik iliği boşluğunu (medüller boşluk) çepeçevre saran dokuya sıkı kemik (kortikal kemik, İng: "compact bone") adı verilmektedir. Sıkı kemik, kemiklere dış darbelere karşı koruma ve yüksek dayanıklılık sağlamaktadır. Bu yoğun dış katmanın içinden geçen Havers kanalları (osteonik kanallar, İng: "Haversian canals"), kan damarları ile sinir liflerini barındırmaktadır.
Kemiğin iç kesimlerinde ise çok daha gözenekli bir yapı olan süngerimsi kemik (İng: "spongy bone") yer almaktadır. Süngerimsi kemik, trabekül (İng: "trabecula") adı verilen ince kemik plakları ve çubukçuklarının kafes benzeri bir ağ kurmasıyla şekillenmiştir. Kan hücresi üretiminden sorumlu olan kırmızı kemik iliği, bu trabeküllerin arasındaki boşluklarda bulunmaktadır. Üstelik trabeküllerin uzaydaki dizilimi rastgele değildir. Kemiğin bir yakası çekme kaynaklı gerilme (İng: "tension") kuvvetlerini, karşı yakası ise üstten binen sıkışma (İng: "compression") kuvvetlerini taşıyacak biçimde hizalanmıştır.
Bu kadar sert ve mineralleşmiş bir doku yaşam boyunca değişen yüklenmelere nasıl uyum sağlamaktadır? Yanıt, kemik dokusunun içinde aralıksız çalışan yapım ve yıkım hücrelerinin iş bölümüdür. Kemik hücrelerinden olan osteoblastlar (İng: "osteoblasts"), yeni kemik matriksini sentezleyerek kemik yapımından sorumludur. Buna karşılık osteoklastlar (İng: "osteoclasts"), lizozomal enzimler ve asitler salgılayarak kemik matriksini çözmekte ve mevcut kemik yapısını uzaklaştırmaktadır. Böylece kemik dokusunda yapım ile yıkım bir arada sürmektedir.
Bebekler Kaç Kemikle Doğar?
Yetişkin bir insanın iskeleti 206 kemikten oluşurken bir bebeğin vücudunda doğum sırasında yaklaşık 300 kemik bulunmaktadır.[11] Bu sayı kesin ve herkes için değişmez bir ölçüm değildir. Bebekteki kemik sayısı, yetişkindeki 206 kemikten yaklaşık 94 fazladır. Büyüme çağında kemik sayısının azalmasının nedeni herhangi bir kemiğin ortadan kaybolması değildir. Kemikler kaybolmamakta, birleşmektedir. Ayrı duran bu kemik parçalarının bir bölümü birbiriyle kaynaşarak (birlikte büyüyerek) yetişkinlerin sahip olduğu 206 kemikli nihai iskeleti oluşturmaktadır.
Bu kaynaşma sürecinin kökenini anlamak için anne karnındaki embriyonik gelişimin ilk basamaklarına bakmak gerekmektedir. Embriyonik gelişimin erken evrelerinde embriyonun iskeleti sert kemik dokusundan değil, lifli zarlardan (fibröz membranlar) ve hiyalin kıkırdaktan (İng: "hyaline cartilage") oluşmaktadır.[5] Ancak gelişim ilerledikçe bu erken taslak, iki ayrı kemikleşme (osteogenez) yolu izleyerek gerçek kemik dokusuna yerini bırakmaktadır. Bu yollardan birincisi lifli bağ dokusu zarlarının içinde gerçekleşen zar içi kemikleşme (intramembranöz kemikleşme, İng: "intramembranous ossification"), ikincisi ise hiyalin kıkırdak taslaklar üzerinden yürüyen endokondral kemikleşme (İng: "endochondral ossification") sürecidir.
Tam bu noktada yaygın bir anlatım hatası düzeltilmelidir. Endokondral kemikleşme sırasında kıkırdak dokusu doğrudan doğruya kemiğe dönüşmemektedir. Bunun yerine hiyalin kıkırdak, osteoblast ve osteoklast hücrelerinin etkinlikleriyle bütünüyle yıkılıp yerine yeni kemik dokusunun inşa edileceği geçici bir kalıp (şablon) görevi görmektedir. Başka bir deyişle kıkırdak zamanla sertleşip kemik haline gelmemektedir. Kıkırdak kalıp ortadan kaldırılırken boşalan hacme sıfırdan yeni kemik matriksi döşenmektedir.
Kıkırdak damarsız (avasküler, İng: "avascular") bir dokudur. Hücrelerine besin taşıyan ve metabolik atıkları uzaklaştıran hiçbir kan damarı içermemektedir. Kıkırdak dokuda besin ve atık alışverişinin tamamı matriks boyunca difüzyon yoluyla gerçekleşmektedir. Çocukluk boyunca kıkırdağın bir bölümü daha kemikle yer değiştirmekte, buna karşılık eklem yüzeyleri, burun ve kaburga uçları gibi bazı kısımlar yetişkin iskeletinde kıkırdak olarak kalmaktadır.
İnsan Kemikleri Kaç Yılda Çürür?
Canlı bir organizmada dinamik olarak yenilenen kemikler, ölüm sonrasında yumuşak dokular ayrıştıktan sonra bile geride kalabilen yapılardır. Bu dayanıklılık nedeniyle çoğu zaman tek bir sayıyla yanıt aranan soru şudur: "İnsan kemikleri kaç yılda çürür?" Oysa ölüm sonrasında (post-mortem dönemde) kemiğin korunması pek çok karmaşık sürece bağlıdır. Bazı kemikler iyi korunurken bazıları bozunmaktadır.[12] Dolayısıyla bilimsel açıdan insan kemiklerinin çürümesi için her ortamda geçerli, evrensel tek bir yıl sayısı vermek mümkün değildir.
Gömülme sonrasında kemik ve diş (dentin) dokularının arkeolojik veya jeolojik kayıt içinde fiziksel, kimyasal ve biyolojik olarak dönüşmesine diyajenez (İng: "diagenesis") adı verilmektedir. Ancak diyajenez tek bir yıkım mekanizması üzerinden ilerlememektedir. Araştırmacılar bu dönüşümü mikrobiyal bozunma, organik madde kaybı, mineral değişimleri ve DNA bozunması olmak üzere birbirinden ayrı süreçler halinde incelemektedir.
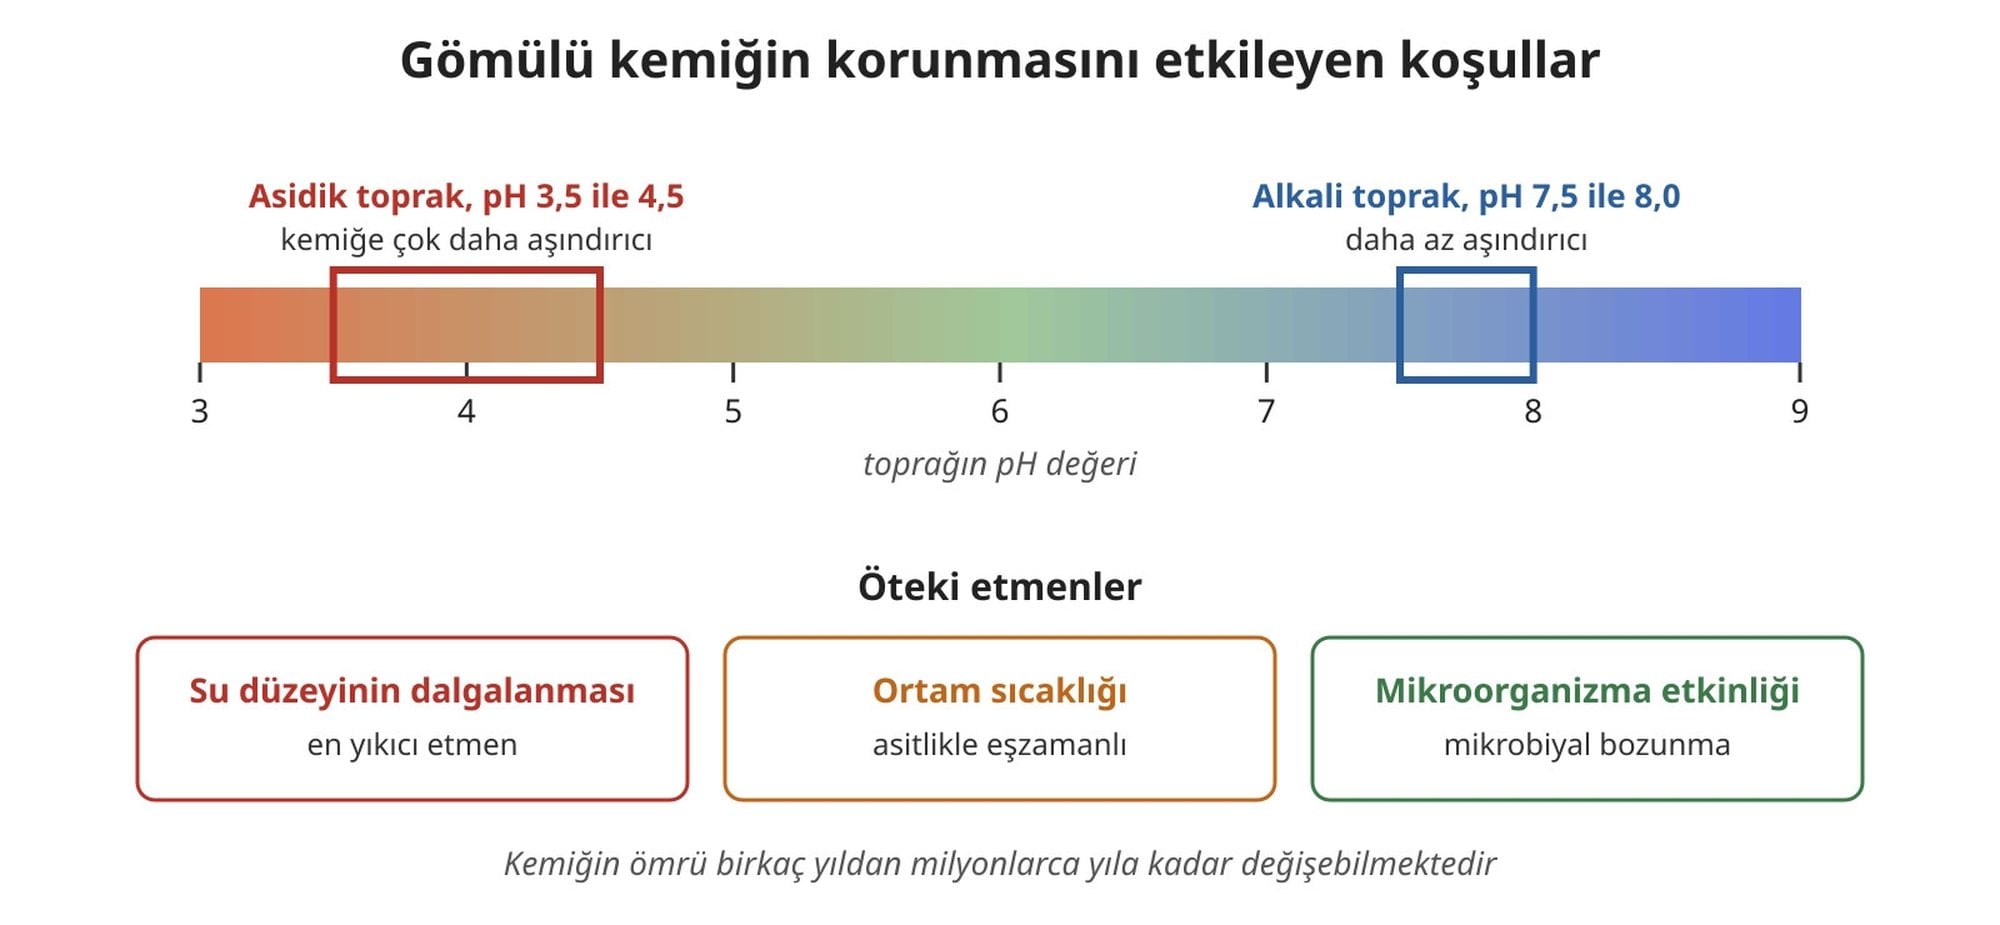
Bir kemiğin hızla dağılmasını ya da asırlarca korunmasını hangi dış koşullar belirlemektedir? İskelet dokularının korunmasını yöneten başlıca çevresel etmenler arasında toprağın pH değeri (asitlik-bazlık derecesi), toprağın su koşulları (hidrolojisi) ve ortam sıcaklığı yer almaktadır. Kemik çevresinde su düzeyinin dalgalanması korunma açısından en zararlı etmenler arasındadır ve hızlı iskelet yıkımına yol açabilmektedir.
Diyajenez derlemelerinde aktarılan deneysel bulgulara göre asidik topraklar (pH 3,5 ile 4,5 aralığı) alkali topraklara (pH 7,5 ile 8,0 aralığı) kıyasla kemik dokusu üzerinde daha aşındırıcı bulunmuştur. Ancak bu pH aralıkları bile tek başına bir çürüme takvimi sunmamaktadır.
Eklem Yapıları, Hareket Eksenleri
Sert ve dayanıklı kemikler vücudu ayakta tutmaktadır. Ancak tek parça halindeki sert bir iskeletle hareket etmek olanaksızdır. Bu nedenle iskeletin bükülebilmesi için kemiklerin belirli noktalarda birbiriyle buluşması gerekmektedir. İki veya daha fazla kemiğin birleştiği bu bağlantı noktalarına eklem (artikülasyon, İng: "joint" veya "articulation") adı verilmektedir.[3] Eklemler vücutta iki temel ve birbiriyle dengelenmesi gereken işlevi yerine getirmektedir. Bir yandan üyelerin geniş açılı hareketlerini mümkün kılmakta, diğer yandan kafatası kemiklerinde görüldüğü üzere yapısal kararlılık (stabilite) sağlamaktadır.
Anatomide eklemleri sınıflandırmak için iki farklı ölçüt kullanılmaktadır. Birinci ölçüt kemiklerin birbirine hangi dokuyla bağlandığına bakan yapısal sınıflandırma, ikinci ölçüt ise eklemin ne kadar harekete izin verdiğini ölçen işlevsel sınıflandırmadır. Yapısal sınıflandırmanın ilk grubunu oluşturan fibröz eklemlerde (İng: "fibrous joints") komşu kemikler birbirine yoğun lifli bağ dokusuyla sıkıca tutturulmuştur. Kafatasında bulunan sütürler (İng: "sutures"), fibröz eklemlere örnektir.
Yapısal sınıflandırmanın ikinci grubunda yer alan kıkırdak eklemlerde (İng: "cartilaginous joints") kemikler birbirine kıkırdak dokusu aracılığıyla bağlanmaktadır. Omurlar arası diskler bu bağlantı tipinin örneğidir. Öte yandan üçüncü yapısal grup, kemik uçlarının doğrudan birbirine kaynaşmadığı, arada özel bir boşluğun yer aldığı sinovyal eklemlerdir (İng: "synovial joints"). Üyeler iskeletindeki omuz, dirsek, kalça ve diz gibi bağlantılar bu üçüncü grupta toplanmaktadır.
İşlevsel sınıflandırma ise eklemleri hareket yeteneklerine göre üç basamağa ayırmaktadır. Hiçbir harekete izin vermeyen hareketsiz eklemlere sinartroz (İng: "synarthrosis"), omurlar arasındaki bağlantılarda olduğu gibi sadece kısıtlı ve az miktarda harekete olanak tanıyan eklemlere ise amfiartroz (İng: "amphiarthrosis") denmektedir. Buna karşılık sinovyal eklemlerde olduğu gibi serbest harekete izin veren eklemler diartroz (İng: "diarthrosis") olarak adlandırılmaktadır. Örneğin kafatasında kararlılık gerekirken, yürümek ve nesneleri tutmak için diartrozların serbest hareketliliğine ihtiyaç duyulmaktadır.
Sinovyal Eklemlerin Anatomik Elemanları
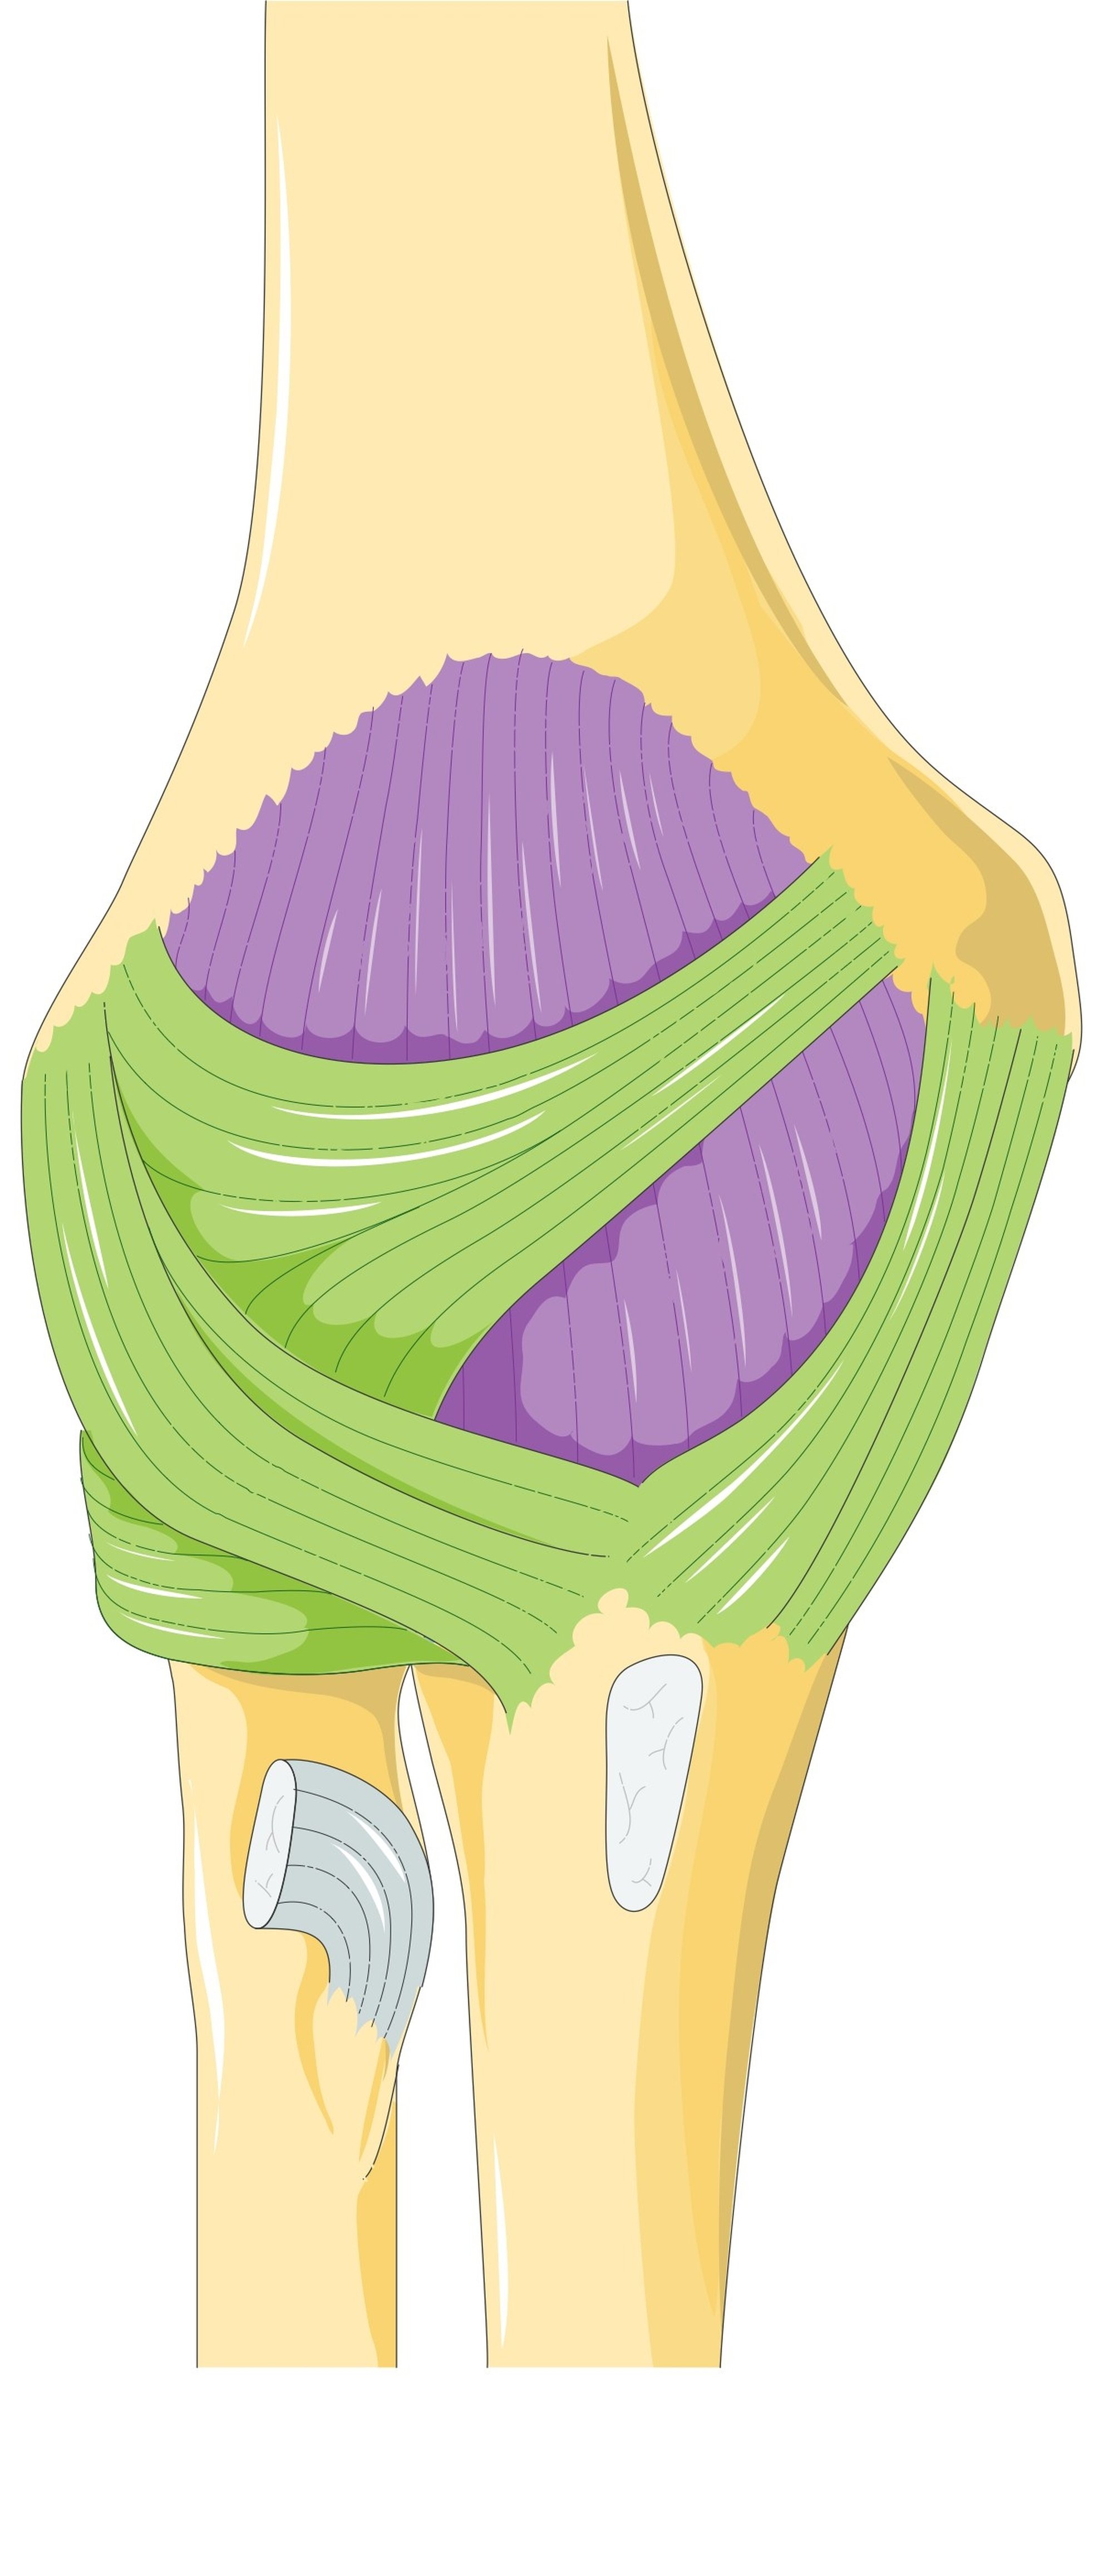
Serbest hareketli diartrozlar sınıfını oluşturan sinovyal eklemlerde eklem yüzeyleri kemik uçlarını örtmektedir. Sinovyal eklemlerin diğer eklem türlerinden ayırt edici temel özelliği, kemiklerin arasında bir eklem boşluğu (İng: "joint cavity") bulunmasıdır.[6] Ancak bu boşluk açıkta durmamaktadır. Boşluğun dış duvarlarını çepeçevre saran bağ dokusundan yapılmış bir eklem kapsülü (İng: "articular capsule"), eklemi kapalı bir odacık haline getirmektedir.
Bir sinovyal eklemde karşı karşıya gelen kemiklerin birbirine sürtünerek zarar görmesi, eklem kıkırdağı (İng: "articular cartilage") sayesinde engellenmektedir. Her bir kemiğin eklemleşen yüzeyini bütünüyle örten bu ince hiyalin kıkırdak tabakası, pürüzsüz bir kaplama gibi davranarak kemiklerin doğrudan temasını kesmektedir. Ayrıca eklem kapsülünün iç yüzeyini sinovyal zar döşemektedir. Bu zarın hücreleri, sinovyal sıvı (İng: "synovial fluid") adı verilen koyu kıvamlı ve kaygan bir sıvı salgılamaktadır.
Sinovyal sıvının eklem odacığı içinde iki görevi bulunmaktadır. İlk olarak kemik yüzeylerini kayganlaştırarak hareket sırasındaki sürtünmeyi daha da azaltmaktadır. İkinci olarak ise kan damarı içermeyen eklem kıkırdağının beslenmesini sağlamaktadır. Difüzyonla beslenme ilkesi burada devreye girmektedir. Eklem hareket ettikçe sıkışıp gevşeyen damarsız kıkırdak dokusu sinovyal sıvıdan oksijen ve besin maddelerini çekmektedir.
Ancak serbest hareket yeteneği, kemiklerin yerinden çıkma riskini de beraberinde getirmektedir. Bu riski önlemek üzere sinovyal eklemlerdeki kemikler, güçlü lifli bağ dokusu bantları olan ligamentler (bağlar, İng: "ligaments") aracılığıyla birbirine bağlanmaktadır. Ligamentler kemikleri bir arada tutarak ayrılmalarını önlemekte ve eklemi desteklemektedir. Üstelik bu bağlar eklemin normal hareketlerine izin verirken, hareketin menzilini sınırlayarak aşırı veya anormal eklem hareketlerinin önüne geçmektedir.
Bazı sinovyal eklemlerde mekanik yükü karşılamak ve sürtünmeyi en aza indirmek için ek yardımcı yapılar da bulunmaktadır. Örneğin diz ekleminin içinde yer alan menisküs (İng: "meniscus") adlı lifli kıkırdak disklerin her biri, uyluk ve kaval kemikleri arasında darbe sönümleme ve yastıklama işlevi görmektedir. Benzer şekilde eklem çevresinde yer alan bursa (İng: "bursa") adlı sıvı dolu kesecikler, kasları kemiğe bağlayan tendonlar ile kemikler gibi komşu yapıları birbirinden ayırarak doğrudan birbirlerine sürtünmelerini önlemektedir.
Eklem Tipleri, Hareket Açıklığı Sınırları
Bütün sinovyal eklemler serbest hareketlidir. Ancak kemik uçlarının birbirine oturan geometrik biçimleri her eklemin hangi yönlerde dönebileceğini kesin sınırlarla belirlemektedir. Örneğin dirsek eklemi bir menteşe eklem (İng: "hinge joint") yapısındadır ve kapı menteşesine benzer biçimde sadece tek bir eksen boyunca bükülme ve doğrulma hareketlerine izin vermektedir. Buna karşılık boyundaki ilk iki omur arasında yer alan pivot eklem (İng: "pivot joint"), dikey bir eksen etrafında dönme hareketine olanak tanıyarak başın sağa ve sola çevrilmesini sağlamaktadır.
El ve bilek bölgesinde ise çok daha kıvrak kavrama hareketlerine izin veren iki eksenli eklem tipleri bulunmaktadır. Başparmağın tabanında yer alan eklem eyer eklem (İng: "saddle joint") tipindeyken, el bileğindeki radyokarpal eklem kondiloid eklem (İng: "condyloid joint") yapısındadır. Öte yandan top-yuva eklemler (İng: "ball-and-socket joint"), işlevsel açıdan çok eksenli (İng: "multiaxial") eklemler olarak sınıflandırılmaktadır. İnsan vücudunda sadece omuz (glenohumeral eklem) ve kalça eklemleri top-yuva tipindedir.
Fakat top-yuva tipi olmak, bir eklemin hareketinin sınırsız olduğu anlamına gelmemektedir. Örneğin kalça kemiğindeki yuvanın (asetabulum, İng: "acetabulum") derinliği ve kalça eklemini saran güçlü destekleyici ligamentler, uyluk kemiğinin (femur) hareketlerini sınırlandırmaktadır. Bu sınırlama, kalçada kararlılık ve yük taşıma ihtiyacını yansıtmaktadır.
Sinovyal eklemlerde gerçekleşen her bir hareket, eklemin iki yanındaki kemiklere tutunan kasların kasılması veya gevşemesiyle ortaya çıkmaktadır.[7] Hareketlerin her birinin özel bir adı vardır. Üyelerde kemikler arasındaki açıyı azaltan (eklemi büken) harekete fleksiyon (İng: "flexion"), bu açıyı artırarak eklemi doğrultan harekete ise ekstansiyon (İng: "extension") denmektedir.
Bir üyeyi vücudun orta çizgisinden yana doğru uzaklaştıran hareket abdüksiyon (İng: "abduction") adını alırken, üyeyi yeniden vücuda veya orta çizgiye doğru getiren karşıt hareket addüksiyon (İng: "adduction") olarak tanımlanmaktadır. Hatta bu dört hareket tek bir akışta da birleşebilmektedir. Bir eklemde fleksiyon, abdüksiyon, ekstansiyon ve addüksiyon hareketlerinin sırayla birleştirilmesiyle kol veya bacağın havada koni çizmesine sirkümdüksiyon (İng: "circumduction") adı verilmektedir.
Bazı özelleşmiş hareketler ise günlük yaşamda nesneleri kavramayı ve dengeli yürümeyi sağlamaktadır. Ayak sırtının bacağın ön yüzüne doğru yukarı kaldırılması dorsifleksiyon (İng: "dorsiflexion"), topuğun yerden kaldırılması veya ayak parmaklarının aşağı doğru yöneltilmesi ise plantar fleksiyon (İng: "plantar flexion") olarak adlandırılmaktadır. Bunun yanı sıra elde başparmak ucunun bir diğer parmağın ucuna değdirilmesi hareketine opozisyon (İng: "opposition") denmektedir. Ayrıca kolun yandan tamamen yukarı kaldırılması sadece omuz eklemiyle gerçekleşmemektedir, çünkü üst üyenin tam abdüksiyon yapabilmesi için omuz küreğinin (skapula) yukarı rotasyonu zorunludur.
İskelet Kasının Yapısı, Kasılma Mekanizması
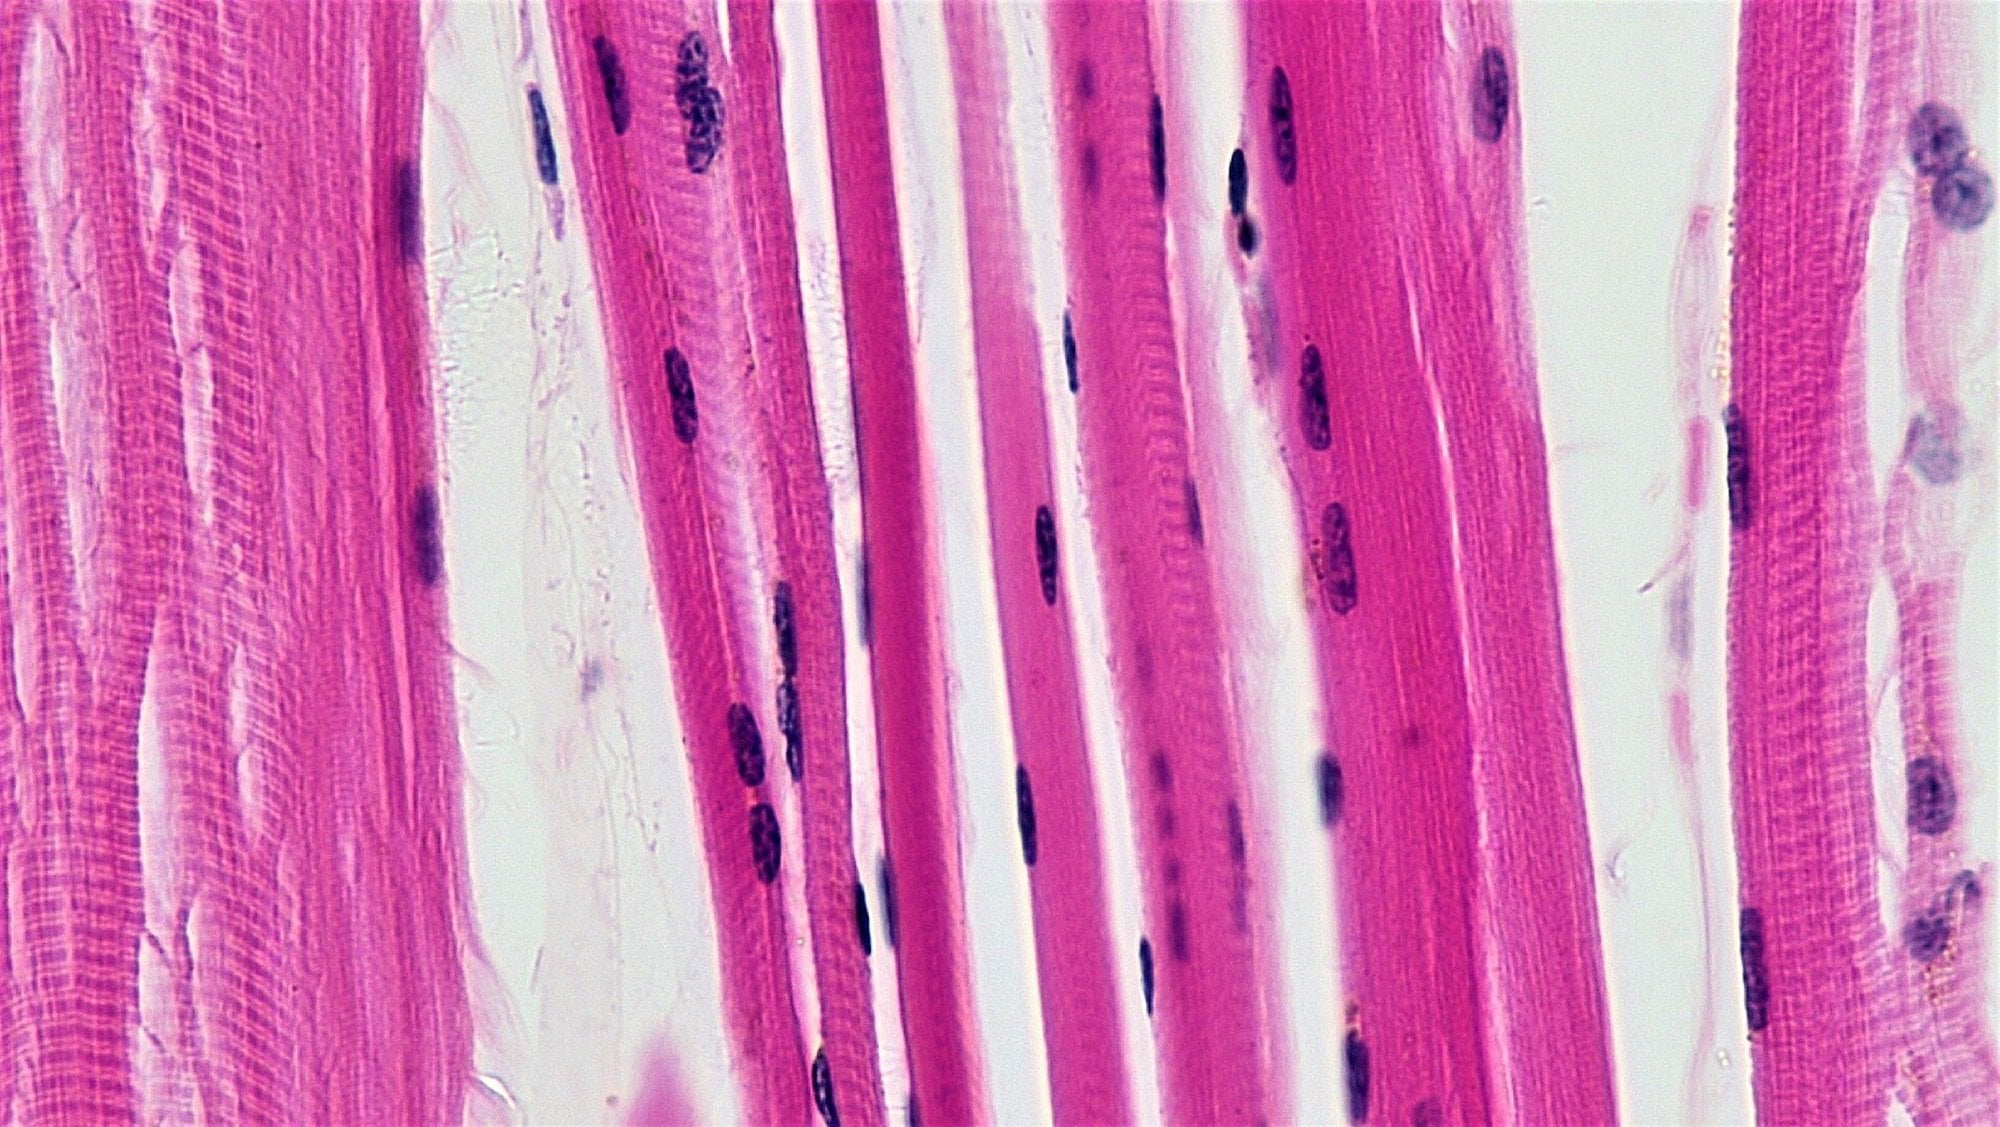
Kemikler ve sinovyal eklemler hareketin olası rotalarını çizse de, bu parçaların hiçbirinde kendi başına kuvvet üretecek bir mekanizma yoktur. Kuvvet kaslardan gelmektedir. İnsan vücudunda kasılarak mekanik iş üreten üç farklı kas dokusu türü bulunmaktadır. Bunlar iskelet kası, kalp kası (İng: "cardiac muscle") ve düz kas (İng: "smooth muscle") olarak adlandırılmaktadır. Mikroskop altında incelendiğinde iskelet kası dokusu bantlı ya da çizgili (İng: "striated") bir görünüm sergilemektedir. Bu belirgin çizgilenme, hücre içindeki aktin ve miyozin adlı kasılma proteinlerinin düzenli dizilişinden kaynaklanmaktadır.
İskelet kası düşünce yoluyla bilinçli biçimde kontrol edilebildiği için istemli kas (İng: "voluntary muscle") olarak da anılmaktadır. Oysa kalp kası da tıpkı iskelet kası gibi çizgili bir iç düzene sahip olmasına rağmen bilinçli olarak kontrol edilememekte ve bu nedenle istemsiz kas (İng: "involuntary muscle") sınıfında yer almaktadır.
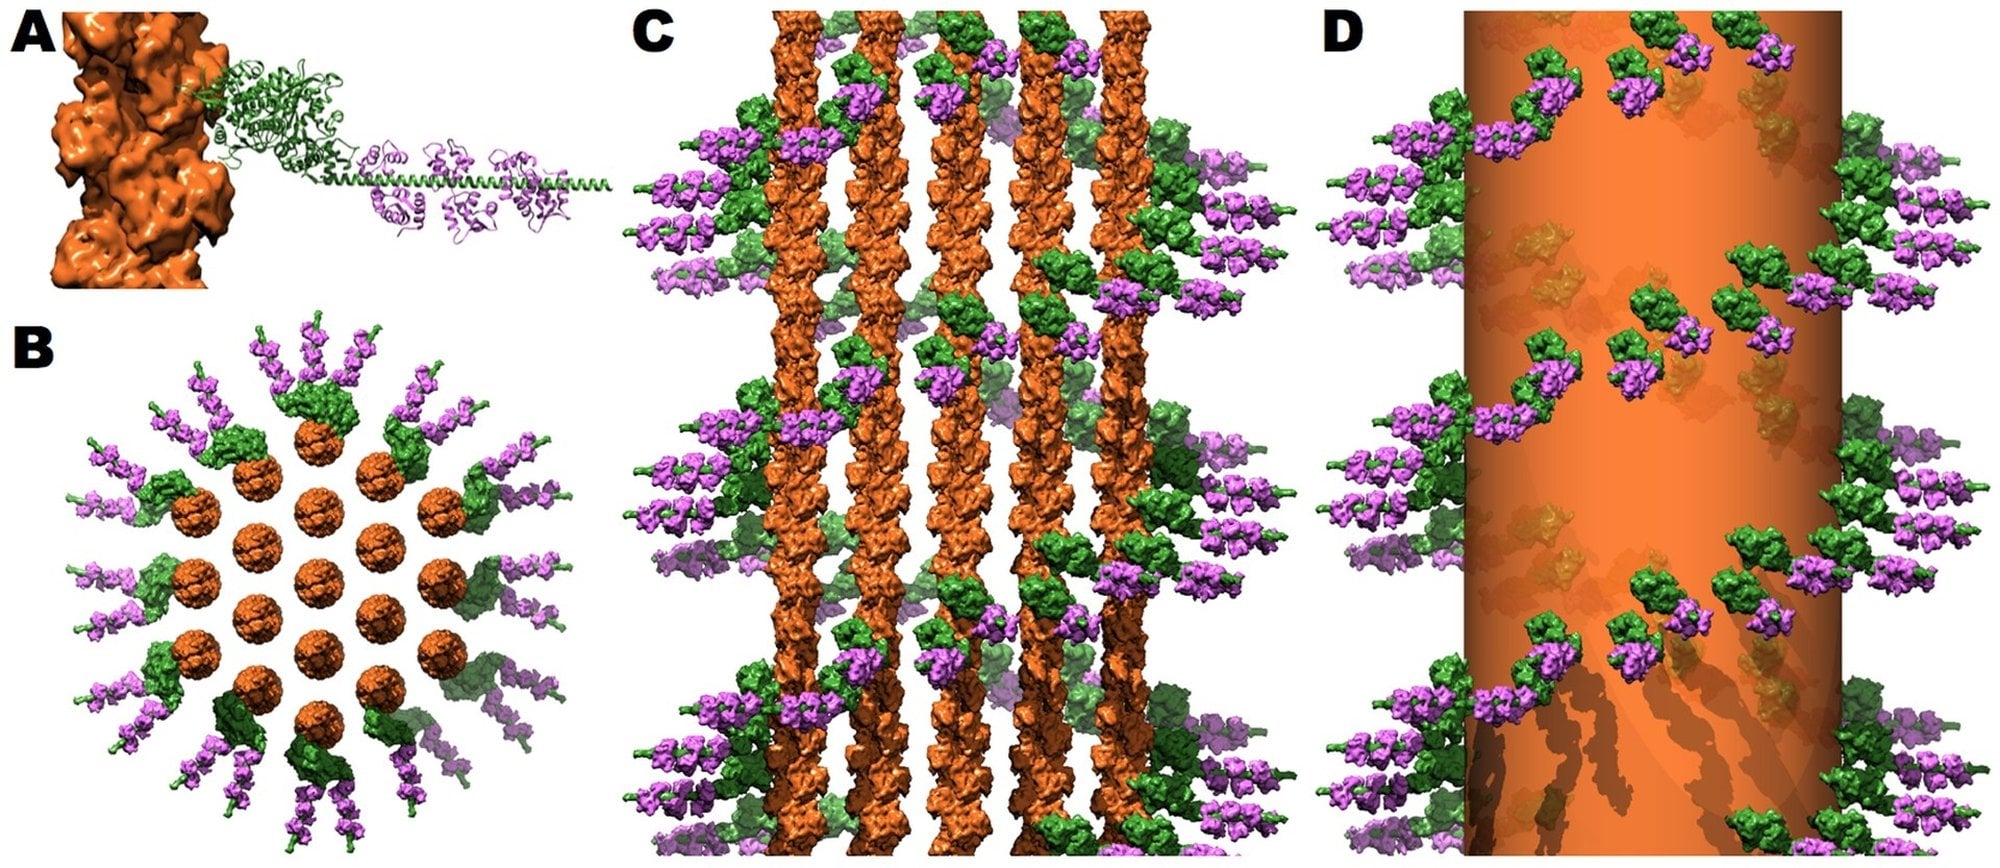
Hücresel düzeyde bakıldığında iskelet kası lifleri (hücreleri), uzun, silindirik biçimli ve çok çekirdekli hücrelerdir. Her bir kas lifinin içinde, hücre boyunca birbirine paralel uzanan uzun silindirik yapılar olan miyofibriller (İng: "myofibrils") yer almaktadır. Miyofibrillerin üzerinde tekrarlayan ve bir Z çizgisinden bir sonraki Z çizgisine kadar uzanan işlevsel kasılma birimine ise sarkomer (İng: "sarcomere") adı verilmektedir. Kasılmanın temel birimi sarkomerdir. Sarkomerin içindeki ince (aktin) ve kalın (miyozin) filamentler bu birimde düzenli bir geometrik yerleşim kurmaktadır.
Kayan filament modeline (İng: "sliding filament model") ilişkin temel kanıtlar, 1954 yılında Hugh E. Huxley ile Jean Hanson ve bağımsız olarak Andrew F. Huxley ile Rolf Niedergerke tarafından yayımlanan çalışmalarla ortaya konmuştur.[13] Bu modele göre sarkomerin bileşenleri olan kalın ve ince filamentlerin kendi boyları kısalmamaktadır. Bunun yerine filamentler birbirlerinin yanından kaymakta ve kendi uzunlukları sabit kalırken sarkomerin boyunu kısaltmaktadır.
Bir sarkomerin kısalmaya başlaması, merkezi sinir sisteminden gelen elektriksel ve kimyasal bir komut zinciriyle gerçekleşmektedir. Zincir birkaç halkadan oluşmaktadır. Her bir iskelet kası lifi, beyinden veya omurilikten kasa sinyal ileten bir motor nöron (İng: "motor neuron") tarafından kontrol edilmektedir. Motor nöronun ucundan salgılanan bir nörotransmitter olan asetilkolin (ACh, İng: "acetylcholine"), kas lifinin üzerindeki motor son plakta (İng: "motor end plate") bulunan reseptörlere bağlanmaktadır. Bu sinirsel sinyal, hücre içindeki sarkoplazmik retikulumdan kas sitoplazmasına (sarkoplazma) kalsiyum iyonlarının salınmasını tetiklemektedir.
Kasılma döngüsünün kesintisiz sürmesi ve kasın yeniden gevşeyebilmesi için hücrenin enerji molekülü olan ATP zorunludur, çünkü ATP molekülünün miyozine bağlanması, miyozinin aktini bırakmasına ve böylece aktin ile miyozinin birbirinden ayrılmasına olanak tanımaktadır. ATP olmadan miyozin aktinden ayrılamamaktadır. Kas kasılmasının moleküler basamakları ayrı bir yazıda ayrıntılı olarak anlatılmaktadır. Bu mikroskobik kayma hareketi sonucunda kasın uyguladığı çekme kuvvetine gerilim (İng: "tension") adı verilmektedir.
Kas Gruplarının Etkileşimi, Kasılma Türleri
Kas liflerinin içindeki sarkomerlerde üretilen gerilimin bir eklemi bükebilmesi için bu kuvvetin kemiklere eksiksiz iletilmesi gerekmektedir. Çoğu iskelet kasında liflerin kasılmasıyla oluşan gerilim, iskeleti hareket ettirmek amacıyla tendonlara (kirişlere, İng: "tendons") aktarılmaktadır. Tendonlar, kasları kemiklere bağlayan güçlü ve düzenli sıkı bağ dokusu bantlarıdır ve kasın ürettiği gerilimi kemiğe iletmektedir.
Bir kasın eklem üzerindeki etkisini belirleyen temel unsur, tendonlarının hangi kemiklere tutunduğudur. Kasın çekilen kemiğe bağlanan hareketli ucuna insersiyo (sonlanma, İng: "insertion"), sabit (kararlı) tutulan kemiğe bağlanan ucuna ise origo (başlangıç, İng: "origin") adı verilmektedir. Bazı iskelet kasları hareket üretmek için iskeleti çekmemektedir. Örneğin yüz ifadelerini oluşturan mimik kasları hareketi kemiği çekmeden üretmektedir.
Agonist, Antagonist, Sinerjist Kas Rolleri
Bir hareketin gerçekleşmesine birden fazla kas katılabilse de, söz konusu eylemi üreten başlıca kasa agonist (asıl hareket ettirici, İng: "prime mover" veya "agonist") adı verilmektedir. Agonist kasın kasılmasıyla oluşan hareketin tam tersi yönde etki gösteren kasa ise antagonist (karşıt kas, İng: "antagonist") denmektedir.
Karmaşık hareketlerde agonist kas tek başına bırakılmamaktadır. Agonist kasa hareketi sırasında yardım eden kaslara sinerjist (yardımcı kas, İng: "synergist") adı verilmektedir. Örneğin ön kolun bükülmesi sırasında biseps kasına brakiyalis (Lat: "brachialis") kası yardım edebildiği için brakiyalis bu eylemde bir sinerjisttir. Ayrıca bir sinerjist kas, asıl hareket ettiricinin origo ucunun tutunduğu kemiği sabit tutan bir fiksatör (sabitleyici, İng: "fixator") olarak da görev yapabilmektedir.
Üyelerdeki fleksiyon ve ekstansiyon hareketleri, karşıt kas çiftlerinin bu uyumlu ortaklığını açıkça sergilemektedir. Örneğin üst üyede biseps kası (Lat: "biceps brachii") ön kolu bükerken (fleksiyon), kolun arka yüzündeki triseps kası (Lat: "triceps brachii") ön kolu açmaktadır (ekstansiyon). Benzer şekilde alt üyede uyluğun arka yüzündeki hamstring kasları bacağı (dizi) bükerken, uyluğun ön yüzündeki kuadriseps grubu (Lat: "quadriceps femoris") dizi açmaktadır.
Burada gözden kaçırılmaması gereken önemli bir kavramsal ayrım vardır. Agonist ve antagonist adları bir kasın sabit ve değişmez kimliği değildir. Aslında bu roller tamamen incelenen hareketin yönüne göre verilmektedir. Diz eklemini açma (tekme atma) hareketinde kuadriseps agonist, hamstringler ise antagonisttir. Ancak incelenen hareket dizin bükülmesi olduğunda, bu kez hamstring kasları agonist, kuadriseps grubu ise antagonist olarak adlandırılmaktadır.
İzometrik, Konsantrik, Eksantrik Kasılma Biçimleri
Bir iskelet kasının aktif olarak gerilim üretmesi, her zaman kasın boyunun kısaldığı ve eklemin hareket ettiği anlamına gelmemektedir. Kasın ürettiği iç gerilim ile dışarıdaki yükün büyüklüğü arasındaki ilişki, üç farklı kasılma biçimini ortaya çıkarmaktadır. Birincisi hareketsiz bir kasılmadır. Kasın bir iskelet ekleminin açısını değiştirmeden gerilim ürettiği duruma izometrik kasılma (İng: "isometric contraction") adı verilmektedir.[16] Örneğin bir çanta dirsek sabit bir açıda tutularak taşındığında ya da gündelik yaşamda dik duruş (postür) ve eklem kararlılığı korunduğunda izometrik kasılmalar devrededir.
Öte yandan kasın ürettiği gerilim dış yükün direncini aştığında eklem açısı değişmekte ve hareket başlamaktadır. Kasın bir yükü hareket ettirmek üzere boyunu kısaltarak gerçekleştirdiği bu kasılmaya konsantrik kasılma (İng: "concentric contraction") denmektedir. Örneğin masadaki bir ağırlık ele alınıp dirsek bükülerek omuza doğru kaldırıldığında biseps kası konsantrik olarak kasılmaktadır.
Kaldırılan ağırlık hızla düşürülmeden masaya yavaşça geri bırakılırken biseps kası ne yapmaktadır? İlk bakışta kol açıldığı için işin triseps kası tarafından yapıldığı sanılabilmektedir. Oysa eldeki ağırlığın yavaş ve kontrollü bir biçimde aşağı indirilmesi sırasında biseps kasının gerilimi azalırken kasın boyu uzamaktadır. Bu duruma eksantrik kasılma (İng: "eccentric contraction") adı verilmektedir.
Üstelik dinlenme anlarında bile iskelet kasları tamamen gevşemiş bir halde değildir. Sinir sisteminin dinlenme halinde kas liflerinde sürdürdüğü düşük düzeyli kasılma durumuna kas tonusu (İng: "muscle tone") denmektedir. Kas tonusunun ürettiği bu kesintisiz gerilim, kasların eklemleri sürekli kararlı tutmasına ve vücut duruşunu korumasına olanak sağlamaktadır.
Refleks Yayları, Sinirsel Hareket Kontrolü
Bir motor nöron ve kontrol ettiği bütün kas lifleri bir araya gelerek işlevsel bir motor birim (İng: "motor unit") oluşturmaktadır. Beyin veya omurilikten gelen komutla harekete katılan motor birimlerin sayısı arttıkça, kasın toplam kasılma kuvveti de artmaktadır.[16] Bu sürece motor birim katılımı (İng: "motor unit recruitment") adı verilmektedir.
Basit somatik reflekslerde, bilinçli hareketten sorumlu üst beyin merkezlerinin sürece katılması gerekmemektedir. Öte yandan reflekslerin tamamı tek bir anatomik merkezde gerçekleşmemektedir. Devreye giren çevresel sinirlere ve merkezi sinir sistemi bileşenlerine bağlı olarak refleksler spinal (omurilik kaynaklı) veya kraniyal (beyin sapı ve kafa sinirleri kaynaklı) olabilmektedir. Dolayısıyla bütün reflekslerin sadece omurilik tarafından yürütüldüğü düşüncesi eksik bir genellemedir.
Geri Çekilme, Gerilme Reflekslerinde Baskılama
Harekete dayalı bir tepkinin oluşmasında iskelet, kas ve eklemlerin nasıl eş güdümlü çalıştığı en yalın haliyle geri çekilme refleksinde görülmektedir. Sıcak bir ocağa dokunulduğunda ortaya çıkan ısı ve ağrı duyuları, omurilikteki sinirsel bir bağlantı üzerinden biseps kasının kasılmasına ve kolun geri çekilmesine yol açmaktadır. Fakat dirsek ekleminde fleksiyon hareketinin gerçekleşebilmesi için sadece agonist konumundaki biseps kasının kasılması yeterli değildir. Aynı anda antagonist konumundaki triseps kasının da gevşemesi gerekmektedir.
Biseps kasılırken triseps gevşemelidir. Elin yandığını algılayan duyu nöronunun aksonu, omurilikteki bir ara nöronla (İng: "interneuron") sinaps yapmaktadır. Bu ara nöron, triseps kasını kontrol eden motor nöronu baskılamaktadır (inhibe etmektedir). Motor nöronu baskılanan triseps kası gevşemektedir.[9]
Benzer bir karşılıklı eş güdüm, gerilme refleksinde (İng: "stretch reflex") de işlemektedir. Bir iskelet kası dış bir kuvvetle aniden gerildiğinde, kasın içindeki kas iğciği reseptörü (İng: "muscle spindle receptor") etkinleşmektedir. Bu reseptör yapısından çıkan akson, kasın doğrudan kasılmasına yol açmaktadır. Aynı zamanda kas iğciği lifinden ayrılan bir yan dal (kollateral), antagonist kasların motor nöronunu baskılamaktadır.[9] Diz sıçraması (patella refleksi, İng: "knee jerk"), gerilme refleksinin yaygın bir örneğidir. Fiziksel muayenelerde patellar ligamente (diz kapağı bağına) lastik bir refleks çekiciyle vurulduğunda ortaya çıkmaktadır.
Kraniyal Refleksler, Beyinciğin Düzeltici Rolü
Omurilik dışında işleyen kraniyal reflekslere bir örnek, gözün saydam tabakasını koruyan kornea refleksidir (göz kırpma refleksi). Bu refleksin motor yanıtı, kafa sinirlerinden biri olan yüz siniri (fasiyal sinir) üzerinden geçerek göz çevresi kasını (Lat: "orbicularis oculi") uyarmaktadır. Tek bir göze temas edildiğinde bile motor yanıt her iki taraftaki göz çevresi kasında ortaya çıkmaktadır.
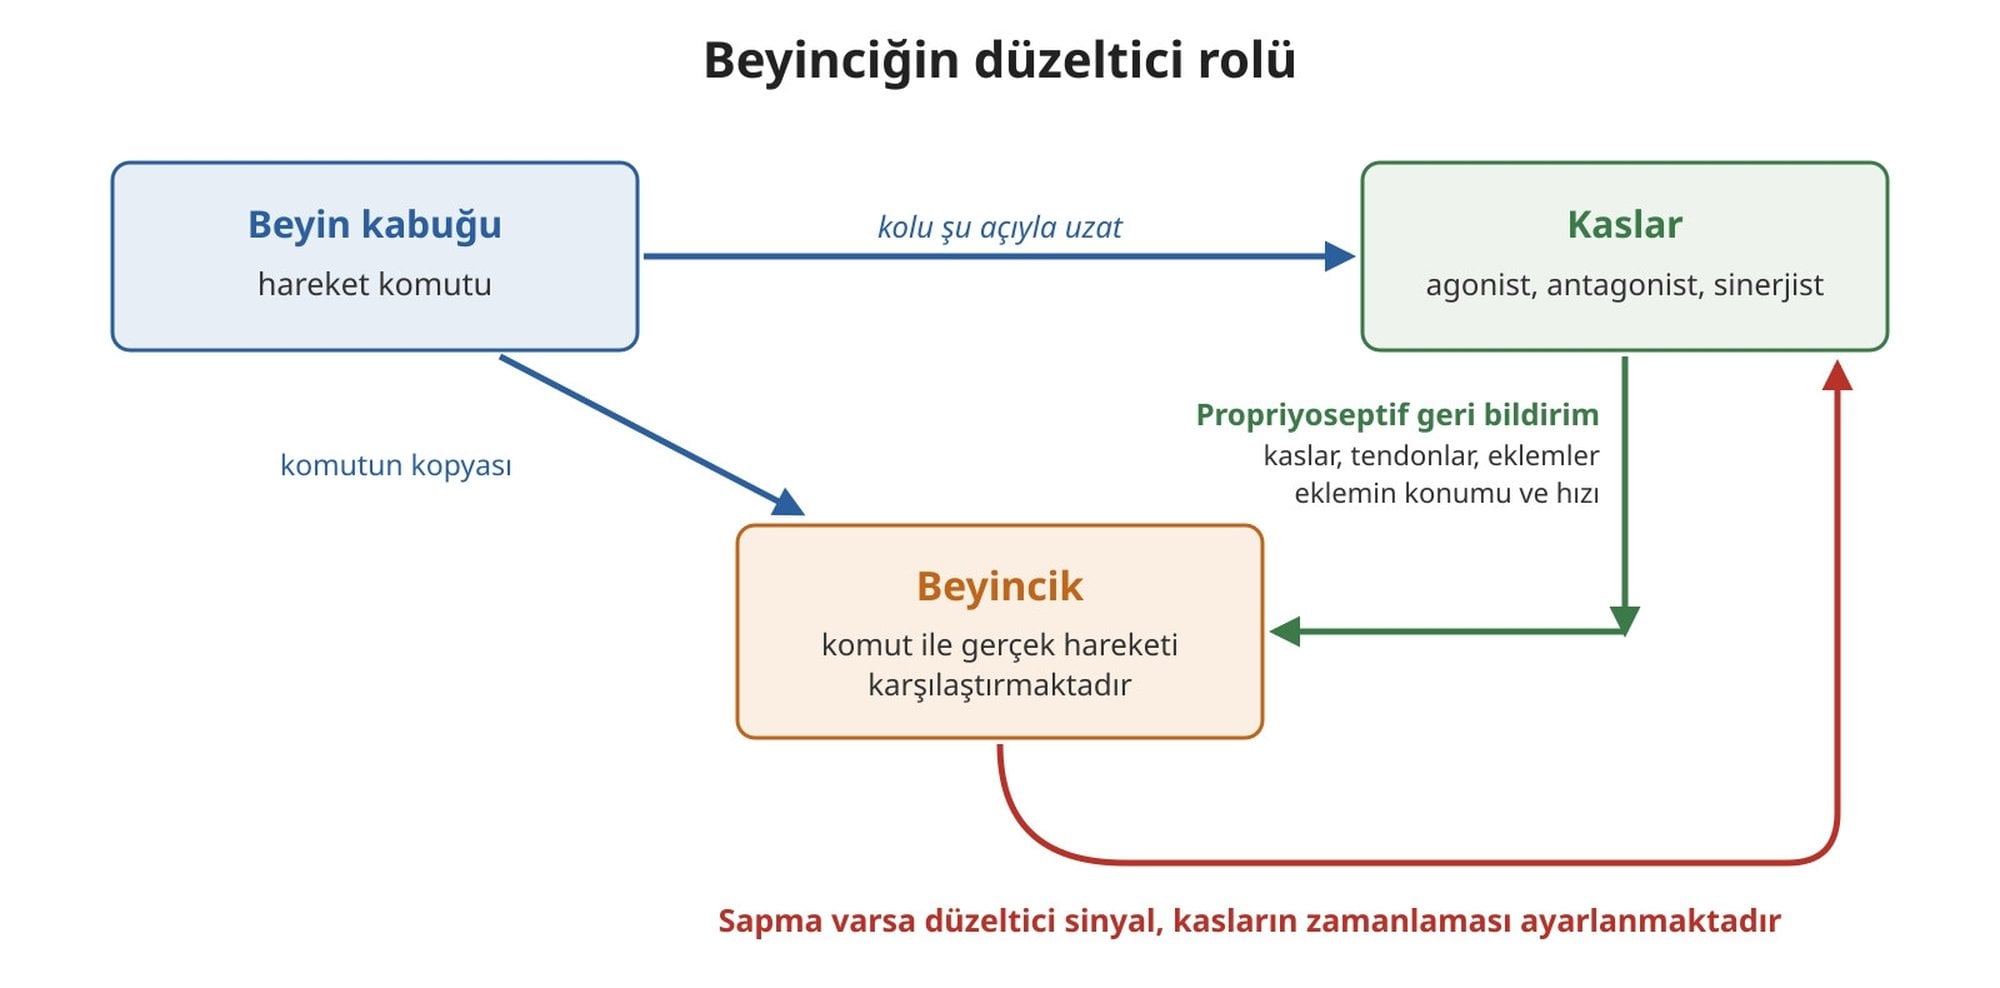
Beyincik (serebellum, İng: "cerebellum") hareketin eş güdümüne katkıda bulunmakta ve beyin kabuğundan (serebral merkezlerden) gönderilen motor hareket komutlarını, kaslardan, tendonlardan ve eklemlerden gelen propriyoseptif geri bildirimle (özduyum geri bildirimi, İng: "proprioceptive feedback") sürekli karşılaştırmaktadır.
Kas-İskelet Kaldıraçları, Tork Hesaplamaları
Sinir sisteminin karşıt kasları gevşetip asıl hareket ettirici kası uyardığı bir eylemde, kemiklerin ve eklemlerin ne kadar büyük kuvvetlere maruz kaldığını anlamak için hareket sistemini fiziksel bir kaldıraç düzeneği olarak incelemek gerekmektedir. Aslında kas-iskelet sistemi mekanik açıdan basit makinelerdeki kaldıraçlara benzer biçimde çalışmaktadır. Bu düzenekte kemikler sert birer kaldıraç (İng: "lever"), sinovyal eklemlerin içinde yer alan kemik eklem uçları ise destek noktası (fulkrum, İng: "fulcrum") görevi görmektedir. Kaldırılan bir cisim veya harekete karşı koyan herhangi bir direnç (örneğin baş kaldırılırken başın kendi ağırlığı) yük (İng: "load") olurken, uygulanan kuvvet (çaba, İng: "effort") kasılan iskelet kasından gelmektedir.[8]
Mühendislikte bir manivela kullanılırken genellikle kuvvet kolu uzun, yük kolu kısa tutularak küçük bir kuvvetle çok ağır bir yükün kaldırılması hedeflenmektedir. Oysa insan vücudundaki kas-iskelet kaldıraçlarının tasarımı tam tersi bir geometriye sahiptir, çünkü vücuttaki kasların büyük çoğunluğu kemiklere tendonlar aracılığıyla eklemlere (destek noktalarına) oldukça yakın mesafelerden bağlanmaktadır. Bu yakın bağlanma düzeni, kas-iskelet sistemlerinin mekanik avantajının (İng: "mechanical advantage") 1'den çok küçük olmasına yol açmaktadır.
Mekanik avantajın 1'den küçük olması ne anlama gelmektedir? Kasın destek noktasına olan dik uzaklığına kuvvetin moment kolu, taşınan yükün destek noktasına olan dik uzaklığına ise yükün moment kolu denmektedir. Vücutta kuvvetin moment kolu, yükün moment kolundan çok daha kısa olduğundan, eklem etrafında dönme dengesini (tork dengesini) sağlamak için kasın içeride ürettiği çekme kuvveti, dışarıda desteklenen yükün ağırlığından büyük olabilmektedir.[10]
Ön Kolda Kuvvet, Eklem Tepkisi
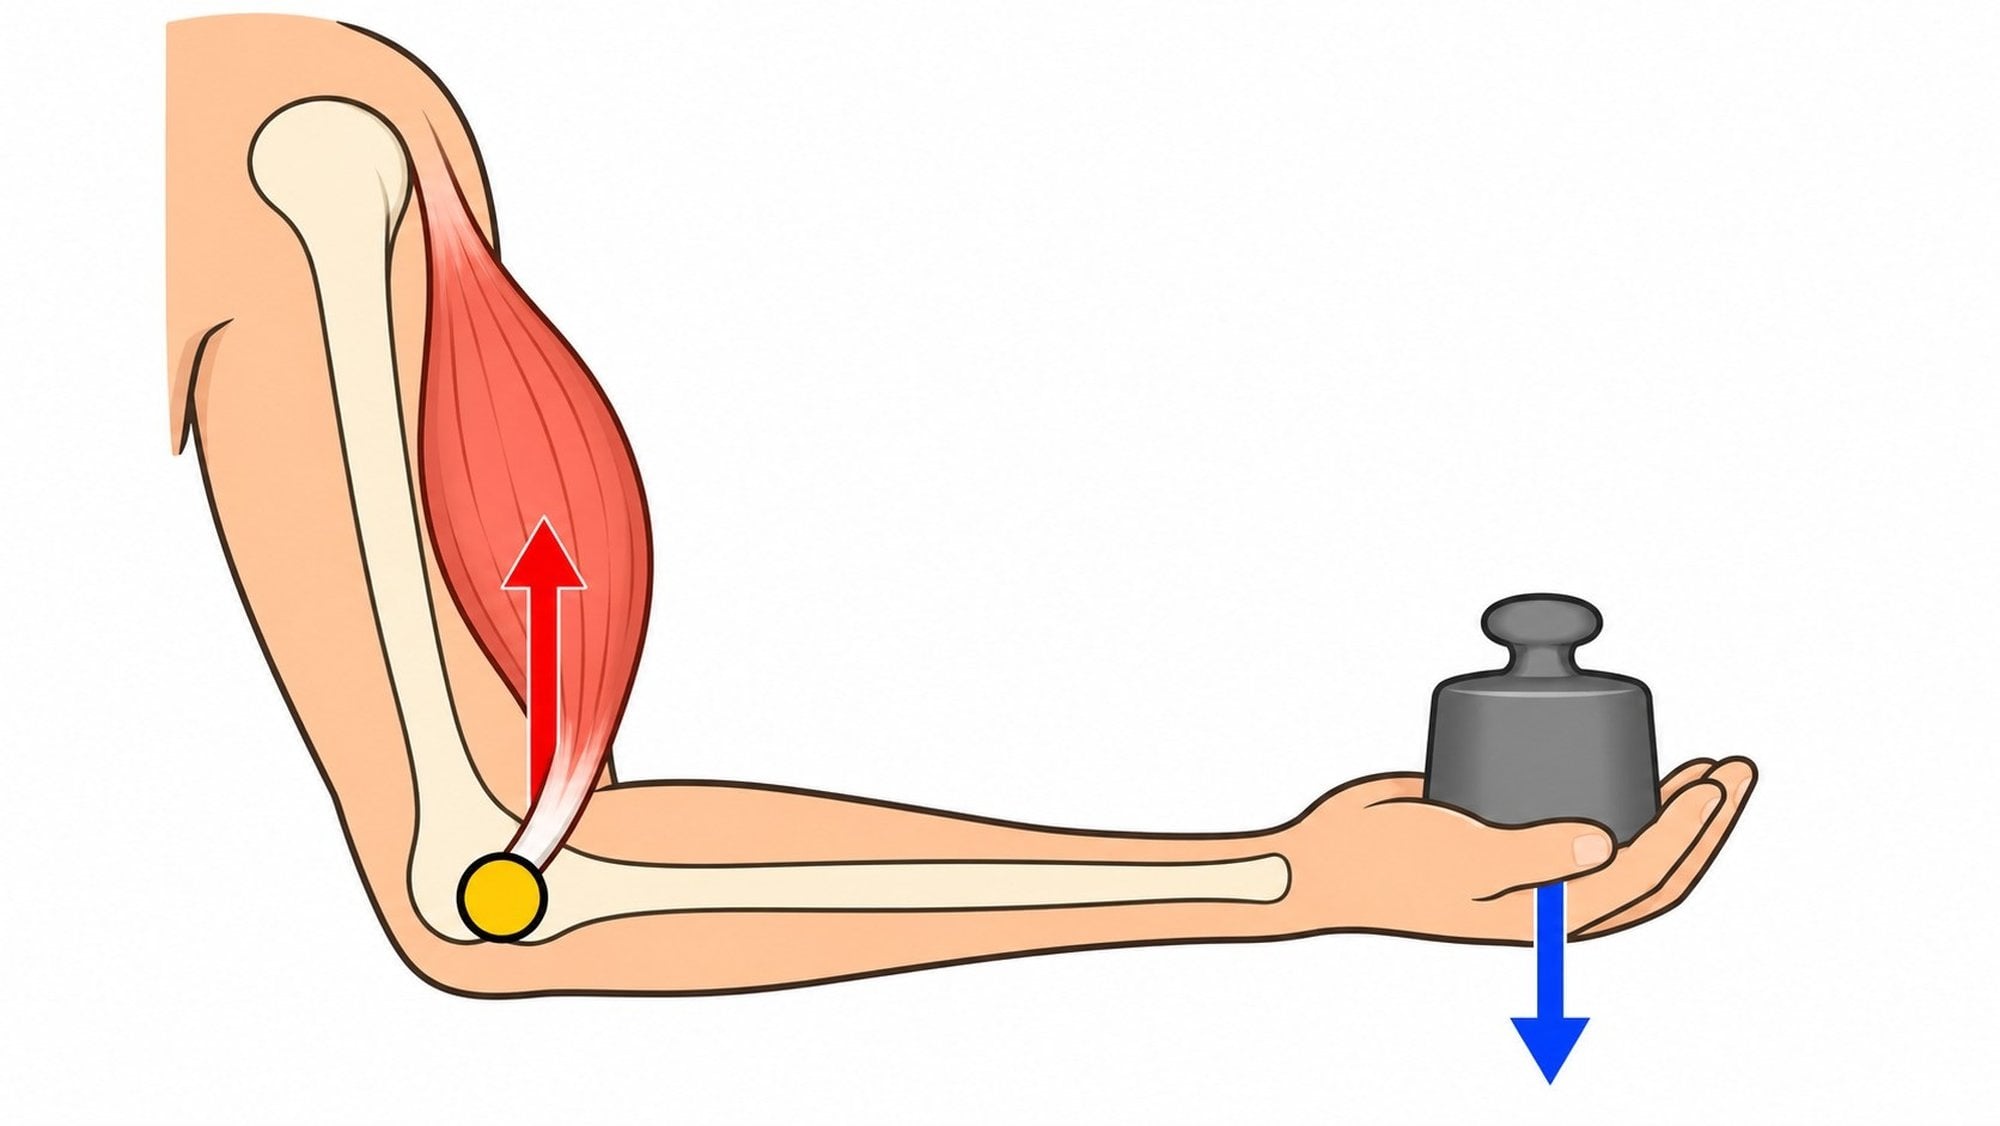
Tendonların ekleme yakın bağlanmasının iç kuvvetleri nasıl büyüttüğünü görmek için dirsek bükülü halde elinde bir kitap tutan bir ön kol, tork dengesiyle incelenmektedir. Hesap basit bir denge ilkesine dayanmaktadır. Bu modelde dirsek eklemi destek noktasıdır ve antagonist konumundaki triseps kasının tamamen gevşemiş olduğu varsayılmaktadır.
Çözümlü örnek 1: Kitap tutan ön kolda biseps kası kaç newton kuvvet üretmektedir?
Verilenler: Triseps kasının gevşemiş olduğu durumda kütlesi 2,50 kg ve dirsek destek noktasına dik moment kolu 0,160 m olan ön kol, kütlesi 4,00 kg ve dik moment kolu 0,380 m olan kitap, biseps kasının dik moment kolu 0,0400 m ile yerçekimi ivmesi 9,80 m/s²'dir.[10]
İstenen: Ön kolu ve kitabı dengede tutmak için biseps kasının uyguladığı kuvvet () ile bu kuvvetin desteklenen toplam ağırlığa oranı.
1. adım: Ön kolun ve kitabın ağırlık torklarının toplamı biseps kasının 0,0400 m'lik dik moment koluna bölünerek kuvveti hesaplanmaktadır:
2. adım: Kol ile kitabın 6,50 kg olan toplam kütlesi yerçekimi ivmesiyle çarpılarak desteklenen toplam ağırlık () ve biseps kuvvetinin bu ağırlığa oranı bulunmaktadır:
Sonuç: Üç anlamlı basamağa yuvarlandığında biseps kası ön kolu ve kitabı sabit tutmak için 470 N kuvvet üretmektedir. Desteklenen toplam ağırlık 63,7 N'dur. Kas kuvveti bunun 7,38 katıdır.
Biseps kasının yukarı yönde 470 N kuvvetle çektiği bir ön kolda, aşağı yönlü toplam ağırlık sadece 63,7 N ise ön kol neden yukarı doğru ivmelenmemektedir? Çünkü sistemin dengede kalabilmesi için destek noktası olan dirsek ekleminde üst kol kemiğinin (humerus) ön kol kemiklerine aşağı yönde büyük bir tepki kuvveti uygulaması gerekmektedir.
Çözümlü örnek 2: Kitap tutan ön kolda dirsek eklemine binen kuvvet kaç newtondur?
Verilenler: Çözümlü örnek 1'de yuvarlanmadan önce 470,4 N bulunan yukarı yönlü biseps kuvveti () ile ön kol ve kitabın 63,7 N olan aşağı yönlü toplam ağırlığı ().
İstenen: Dirsek ekleminde üst kol kemiğinin ön kola uyguladığı aşağı yönlü kuvvet, yani .
1. adım: Ön kol dengede olduğu için yukarı yönlü kuvvet aşağı yönlü kuvvetlerin toplamına eşittir. Bu nedenle biseps kuvvetinden toplam ağırlık çıkarılarak bulunmaktadır:
Sonuç: Üç anlamlı basamağa yuvarlandığında dirsek ekleminde üst kol kemiği aşağı yönde 407 N kuvvet uygulamaktadır. Yukarı yönlü kas kuvveti 470 N'dur. Yuvarlatılmış fark ise 63 N olmaktadır.
Belden Yük Kaldırma, Modelin Sınırları
Örneğin dizleri bükmeden doğrudan belden öne eğilerek yerdeki bir kutuyu kaldırırken, kalça ve alt omurga bölgesi destek noktası gibi davranmaktadır. Üst gövdenin ve kaldırılan kutunun ağırlık merkezleri bu destek noktasından oldukça uzakta yer alırken, omurgayı doğrultan sırt kasları omurlara çok yakın bir hat boyunca uzanmaktadır.
Çözümlü örnek 3: Belden eğilerek kutu kaldırırken sırt kaslarında oluşan kuvvet kaç newtondur?
Verilenler: Kütlesi 55,0 kg ve dik moment kolu 0,350 m olan üst gövde, kütlesi 30,0 kg ve dik moment kolu 0,500 m olan kutu, sırt kaslarının dik moment kolu 0,0800 m ile yerçekimi ivmesi 9,80 m/s²'dir.
İstenen: Belden eğilerek kutuyu kaldırırken sırt kaslarında oluşan çekme kuvveti, yani .
1. adım: Üst gövdenin ve kutunun ağırlık torklarının toplamı sırt kaslarının 0,0800 m'lik dik moment koluna bölünerek kuvveti hesaplanmaktadır:
Sonuç: Üç anlamlı basamağa yuvarlandığında, belden eğilerek 30,0 kg kütleli bir kutuyu kaldırırken sırt kaslarında 4.200 N büyüklüğünde bir kuvvet oluşmaktadır.
Sırt kaslarında doğan bu 4.200 N büyüklüğündeki kuvvet, kas kuvvetinin kaldırılan yükün ağırlığından çok büyük olabildiğini göstermektedir. Yine de bu tork denklemlerini değerlendirirken basit kaldıraç modelinin önemli bir sınırını akılda tutmak gerekmektedir. Gerçek eklemlerin pek çoğunda eklem büküldükçe dönme noktasının (pivot noktasının) konumu yer değiştirmektedir. Bu nedenle dik moment kollarının uzunluğu ve sistemin mekanik avantajı da hareket boyunca sabit kalmayıp sürekli değişmektedir.
Hareket Sisteminde Yanılgılar, Eklem Yıkımı
Kas-iskelet düzeneğinin hem hücresel düzeyde yenilenen hem de eklem açısıyla geometrisi değişen dinamik bir sistem olması, hareketi tek bir parçaya indirgeyen basit genellemeleri geçersiz kılmaktadır. Ne var ki hem spor ve egzersiz fizyolojisinde hem de eklem hastalıklarının açıklanmasında, bu çok katmanlı yapıyı sabit kutulara veya cansız makine parçalarına benzeten indirgemeci yanılgılar bulunmaktadır.
Kas lifi özelliklerini veya eklem sağlığını değerlendirirken bütün sistemi hesaba katmak gerekmektedir. Aşağıda bu yanılgılardan ikisi ele alınmaktadır. Birincisi kas lifi türlerine, ikincisi ise osteoartritin nedenlerine ilişkindir.
Kas Lifi Türleri, Kuvvet Genellemesi
İskelet kası fizyolojisinde bazı varsayımlar, kas lifi türlerine ilişkin aşırı basitleştirilmiş sınıflandırmalara dayanmaktadır. Eleştirilen varsayımlardan biri, kas liflerinin miyozin izoformuna (miyozin protein türüne) göre yapılan sınıflandırması ile lifin oksidatif kapasitesine (oksijenli enerji üretim yeteneğine) göre yapılan sınıflandırmasının birbirine eşdeğer tutulmasıdır.[14] Oysa bir kas lifinin hangi miyozin izoformunu taşıdığı ile metabolik olarak ne kadar oksidatif olduğu her zaman bire bir örtüşmemektedir.
Bu iki farklı ölçütü birbirinin yerine kullanmak, kas liflerini keskin sınırlarla ayrılmış birkaç sabit kutudan oluşuyormuş gibi göstermektedir. Ancak güncel biyomekanik ve fizyoloji incelemeleri, kas liflerinin keskin kutular içinde değil, bir yapı-işlev sürekliliği (İng: "structure-function continuum") üzerinde yer aldığını vurgulamaktadır. Bu görüşe göre lif özellikleri kesintisiz bir geçiş yelpazesi sergilemektedir.
Dahası, laboratuvarda tek bir kas lifinden yapılan kuvvet ölçümlerinden yola çıkarak bütün bir kasın üreteceği kuvveti doğrudan çıkarmak ciddi sınırlılıklar taşımaktadır, çünkü bütün kas düzeyindeki kuvvet üretimi sadece kayan filament mekanizmasına veya tekil lifin kasılma gücüne bağlı değildir. Kasın iç lif dizilimini ifade eden kas mimarisi (İng: "muscle architecture"), eklem büküldükçe moment kollarını değiştiren kas-iskelet geometrisi, kaslar arası eş güdüm, motor birim katılımı ve bağ dokuları üzerinden yürüyen kuvvet iletimi (İng: "force transmission") bütün kasın gerçek performansını birlikte belirlemektedir.
Osteoartrit, Kas Zayıflığı Döngüsü
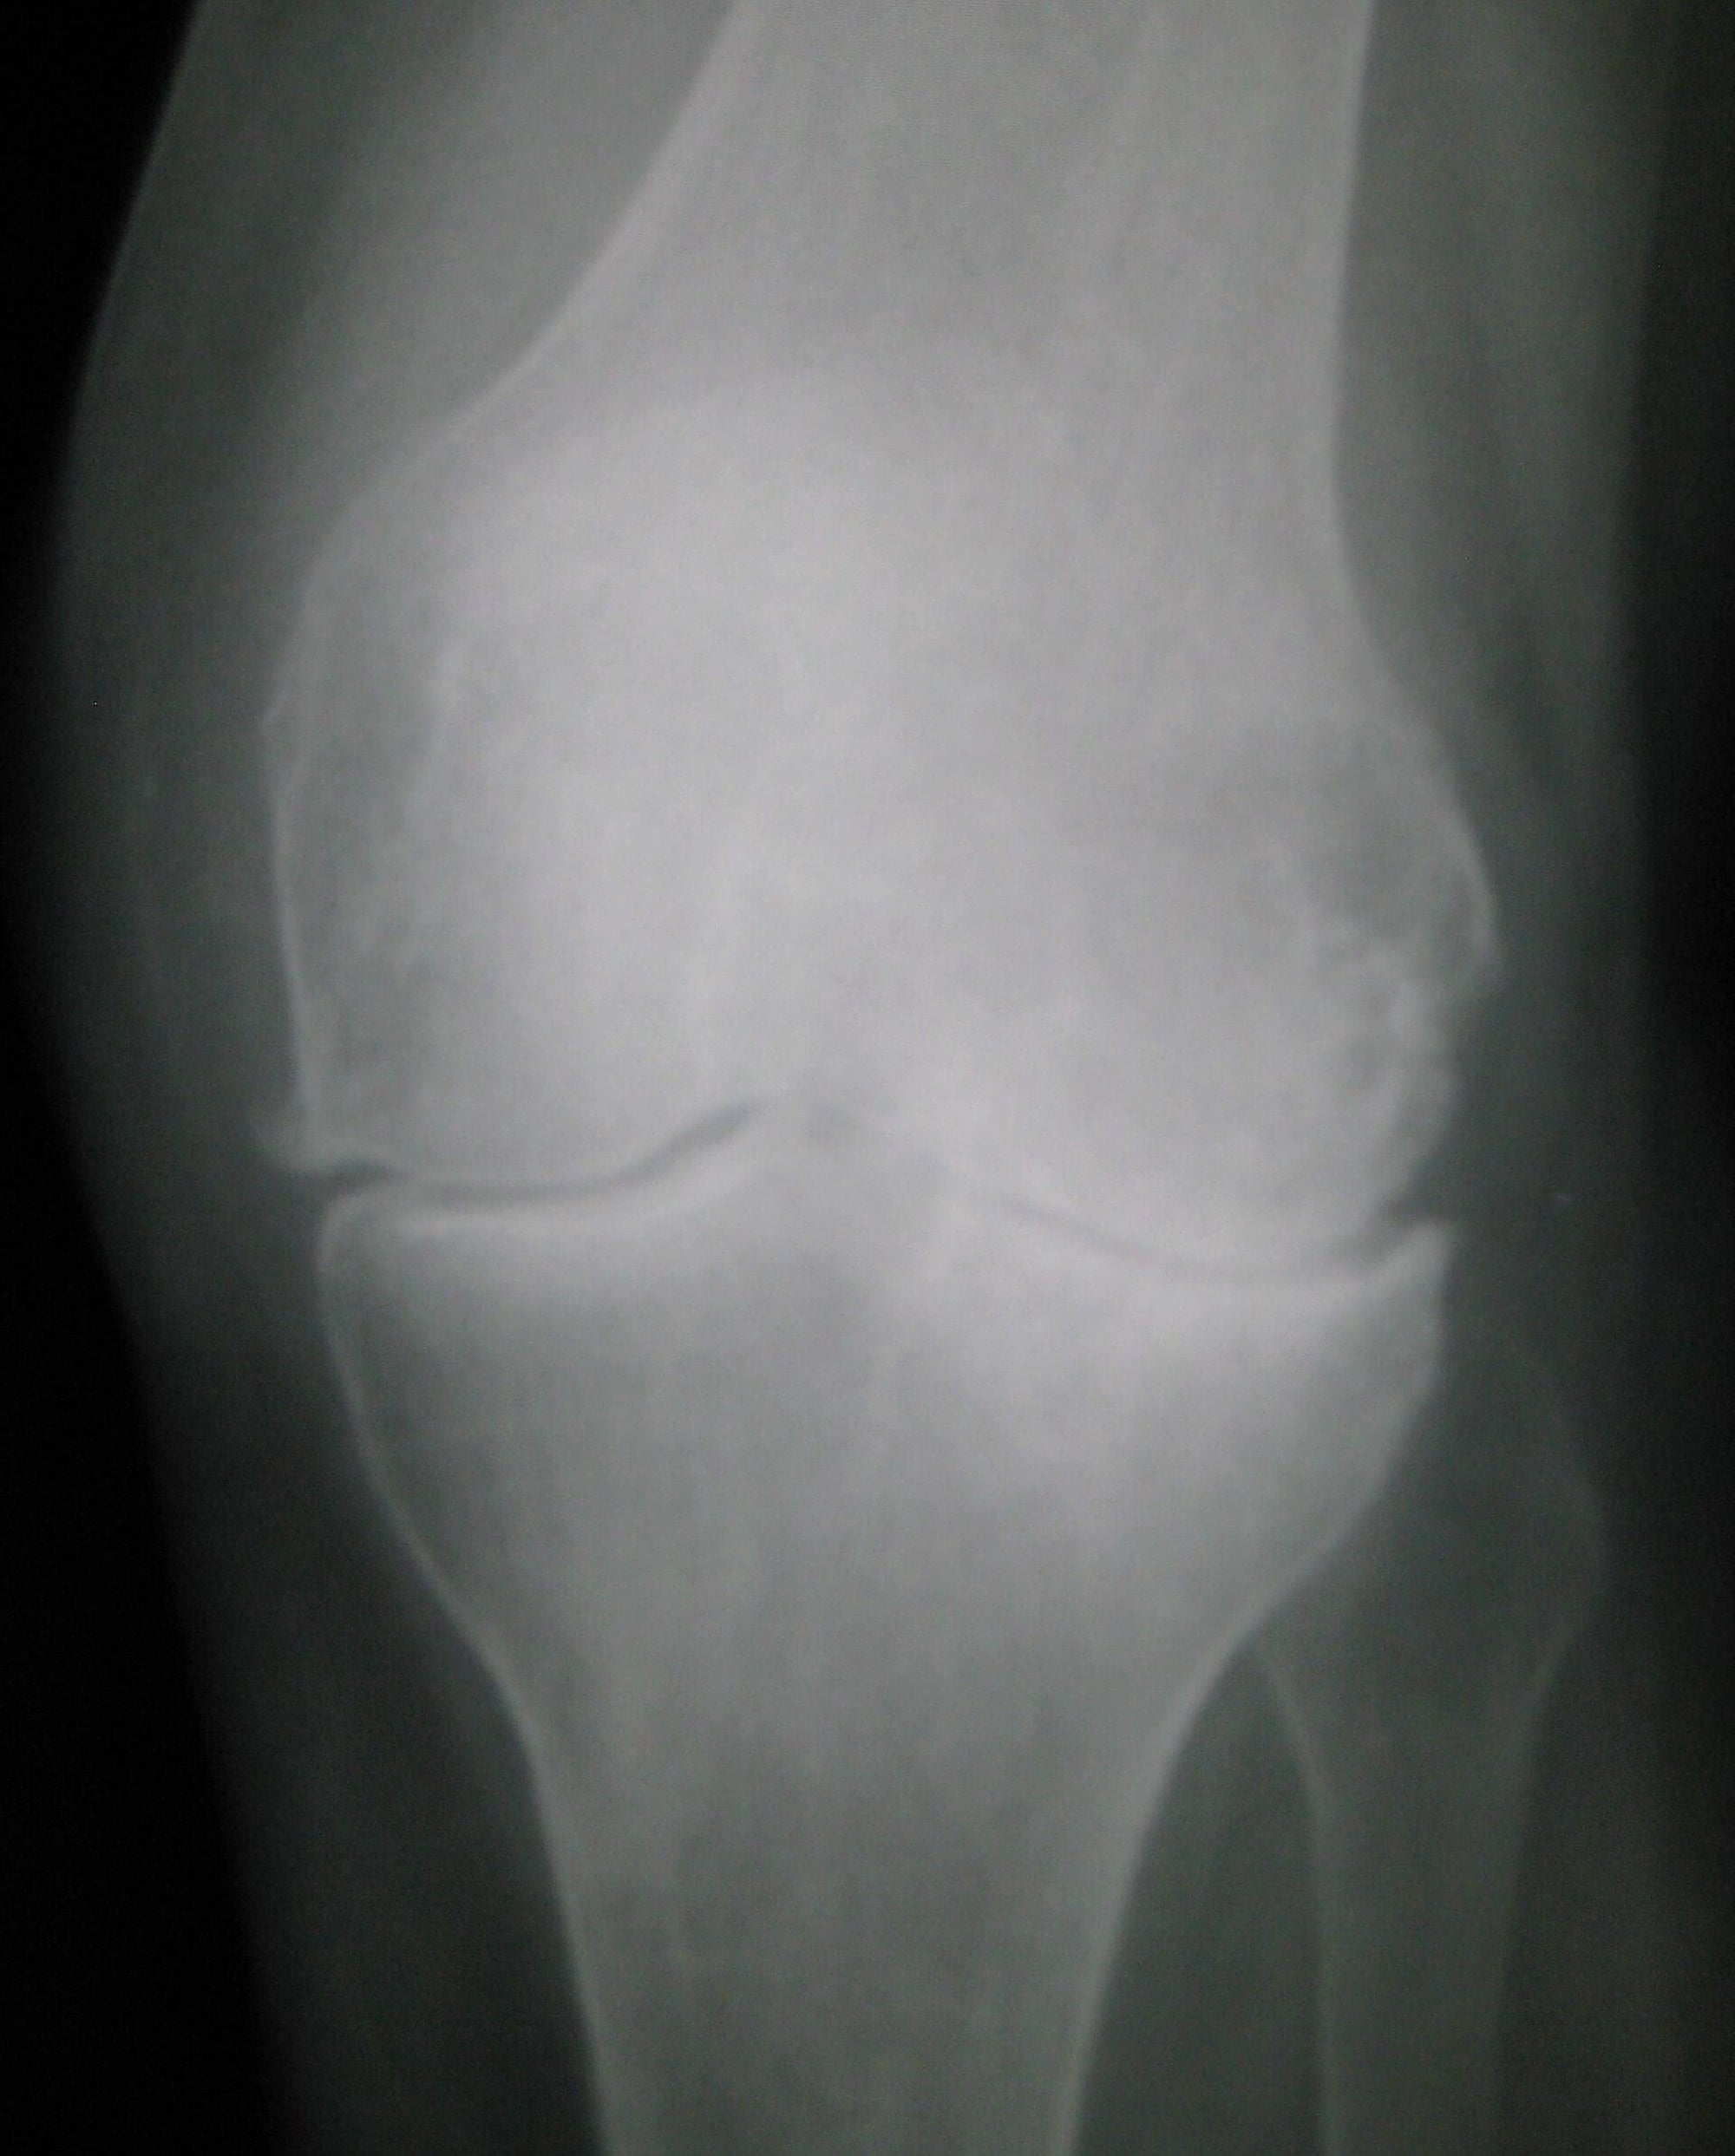
Hareket sistemini cansız bir makine gibi görme yanılgısının bir diğer örneği, osteoartrit (İng: "osteoarthritis") hastalığının nedenleri konusunda görülmektedir. Osteoartrit, eklem içindeki dokuların zamanla bozulduğu dejeneratif bir eklem hastalığıdır.[15] Uzun yıllar boyunca bu hastalığın tıpkı bir otomobil lastiğinin eskimesi gibi eklemlerin zamanla maruz kaldığı basit bir aşınma ve yıpranmadan (İng: "wear and tear") kaynaklandığı düşünülmüştür.
Ancak osteoartrit basit aşınma ve yıpranma yüzünden oluşmamaktadır.[15] Bunun yerine eklem dokularındaki değişimler yıkımı başlatabilmektedir. Eklem içindeki yumuşak dokuların hasarı ilerledikçe bireyde ağrı, şişlik ve eklem hareketinde kayıp gelişmektedir. Süreç burada da durmamaktadır. Üstelik eklem ağrısı hareketi azaltabilmekte, daha az hareket etmek de kas zayıflığına yol açabilmektedir. Gelişen bu kas zayıflığı ise eklemi koruyan kas desteğini azaltarak eklem üzerindeki mekanik yüklenmenin (stresin) daha da artmasına neden olabilmektedir.
Sonuç
İskelet kası, ürettiği çekme kuvvetini tendonlar aracılığıyla iç iskeletin kemik kaldıraçlarına aktaran ve değişken eksenli eklemler etrafında hareket oluşturan istemli kas dokusudur.[4] Ancak harekete dayalı bir tepkinin doğması sadece kas liflerinin kasılmasıyla gerçekleşmemekte, eklemlerin hareketlilik ve kararlılık dengesi ile beyinciğin propriyoseptif geri bildirimle karşılaştırmasını da gerektirmektedir. Üstelik gerçek eklemlerde bükülme sırasında dönme noktasının yer değiştirmesiyle dik moment kolları ve mekanik avantaj sabit kalmamaktadır.
Bu bulgular, kas-iskelet sisteminin ne tek bir kas lifinin ölçümüne ne de sabit eksenli cansız bir makine modeline indirgenemeyeceğini göstermektedir. Kas mimarisi, motor birim katılımı ve kuvvet iletimi bütün kasın kuvvetini birlikte belirlemektedir.
Bu makale üzerine konuşmaya devam et
Topluluk sohbetine katıl, yorum bırak veya ayrıntılı bir soru sor.
- Muhteşem!0
- Tebrikler!0
- Bilim Budur!0
- Mmm... Çok sapyoseksüel!0
- Güldürdü0
- İnanılmaz0
- Umut Verici!0
- Merak Uyandırıcı!0
- Üzücü!0
- Grrr... *@$#0
- İğrenç!0
- Korkutucu!0
- ^abClark, M. A., Douglas, M. ve Choi, J.. Biology 2E, 38.1: Types Of Skeletal Systems. Openstax, Rice University. (1 Ocak 2018). Alındığı Tarih: 7 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^Clark, M. A., Douglas, M. ve Choi, J.. Biology 2E, 38.2: Bone. Openstax, Rice University. (1 Ocak 2018). Alındığı Tarih: 7 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^Clark, M. A., Douglas, M. ve Choi, J.. Biology 2E, 38.3: Joints And Skeletal Movement. Openstax, Rice University. (1 Ocak 2018). Alındığı Tarih: 7 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^abClark, M. A., Douglas, M. ve Choi, J.. Biology 2E, 38.4: Muscle Contraction And Locomotion. Openstax, Rice University. (1 Ocak 2018). Alındığı Tarih: 7 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^Betts, J. G. ve diğerleri. Anatomy And Physiology 2E, 6.4: Bone Formation And Development. Openstax, Rice University. (1 Ocak 2022). Alındığı Tarih: 7 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^Betts, J. G. ve diğerleri. Anatomy And Physiology 2E, 9.4: Synovial Joints. Openstax, Rice University. (1 Ocak 2022). Alındığı Tarih: 7 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^Betts, J. G. ve diğerleri. Anatomy And Physiology 2E, 9.5: Types Of Body Movements. Openstax, Rice University. (1 Ocak 2022). Alındığı Tarih: 7 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^abBetts, J. G. ve diğerleri. Anatomy And Physiology 2E, 11.1: Interactions Of Skeletal Muscles, Their Fascicle Arrangement, And Their Lever Systems. Openstax, Rice University. (1 Ocak 2022). Alındığı Tarih: 7 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^abBetts, J. G. ve diğerleri. Anatomy And Physiology 2E, 14.3: Motor Responses. Openstax, Rice University. (1 Ocak 2022). Alındığı Tarih: 7 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^abUrone, P. P. ve Hinrichs, R.. College Physics 2E, 9.6: Forces And Torques In Muscles And Joints. Openstax, Rice University. (1 Ocak 2022). Alındığı Tarih: 7 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^KidsHealth Medical Experts. Your Bones. Nemours Kidshealth; Akron Children's. (1 Ocak 2023). Alındığı Tarih: 7 Kasım 2026. Alındığı Yer: Akron Children's | Arşiv Bağlantısı
- ^Kendall, C., Eriksen, A. M., Kontopoulos, I., Collins, M. J. ve Turner-Walker, G.. Diagenesis Of Archaeological Bone And Tooth. Palaeogeography, Palaeoclimatology, Palaeoecology, 491, 21–37. Doi:10.1016/J.palaeo.2017.11.041. (1 Ocak 2018). Alındığı Tarih: 7 Kasım 2026. Alındığı Yer: University of Cambridge Apollo, açık yazar nüshası | Arşiv Bağlantısı
- ^Huxley, A. F.. Andrew F. Huxley. Squire, L. R. (Ed.), The History Of Neuroscience In Autobiography, 4, 282–318. Society For Neuroscience. Doi:10.1016/S1874-6055(04)80020-3. (1 Ocak 2004). Alındığı Tarih: 7 Kasım 2026. Alındığı Yer: Society for Neuroscience, açık otobiyografi; araştırmacının birincil tanıklığı | Arşiv Bağlantısı
- ^Blemker, S. S., Brooks, S. V., Esser, K. A. ve Saul, K. R.. Fiber-Type Traps: Revisiting Common Misconceptions About Skeletal Muscle Fiber Types With Application To Motor Control, Biomechanics, Physiology, And Biology. Journal Of Applied Physiology, 136(1), 109–121. Doi:10.1152/Japplphysiol.00337.2023. (1 Ocak 2023). Alındığı Tarih: 7 Kasım 2026. Alındığı Yer: PubMed Central | Arşiv Bağlantısı
- ^abNational Institute of Arthritis and Musculoskeletal and Skin Diseases. Osteoarthritis. National Institutes Of Health. (1 Ocak 2023). Alındığı Tarih: 7 Kasım 2026. Alındığı Yer: NIAMS | Arşiv Bağlantısı
- ^abBetts, J. G. ve diğerleri. Anatomy And Physiology 2E, 10.4: Nervous System Control Of Muscle Tension. Openstax, Rice University. (1 Ocak 2022). Alındığı Tarih: 7 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
Evrim Ağacı'na her ay sadece 1 kahve ısmarlayarak destek olmak ister misin?
Şu iki siteden biriyle hemen destek olabilirsin:
kreosus.com/evrimagaci | patreon.com/evrimagaci
Çıktı Bilgisi: Bu sayfa, Evrim Ağacı yazdırma aracıyla 09.11.2026 18:43:31 tarihinde oluşturuldu. Evrim Ağacı'ndaki içerikleri birden fazla editör sürekli gözden geçiriyor, güncelliyor ve geliştiriyor. Bu çıktıdan sonraki güncellemeleri görmek ve içeriğin en güncel hâlini okumak için şu adrese git: evrimagaci.org/s/24125
İçerik Kullanım İzinleri: Evrim Ağacı'ndaki yazılı içerikler orijinallerine hiçbir şekilde dokunulmadığı sürece izin alınmaksızın paylaşılabilir, kopyalanabilir, yapıştırılabilir, çoğaltılabilir, basılabilir, dağıtılabilir, yayılabilir, alıntılanabilir. Ancak bu içeriklerin hiçbiri izin alınmaksızın değiştirilemez ve değiştirilmiş hâlleri Evrim Ağacı'na aitmiş gibi sunulamaz. Benzer şekilde, içeriklerin hiçbiri, söz konusu içeriğin açıkça belirtilmiş yazarlarından ve Evrim Ağacı'ndan başkasına aitmiş gibi sunulamaz.