Fermantasyon Nedir? Laktik Asit ve Etil Alkol Fermantasyonu Nasıl Gerçekleşir?
Kas Ağrısının Suçlusu Gerçekten Laktik Asit mi?


Kaynaklara dayanılarak hazırlandı. Her bilgi kaynağıyla doğrulandı ve editör incelemesinden geçti. Son inceleme:

Bu Makalede Neler Öğreneceksin?
Bu bölümü yapay zekâ hazırlar.- Fermantasyon, oksijen yokluğunda mikroorganizmalar tarafından şekerlerin alkol, asit ve gazlara dönüştürülmesiyle enerji elde edilen anaerobik bir metabolik süreçtir ve gıda üretiminde yaygın olarak kullanılır.
- Laktik asit ve alkolik fermantasyon gibi farklı türleri olan fermantasyon, kaslarda enerji üretimi, gıda korunması ve alkollü içeceklerin üretimi gibi biyolojik ve endüstriyel işlevlere sahiptir.
- İnsanların evrimsel geçmişinde fermante olmuş yiyeceklerin sindirimi ve tüketimi önemli rol oynamış, bu süreç besin güvenliği, probiyotik faydalar ve yeni besin kaynaklarına adaptasyon sağlamıştır.
Fermantasyon (İng: "fermentation"), hücrelerin glikoz gibi organik maddeleri parçalayarak ATP ürettiği ve bu sırada açığa çıkan elektronları yine organik bir bileşiğe aktardığı metabolik yoldur. Bu yolda moleküler oksijen son elektron alıcısı olarak görev almamaktadır. Fermantasyonun farklı türleri arasında iki biçim özellikle tanıdıktır. Laktik asit fermantasyonunda (İng: "lactic acid fermentation") glikoz laktik aside dönüşmektedir. Etil alkol fermantasyonunda (İng: "ethanol fermentation") ise ürünler etil alkol ve karbondioksittir. Birinci yol bazı streptokok ve birçok laktobasil bakterisinde, ikinci yol ise ekmek yapımında kullanılan mayada görülmektedir.
Fermantasyon mutfaktan spor salonuna kadar gündelik hayatın içindedir. Buna rağmen yanlış kanılar yaygındır. Örneğin bu yolun oksijen bulunan ortamlarda hiç işlemediği ya da egzersizden sonraki kas ağrısının laktik asitten kaynaklandığı sık duyulan iddialardır. Bu kanıların ortak noktası, fermantasyonu sadece oksijen eksikliğine verilen bir tepki olarak görmeleridir. Oysa iki iddia da fermantasyonun gerçek işleyişi görüldüğünde yerini daha doğru bir resme bırakmaktadır. Bu yazı önce bu işleyişi hücre düzeyinde açıklamakta, ardından fermantasyonun keşfini, besin üretimindeki yerini ve fermantasyonu ölçülebilir hale getiren deney düzeneklerini anlatmaktadır.
Fermantasyon Nedir?
Bir hücrenin yerine getirmesi gereken hareket ve makromolekül sentezi gibi birçok iş enerji gerektirmektedir. ATP'nin hidrolizi, hücrede enerji gerektiren bu tür tepkimeleri yürütmek için kullanılmaktadır.[2] Hidroliz, bir kimyasal bağın su molekülünün katılımıyla koparılmasıdır. Ancak hücre ATP'yi harcadıkça yerine yenisini koymak zorundadır. Aksi halde işler durmaktadır. Hücrenin ATP stokunu yenilemesinin yollarından biri de glikozu parçalamaktır. Fermantasyon, bu parçalanmanın oksijenli solunumdan farklı işleyen bir biçimidir ve ATP üretiminin (İng: "ATP synthesis") özel koşullarda da sürmesini sağlamaktadır.
Bu noktada glikoz parçalanırken molekülden ayrılan elektronların sonunda bir alıcıya teslim edilmesi gerekmektedir. Kimyada bir molekülün elektron kaybetmesine oksitlenme, elektron kazanmasına ise indirgenme denmektedir. Fermantasyonu öteki enerji yollarından ayıran özellik, bu son elektron ya da hidrojen alıcısının organik bir bileşik olmasıdır.[1] Oksitlenme yarım kalmaktadır. Yine de bu kısmi oksitlenme, mikroorganizmaların büyümesini destekleyecek kadar enerji sağlayabilmektedir. Bu yazıda fermantasyon sözcüğü önce bu dar biyokimyasal anlamıyla kullanılmakta, gıda üretimindeki daha geniş kullanımı ise ayrıca ele alınmaktadır.
Fermantasyon tepkimeleri hem prokaryot hem de ökaryot hücrelerin sitoplazmasında gerçekleşmektedir. Sitoplazma, hücre zarının içini dolduran sıvı ortamdır. Yani ayrı bir zarlı bölmeye gerek yoktur. Fermantasyonun asıl ayırt edici yönü ise hücrenin elektron taşıma sistemi ya da kısaca ETS (İng: "electron transport chain") olmadan işini sürdürebilmesidir. ETS, solunum yapan hücrelerde elektronları bir zar boyunca aktaran tepkime düzeneğidir. Bu fark küçük bir ayrıntı gibi görünse de hem enerji verimini hem de fermantasyonun hangi koşullarda işe yaradığını belirlemektedir.
Glikoliz Evresinde Koenzim Döngüsü
Glikoliz (İng: "glycolysis"), glikozun parçalanmasının ilk evresidir ve hemen hemen bütün hücrelerde ortak olan bir yoldur. Bu yol doğrudan oksijen gerektirmemektedir. Ökaryot hücrelerde sitoplazmada gerçekleşen glikolizin karbonlu son ürünü piruvattır (İng: "pyruvate"). Bir glikoz molekülünden 2 piruvat molekülü oluşmaktadır ve glikoz altı karbonlu bir şeker olduğu için bu bölünme, molekülün iki eşit parçaya ayrılması anlamına gelmektedir. Glikolizin bu kadar yaygın olması, enerji metabolizmasının en temel basamaklarından birini oluşturduğunu düşündürmektedir.
Glikoliz tek bir tepkime değildir. Bir tepkimeler dizisidir. Metabolik bir yolun her dönüşümü genellikle bir enzim tarafından katalizlenmektedir. Enzimler bu dönüşümlerde katalizör işlevi gören biyolojik moleküllerdir. Katalizör ise bir tepkimeyi hızlandıran ama tepkimenin sonunda kendisi değişmeden kalan maddedir. Yolun son ürününden önce oluşan moleküller ara ürün olarak adlandırılmaktadır. Ayrıca yolun hızı da denetim altındadır. Hücrede ATP düzeyi yükseldiğinde fosfofruktokinaz adlı enzim baskılanmakta ve glikoz yıkım hızı yavaşlamaktadır. Böylece hücre, yeterince enerjisi varken glikozu gereksiz yere harcamaktan kaçınmaktadır.
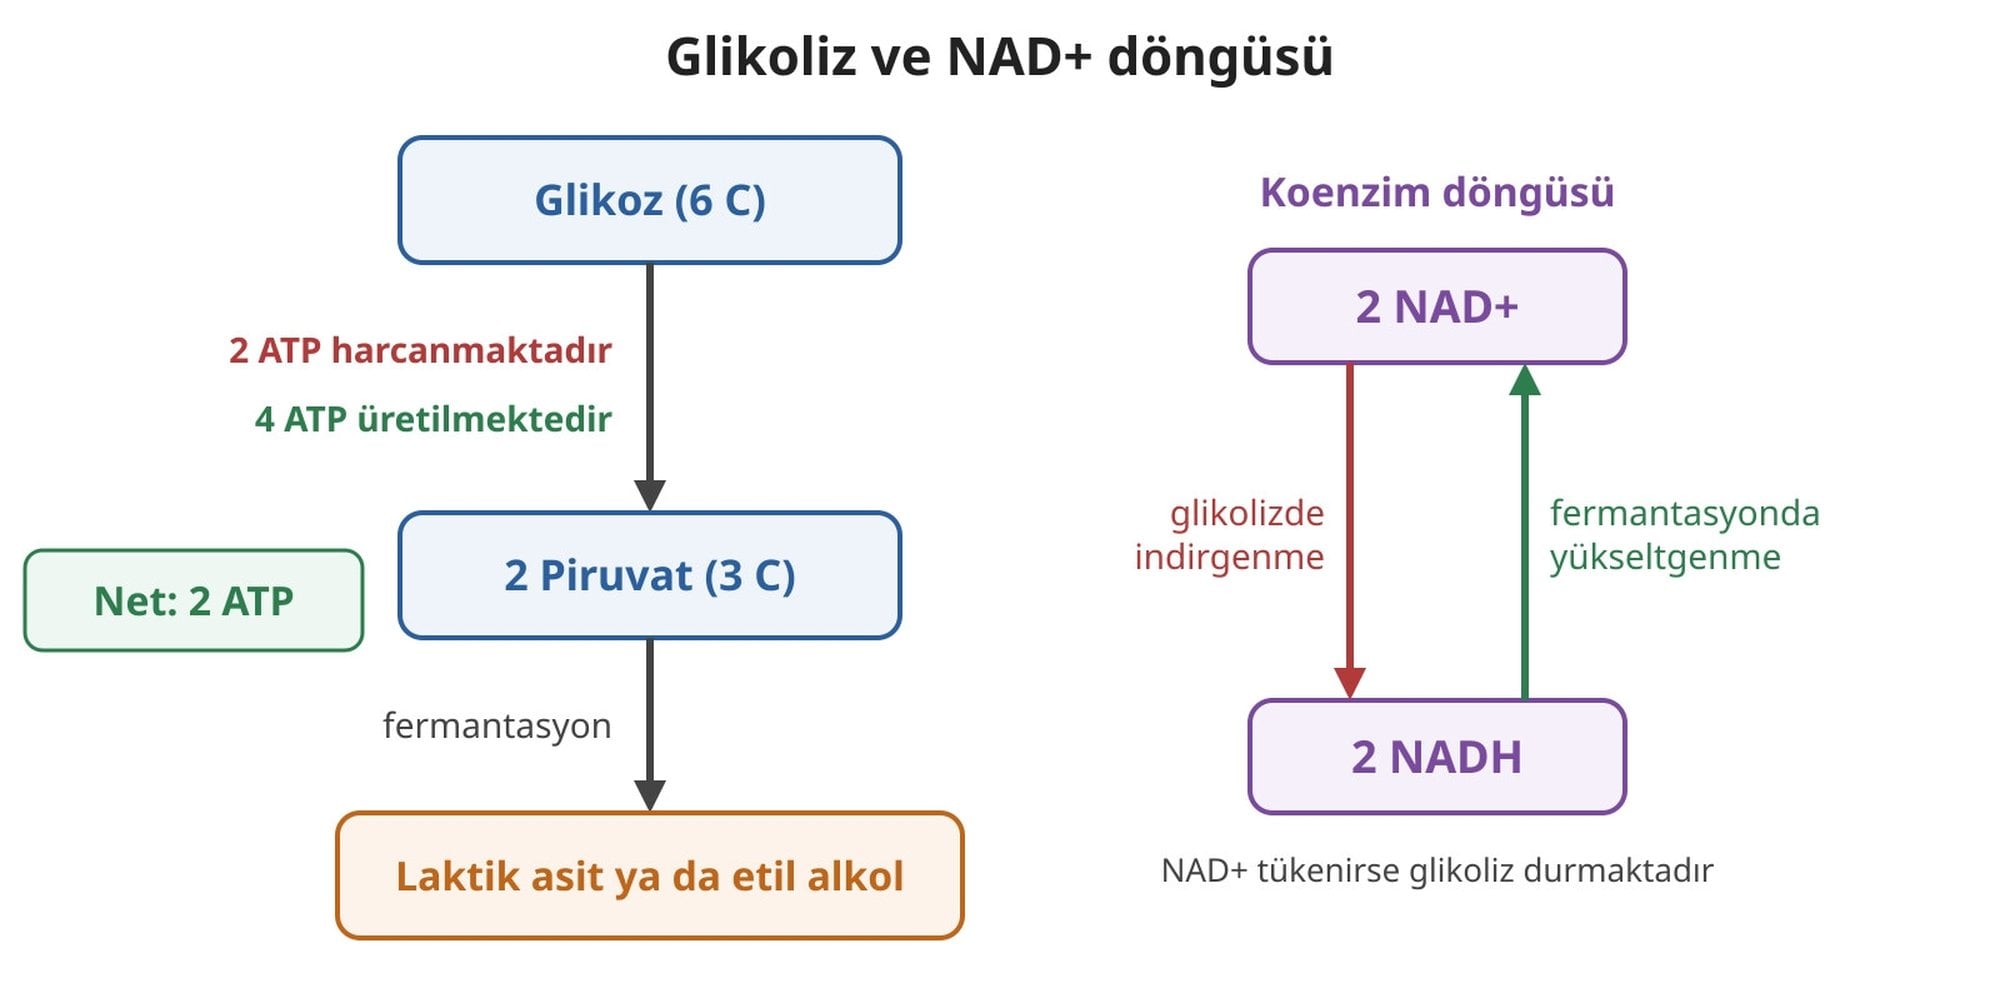
Glikolizde ATP, substrat düzeyinde fosforilasyon adı verilen yolla üretilmektedir. Fosforilasyon, bir moleküle fosfat grubu eklenmesidir. Bu yolda fosfat grubu taşıyan uygun bir karbon bileşiği, fosfat grubunu doğrudan ADP'ye aktarmakta ve ATP oluşmaktadır. Hücreler ETS'den yoksun olduğunda ya da uygun bir son elektron alıcısı bulunmadığında ATP'yi sadece bu yolla yapabilmektedir. Ancak glikoliz başlarken hücre önce kendi ATP'sinden harcamak zorundadır. Bu bir yatırımdır. Bu nedenle yolun gerçek kazancını bulmak için üretilen ve harcanan ATP'yi birlikte hesaba katmak gerekmektedir.
Çözümlü örnek 1: Bir glikozun glikolizinden net kaç ATP kazanılmaktadır?
Verilenler: Bir glikoz molekülünün glikolizi sırasında toplam 4 ATP sentezlenmekte, yolun başındaki tepkimeleri başlatmak için ise 2 ATP harcanmaktadır.[2]
İstenen: Glikoz başına net ATP kazancı.
1. adım: Önce yol boyunca sentezlenen ATP'lerin toplamı yazılmaktadır:
2. adım: Ardından yolu başlatmak için hücrenin kendi stokundan harcadığı ATP yazılmaktadır:
3. adım: Net kazanç, üretilen miktardan harcanan miktarın çıkarılmasıyla bulunmaktadır:
Sonuç: Bir glikozun glikolizinden net 2 ATP kazanılmaktadır. Sık yapılan hata, toplam 4 ATP'yi kazanç olarak saymak ve başlangıçta harcanan 2 ATP'yi gözden kaçırmaktır.
ATP bilançosunun yanında glikolizin bir de koenzim bilançosu vardır. Koenzimler, enzimlerin işleyişine yardım eden küçük yardımcı moleküllerdir. Yol sırasında NAD+ koenziminin iki molekülü NADH'ye indirgenmektedir. Bu basamakta NAD+, glikolizin ara ürünlerinden gliseraldehit-3-fosfattan elektron kabul ederek yükseltgen madde görevi görmektedir. Yani NAD+ elektronu alan, gliseraldehit-3-fosfat ise elektronu veren taraftır. Glikolizin sürmesi için ise hücrenin yüksek bir NAD+/NADH oranını koruması ve bunun için NADH'yi yeniden NAD+'ya çevirecek elektron alıcıları bulması gerekmektedir.[3]
Fermantasyonun anlamı buradadır. Her glikoz molekülü, hücredeki NAD+ stokundan iki molekül tüketmektedir. NADH yeniden NAD+'ya çevrilmezse bu stok bir süre sonra tükenmekte ve glikoliz durma noktasına gelmektedir. Glikolizi izleyen fermantasyon tepkimeleri ise ek ATP üretmemektedir. Öyleyse hücre neden bu tepkimelere ihtiyaç duymaktadır? Bu tepkimeler glikolizde harcanan NAD+'yı geri dönüştürmekte ve böylece glikolizin dolaylı olarak sürmesine olanak vermektedir. Dolayısıyla fermantasyonun asıl işi enerji üretmek değil, enerji üreten basamağın tıkanmasını önlemektir.
Solunum Yollarıyla Temel Farkları
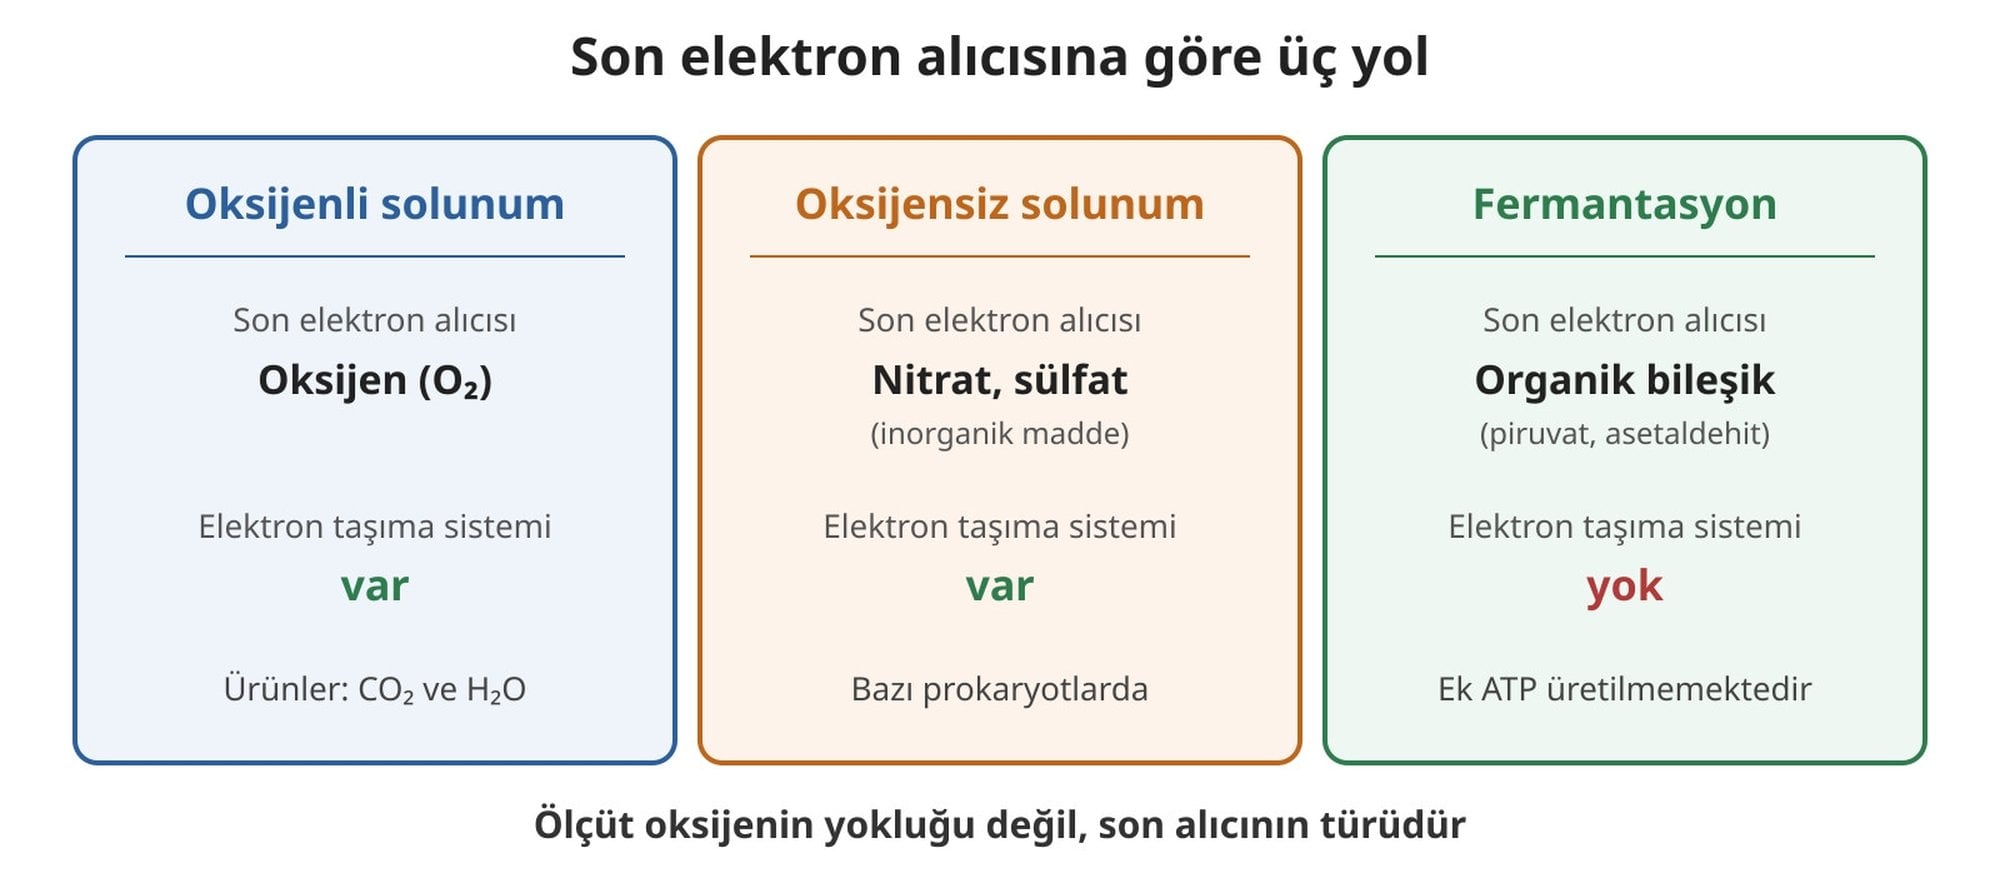
Fermantasyon ile oksijenli solunum (İng: "aerobic respiration") aynı başlangıç noktasını, glikolizi paylaşmaktadır. İki yolun ayrıldığı yer, NADH'nin elektronlarını nereye bıraktığıdır. Solunum yapan hücrelerde NADH elektronlarını ETS'ye vermekte ve böylece NAD+'ya geri dönmektedir. Oksijenli solunumda bu elektronların son alıcısı ise moleküler oksijendir. Fermantasyon ise NAD+'yı ETS olmadan yenilemektedir.[4] Üstelik bu fark, iki yolun enerji verimi arasındaki büyük uçurumun da kaynağıdır.
Oksijenli solunum glikolizle bitmemekte, ayrıca Krebs döngüsünü (İng: "citric acid cycle") ve ETS'yi de içermektedir. Glikoz bu yolda tamamen oksitlenmektedir. Tam oksidatif yıkımın son ürünleri karbondioksit (CO₂) ile su (H₂O) molekülleridir. Bu ek basamaklar sayesinde glikoz başına çok daha fazla ATP üretilmektedir. Fakat bu sayıyı bütün hücreler için değişmeyen tek bir rakam olarak vermek doğru değildir. Verim, ETS'deki proton pompalarının ve ATP sentaz enziminin verimliliğine bağlı olarak değişmektedir.
Bu basamakların yeri de değişmektedir. Ökaryot hücrelerde ETS ve ATP sentaz mitokondrinin iç zarında yer almaktadır. Mitokondri, ökaryot hücrelerde enerji dönüşümünde görev alan, çift zarlı bir organeldir. Prokaryotlarda ise böyle bir organel bulunmadığı için ETS'ye bağlı ATP üretimini sağlayan kemiozmoz ve oksidatif fosforilasyon plazma zarında gerçekleşmektedir. Kemiozmoz, zarın iki yanı arasında oluşan proton farkının ATP sentazı çalıştırmasıdır. Öte yandan fermantasyon için böyle bir zara gerek yoktur ve fermantasyon tepkimeleri her iki hücre türünde de sitoplazmada gerçekleşmektedir.
Burada bir karışıklık vardır. Oksijensiz gerçekleşen her enerji metabolizması fermantasyon sayılmamaktadır. Fermantasyonu belirleyen ölçüt oksijenin yokluğu değil, son elektron alıcısının organik bir bileşik olmasıdır. Örneğin bazı prokaryotlar, nitrat ya da sülfat gibi oksijen dışındaki son elektron alıcılarını kullanarak oksijensiz solunum yapabilmektedir.[4] Bu canlılarda zincirin sonundaki alıcı oksijen değil, inorganik bir maddedir. Dolayısıyla oksijensiz solunum, son alıcısı organik bir bileşik olmadığı için fermantasyondan ayrılmaktadır.
Fermantasyonun Keşif Tarihi
Fermantasyon sözcüğü, Latincede "kaynamak" anlamına gelen "fervere" sözcüğünden türemiştir.[6] Bu ad, ezilmiş üzümlerin bekletildiği büyük kaplarda karışımın kaynıyormuş gibi kabarcık çıkarması gözlemine dayanmakta, bugün ise bu kabarcıkların etil alkol fermantasyonunda açığa çıkan karbondioksit olduğu bilinmektedir. Süreç böylece adını, nedeni bilinmeden çok önce, gözle görülen bir belirtisinden almıştır.
Köpüren karışımın içinde neyin bulunduğu sorusu ise 19. yüzyılda cevap bulmaya başlamıştır. 1830'larda üç araştırmacı, Paris'te Cagniard de la Tour, Berlin'de Theodor Schwann ve Nordhausen'da Friedrich Kützing, birbirine çok yakın zamanlarda mayanın (İng: "yeast") canlı hücrelerden oluştuğunu bildirmiştir.[8] Birbirinden ayrı çalışan üç araştırmacının aynı sonuca varması, bu bulguyu tek bir gözlemden çok daha sağlam bir zemine oturtmuştur. Maya artık bir canlıydı.
Canlı Maya Hücrelerinden Özgül Mikroorganizmalara
1856'da Bigo adlı bir üretici, şeker pancarından alkol üreten işletmesinde yaşadığı bir sorun nedeniyle Pasteur'den yardım istemiştir. Sorunlu kaplarda beklenen alkollü sıvı yerine ekşimiş bir madde oluşmaktaydı. Ürün bozulmuştu. Bunun üzerine Pasteur bu ekşimiş maddenin kimyasal içeriğini incelemiş ve içinde alkol yerine önemli miktarda laktik asit bulmuştur.[6] Yani aynı hammaddeden yola çıkan kaplar iki farklı son ürün vermişti ve bu fark, kaplarda farklı bir sürecin işlediğini düşündürmektedir.
Asıl ipucunu mikroskop vermiştir. Pasteur, etil alkol fermantasyonunun gerçekleştiği kaplardan alınan örneklerde çok sayıda maya görmüştür. Laktik asit içeren bozuk kaplarda ise gördüğü şey, "mayadan çok daha küçük hücreler" olmuştur. Böylece iki farklı son ürün, mikroskop altında iki farklı hücre topluluğuyla eşleşmiştir. Bu eşleşme tek başına küçük hücrelerin laktik asit ürettiğini kanıtlamamaktadır. Yine de farklı fermantasyon türlerinin farklı mikroorganizmalarla ilişkili olabileceğine dair güçlü bir ipucu sunmaktadır.
Ancak fermantasyonu yürüten canlının tanınması, canlının bunu nasıl başardığını henüz açıklamıyordu. 1858'de Moritz Traube, mikroorganizmaların içinde fermantasyona yol açan belirli bir kimyasal madde bulunduğunu öne sürmüştür.[8] Bu fikre göre fermantasyonun asıl yürütücüsü hücrenin bütünü değil, hücrenin taşıdığı bir maddeydi. Traube'nin öngörüsü yapıldığında, bu maddeyi canlı hücreden ayırmayı sağlayan bir yöntem henüz bulunmamaktaydı. Bu durumda yanıt bekleyen soru, hücrenin içindeki bu maddenin hücre dışında da çalışıp çalışamayacağıydı.
Buchner Deneylerinde Hücresiz Enzim Etkinliği
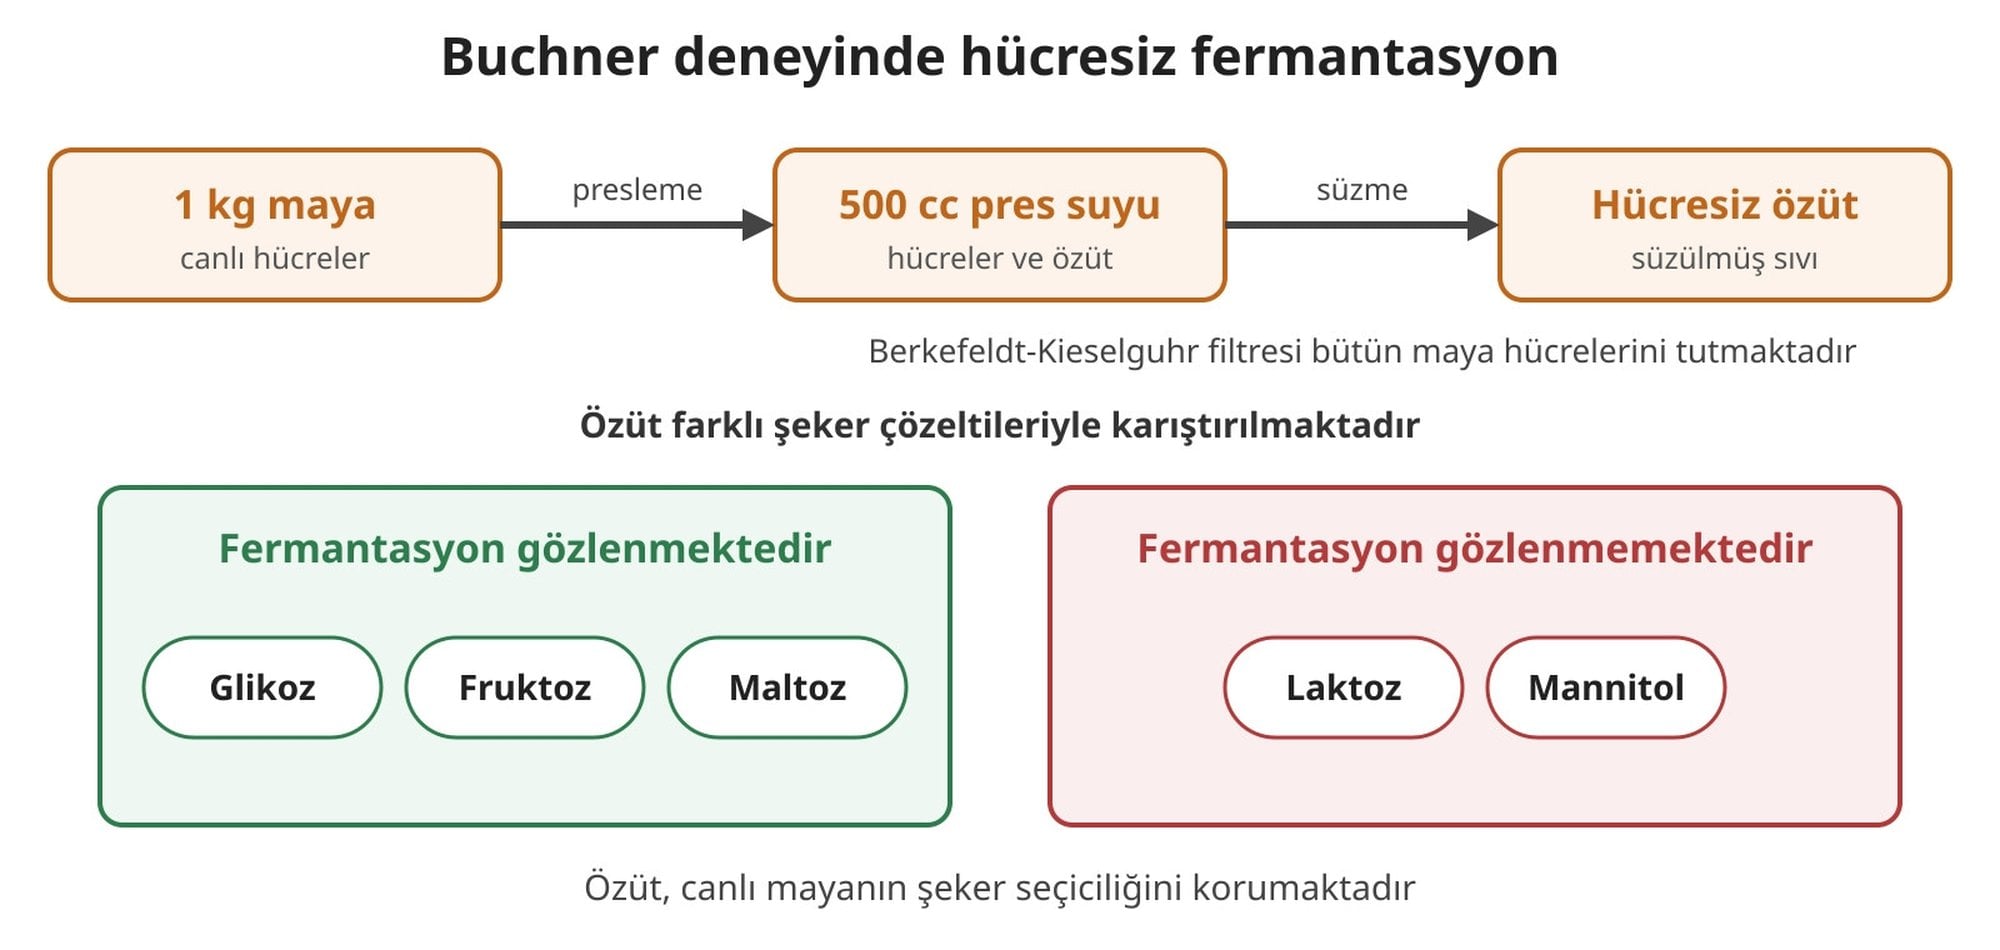
Eduard Buchner 1897'de yayımladığı araştırmada, fermantasyon etkinliğini canlı maya hücrelerinden ayırmayı sağlayan bir yöntem bildirmiştir. Buchner mayayı presleyerek bir özüt elde etmiş ve 1 kg mayadan 500 cc pres suyu çıkmıştır. Belirleyici adım ise bu özütün steril bir Berkefeldt-Kieselguhr filtresinden geçirilmesiydi. Bu filtrenin bütün maya hücrelerini tuttuğundan kuşku yoktur. Buna rağmen süzülmüş özütün fermantasyon etkinliği ortadan kalkmamıştır. Dolayısıyla fermantasyonu yürüten etken, canlı hücrenin kendisi değil, hücreden ayrılıp sıvıya geçebilen bir madde olmalıydı.
Özüt her şekeri aynı biçimde işlememiştir. Sözgelimi glikoz, fruktoz ve maltozla karıştırıldığında fermantasyon gözlenmiştir. Doymuş laktoz ya da mannitol çözeltileriyle ise hiç fermantasyon görülmemiştir ve bu sonuç, söz konusu iki maddenin canlı bira mayası hücreleri tarafından da fermente edilmemesiyle uyumludur. Başka bir deyişle hücresiz özüt, canlı mayanın şeker seçiciliğini de korumaktaydı.
Tarihte zimaz adıyla anılan bu etkinlik, bugün tek bir enzim değil, bir enzimler topluluğu olarak görülmektedir. Buchner bu buluşları nedeniyle 1907'de Nobel Kimya Ödülü'nü almıştır.
Buchner'in deneylerinde dikkat isteyen bir ölçüm ayrıntısı da vardı. Deneyin sonunda ölçülen alkolün bir kısmı fermantasyondan değil, karışımda baştan beri bulunan alkolden gelmekteydi. Bu başlangıç alkolü karışıma mayayla birlikte taşınmıştı. Bu yüzden fermantasyonla oluşan alkolü bulmak için ölçülen toplamdan başlangıçtaki miktarı çıkarmak gerekiyordu. Bu basit çıkarma, sonucu abartmamak için atlanmaması gereken bir düzeltmeydi.
Çözümlü örnek 2: Buchner'in 2 numaralı deneyinde fermantasyonla ne kadar alkol oluşmuştur?
Verilenler: 2 numaralı deneyin sonunda karışımda 1,5 g alkol ölçülmüştür. Bu miktarın en çok 0,3 g'ı karışıma mayayla birlikte taşınmıştır.[7]
İstenen: Fermantasyonla oluşan alkolün kütlesi, yani .
1. adım: Ölçülen değer, taşınan ve yeni oluşan alkolün toplamı olduğu için önce bu toplam yazılmaktadır:
2. adım: Mayayla gelen alkol fermantasyonun ürünü olmadığı için ayrı bir terim olarak yazılmaktadır:
3. adım: Fermantasyonla oluşan alkol, ölçülen toplamdan taşınan miktarın çıkarılmasıyla bulunmaktadır:
Sonuç: 2 numaralı deneyde fermantasyonla 1,2 g alkol oluşmuştur. Taşınan miktar "en çok" 0,3 g olarak verildiği için bu değer, fermantasyonla oluşan alkol için en düşük tahmindir.
Çözümlü örnek 3: 3 numaralı deneyde fermantasyonla ne kadar alkol oluşmuştur?
Verilenler: 3 numaralı deneyin sonunda karışımda 3,3 g etil alkol ölçülmüştür. Bu deneyde karışımın başlangıçta içerdiği alkol 1,2 g'dır.[7]
İstenen: Fermantasyonla oluşan alkolün kütlesi, yani .
1. adım: Önce deneyin sonunda ölçülen toplam alkol yazılmaktadır:
2. adım: Başlangıç alkolü her deneyde ayrı belirlendiği için 2 numaralı deneydeki 0,3 g yerine bu deneye ait değer yazılmaktadır:
3. adım: Fermantasyonla oluşan alkol, ölçülen toplamdan başlangıç alkolünün çıkarılmasıyla bulunmaktadır:
Sonuç: 3 numaralı deneyde fermantasyonla 2,1 g alkol oluşmuştur. Burada 1,2 g değeri, rastlantı eseri hem 2 numaralı deneyin sonucunda hem de 3 numaralı deneyin başlangıcında görülmektedir. İki sayıyı karıştırıp bu deneyde de 0,3 g çıkarmak, sonucu 3,0 g gibi hatalı bir değere götürmektedir.
Laktik Asit Fermantasyonu
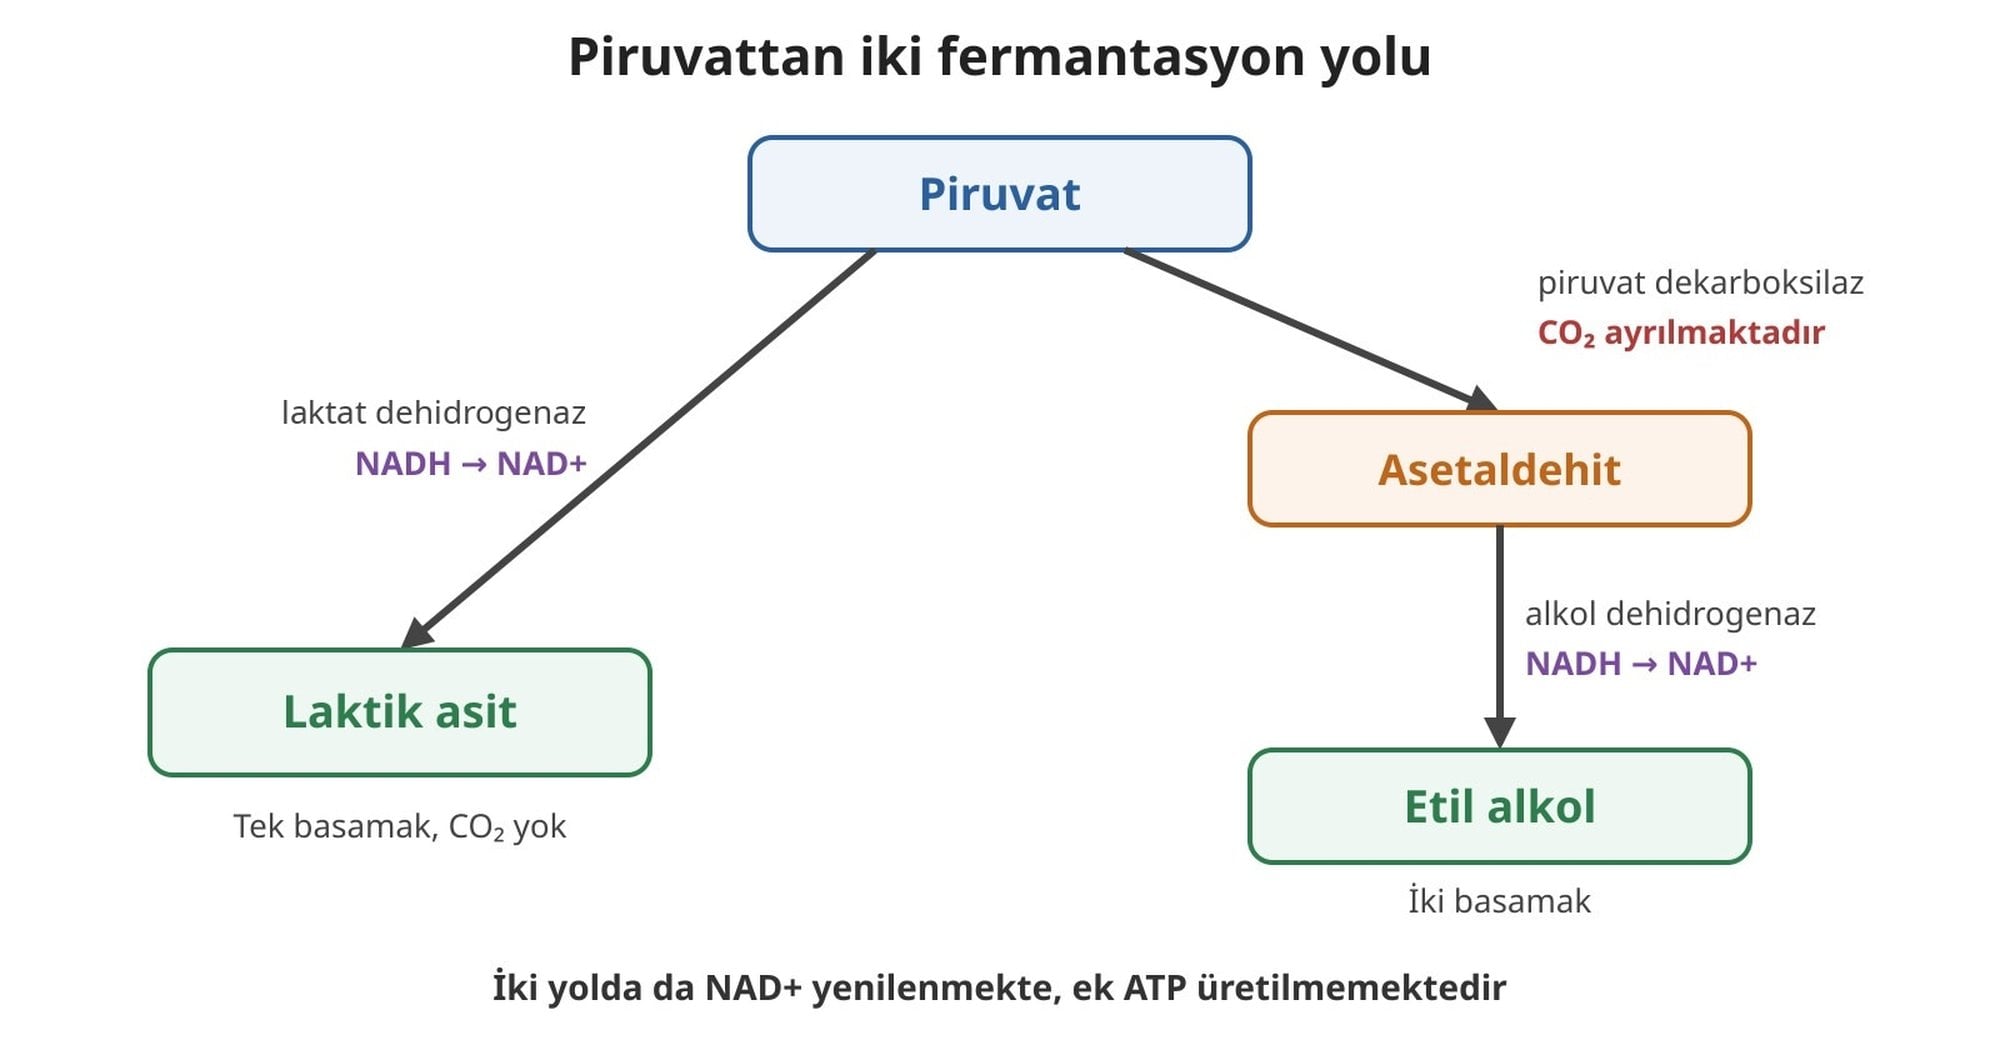
Laktik asit fermantasyonu, piruvatın tek basamakta laktik aside indirgendiği fermantasyon türüdür. Bu tepkimede piruvat, NADH'den bir hidrit iyonu (H⁻) almaktadır. Hidrit iyonu, iki elektron taşıyan bir hidrojen iyonudur. Böylece piruvat laktik aside dönüşürken NADH yükseltgenmekte ve yeniden NAD+ oluşmaktadır. Tepkimeyi laktat dehidrogenaz enzimi katalizlemektedir ve bilançosu şu şekildedir:[5]
Denklemin sol tarafındaki NADH, glikoliz sırasında oluşan NADH'dir. Bir glikozdan çıkan 2 piruvat molekülü bu tepkimeye girdiğinde, glikolizde oluşan 2 NADH molekülü de NAD+'ya geri dönmektedir. Yani glikolizin ürettiği NADH bu tepkimede tüketilmekte, açığa çıkan NAD+ ise yeniden glikolize dönmektedir. Döngü böylece kapanmaktadır. Hücre bu sayede glikolizi yeni glikoz molekülleriyle sürdürebilmektedir. Tepkimenin ürünleri arasında karbondioksit bulunmaması ise bu yolu etil alkol fermantasyonundan ayıran belirgin bir özelliktir.
Mikroorganizmalarda Farklı Laktik Asit Yolları
Laktik asit fermantasyonu bazı streptokoklarda ve birçok laktobasilde görülmektedir. Ancak laktik asit üreten mikroorganizmaların hepsi glikozu aynı son ürünlere dönüştürmemektedir. Bu mikroorganizmalar, glikozdan oluşturdukları son ürünlerin çeşidine göre iki gruba ayrılmaktadır. Birinci gruptaki homofermentatif mikroorganizmalar, glikoz fermantasyonundan sadece laktik asit üretmektedir.[1] Homolaktik fermantasyon adı verilen bu yolun basitleştirilmiş karbon bilançosunda 1 mol glikozdan 2 mol laktik asit oluşmaktadır. Mol, madde miktarının birimidir. Burada bu birim, her glikoz molekülüne karşılık iki laktik asit molekülü oluştuğunu anlatmaktadır.
İkinci gruptaki heterofermentatif mikroorganizmalar ise glikozdan asetik asit, etil alkol, formik asit ve karbondioksit gibi birden çok son ürün oluşturmaktadır. Heterolaktik fermantasyonda bir glikozdan 1 mol laktik asit, 1 mol etil alkol ve 1 mol karbondioksit oluşabilmektedir. Bu yolda sadece 1 ATP üretilmektedir.[5] Bu grupta glikozun karbon atomları tek bir ürüne değil, birkaç farklı molekül arasında paylaştırılmaktadır.
Homolaktik yolun enerji kazancı glikolizinkiyle aynıdır. Laktik asidin oluştuğu basamak ek ATP üretmemekte ve glikolizin net kazancını olduğu gibi bırakmaktadır. Dolayısıyla heterolaktik yolu kullanan bir bakteri, aynı miktarda glikozdan homolaktik yoldakinin yarısı kadar ATP elde etmektedir. Öte yandan heterolaktik yolun ürettiği karbondioksit, önemli bir pratik sonuç doğurmaktadır. Şekerli bir ortamda gaz çıkışı görmek, tek başına ortamda maya bulunduğu anlamına gelmemektedir. Heterofermentatif bakteriler de bu yolla gaz çıkarabilmektedir.
Kas Fizyolojisinde Laktik Asit Gerçekleri
Laktik asit fermantasyonu mikroorganizmalarla sınırlı kalmamaktadır. Yoğun efor sırasında kas dokusu, NADH'yi yükseltgeyip NAD+'yı yenileyecek hızda oksijen sağlayamadığında kaslarda da laktik asit oluşabilmektedir. Bu durumda piruvatın laktik aside indirgenmesi, kas hücresinde glikolizin sürmesine yardım etmekte ve kas hücresi böylece kısa süreli de olsa enerji üretmeyi sürdürebilmektedir. Bu gözlemden yola çıkan yaygın bir kanıya göre laktik asit, oksijensiz kalan kasta biriken bir atıktır ve egzersizden sonraki ağrıya yol açmaktadır. Gözlemin kendisi doğrudur. Fakat kanının üç parçası da güncel fizyolojik bulgularla uyuşmamaktadır.
İlk sorun oksijen koşuluyla ilgilidir. Laktik asit sadece oksijen yokluğunda oluşmamakta, yemekten sonraki dinlenme sırasında ve egzersizde, tam oksijenli koşullarda da üretilebilmektedir.[9] Üstelik insan kasları dinlenirken ve çalışırken aynı anda hem laktik asit üretmekte hem de tüketmektedir. Yani kastaki laktik asit miktarı üretim ile tüketim arasındaki dengeye bağlıdır ve tek başına oksijen yetersizliğinin göstergesi sayılmamaktadır.
Laktik asidi bir atık olarak görmek de eksik bir resimdir. Aslında laktik asit tercih edilen bir enerji substratıdır ve egzersiz sırasında kalp için önemli bir yakıttır. Karaciğer ve böbrekler ise glukoneogenez denen yolla laktik asitten yeniden glikoz oluşturmakta ve kandaki şeker düzeyinin korunmasına katkı sağlamaktadır. Dahası laktik asit, hücreler arasında sinyal taşıyan bir molekül olarak da işlev görmektedir. Araştırmacılar bu yüzden laktik asidi, kasın ve egzersizin ürettiği sinyal molekülleri anlamında miyokin ve egzerkin olarak da ele almaktadır. Bu bulgular, laktik asidin sadece bir atık olmadığını, aynı zamanda bir yakıt ve sinyal molekülü olduğunu göstermektedir.
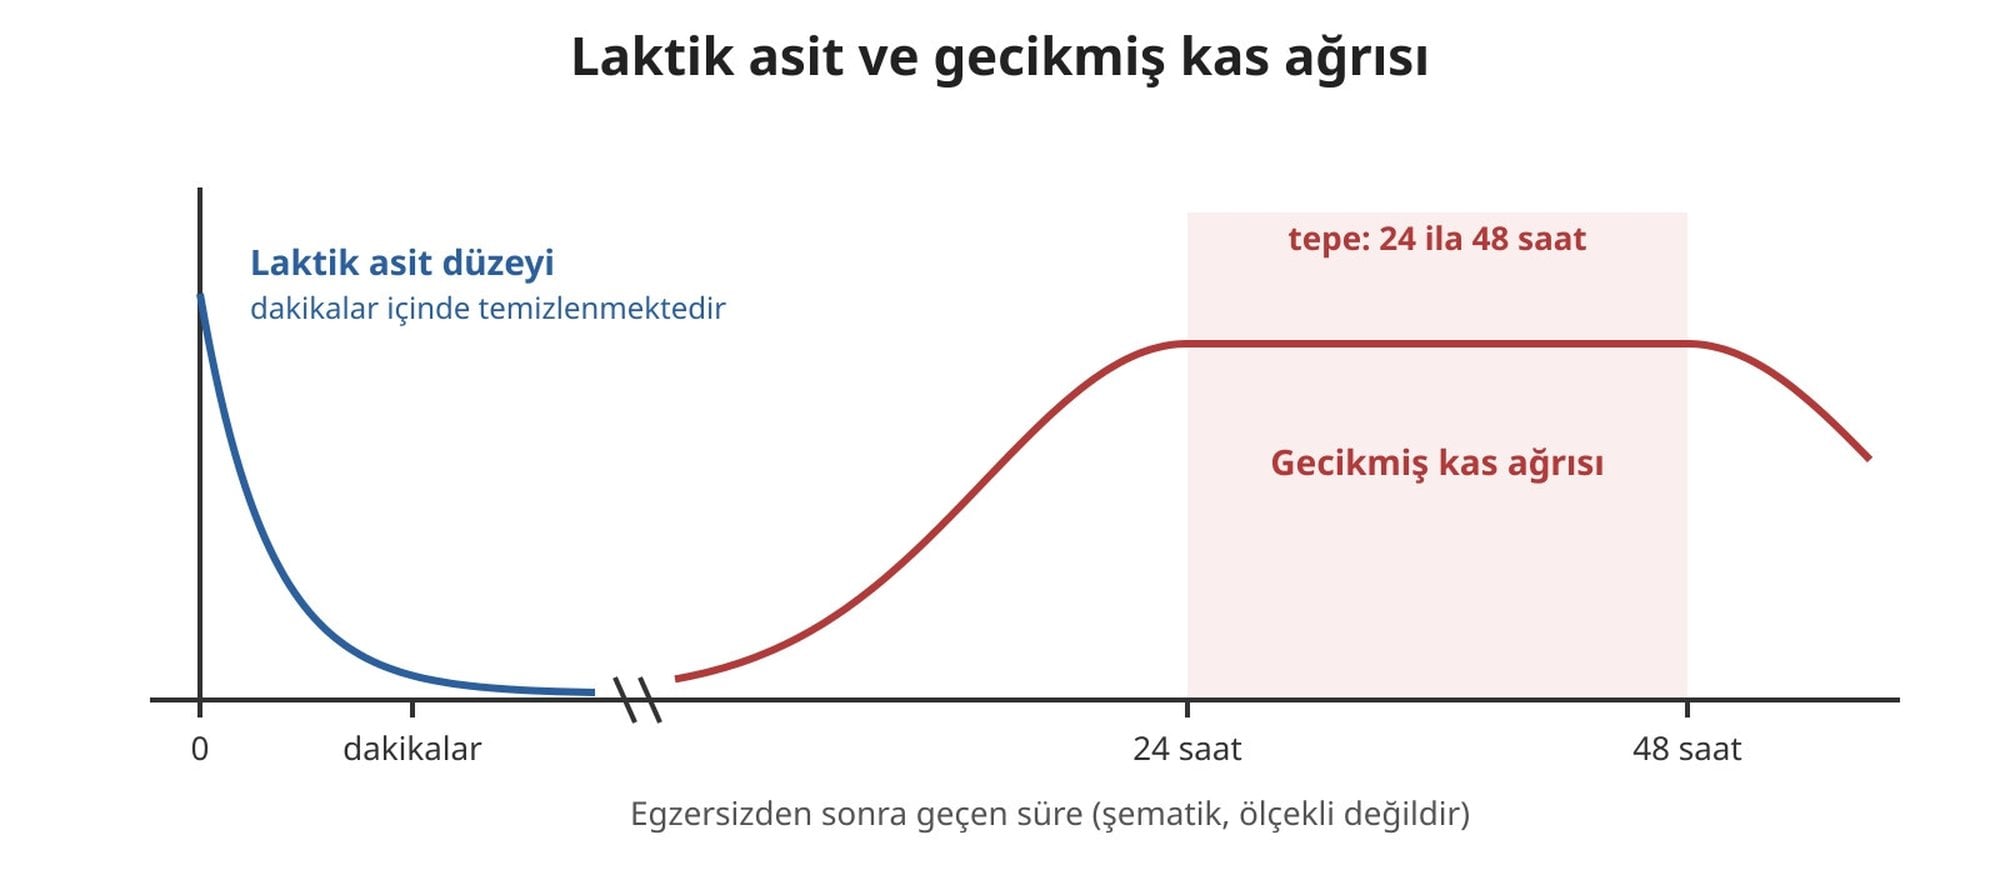
Ağrı açıklaması ise zamanlamayla uyuşmamaktadır. Laktik asit egzersizden sonra genellikle dakikalar içinde temizlenmektedir. Oysa gecikmiş kas ağrısı ağır egzersizden 24 ila 48 saat sonra, yani laktik asit çoktan temizlendikten sonra tepe yapmaktadır.[9] Bir maddenin ortadan kalktıktan bir ya da iki gün sonra en şiddetli etkisini göstermesi beklenen bir durum değildir. Dolayısıyla bu ağrının nedenini kasta kalmış laktik asitte aramak, eldeki zaman çizelgesiyle bağdaşmamaktadır.
Etil Alkol Fermantasyonu
Etil alkol fermantasyonu, piruvatın iki basamakta etil alkole dönüştürüldüğü fermantasyon türüdür. İlk basamakta piruvat dekarboksilaz enzimi piruvattan bir karbondioksit (CO₂) molekülü ayırmaktadır. Dekarboksilasyon, bir molekülden karbondioksit ayrılması anlamına gelmektedir. Bu dekarboksilasyonla iki karbonlu bir bileşik olan asetaldehit (İng: "acetaldehyde") oluşmaktadır. İkinci basamakta alkol dehidrogenaz enzimi, NADH'yi kullanarak asetaldehiti etil alkole indirgemektedir. Koenzim de geri kazanılmaktadır.
İki yolun NAD+ bakımından sonucu aynıdır. Her ikisinde de glikolizde oluşan NADH yeniden NAD+'ya çevrilmekte, fermantasyon basamakları ise ek ATP üretmemektedir. Fark, etil alkol fermantasyonunda araya bir ara ürünün girmesi ve bir gazın açığa çıkmasıdır. Ara basamaklar bir kenara bırakıldığında, glikozdan başlayan etil alkol fermantasyonunun madde bilançosu şu denklemle gösterilmektedir:[13]
Denklemin sol tarafında bir glikoz, sağ tarafında ise iki etil alkol ve iki karbondioksit molekülü bulunmaktadır. Glikozun altı karbon atomundan dördü iki etil alkol molekülüne, ikisi ise iki karbondioksit molekülüne geçmektedir. Bu denklem bir ürün bilançosudur. ATP'yi, NAD+ ile NADH arasındaki gidip gelişi ya da asetaldehiti göstermemektedir. Dolayısıyla denklemde koenzimlerin görünmemesi, tepkimeye hiç katılmadıkları anlamına gelmemektedir. Aslında NAD+ ve NADH döngünün sonunda başladıkları yere döndükleri için bilançoda birbirini götürmektedir.
Mikroorganizmalarda Etil Alkol Üretim Yolları
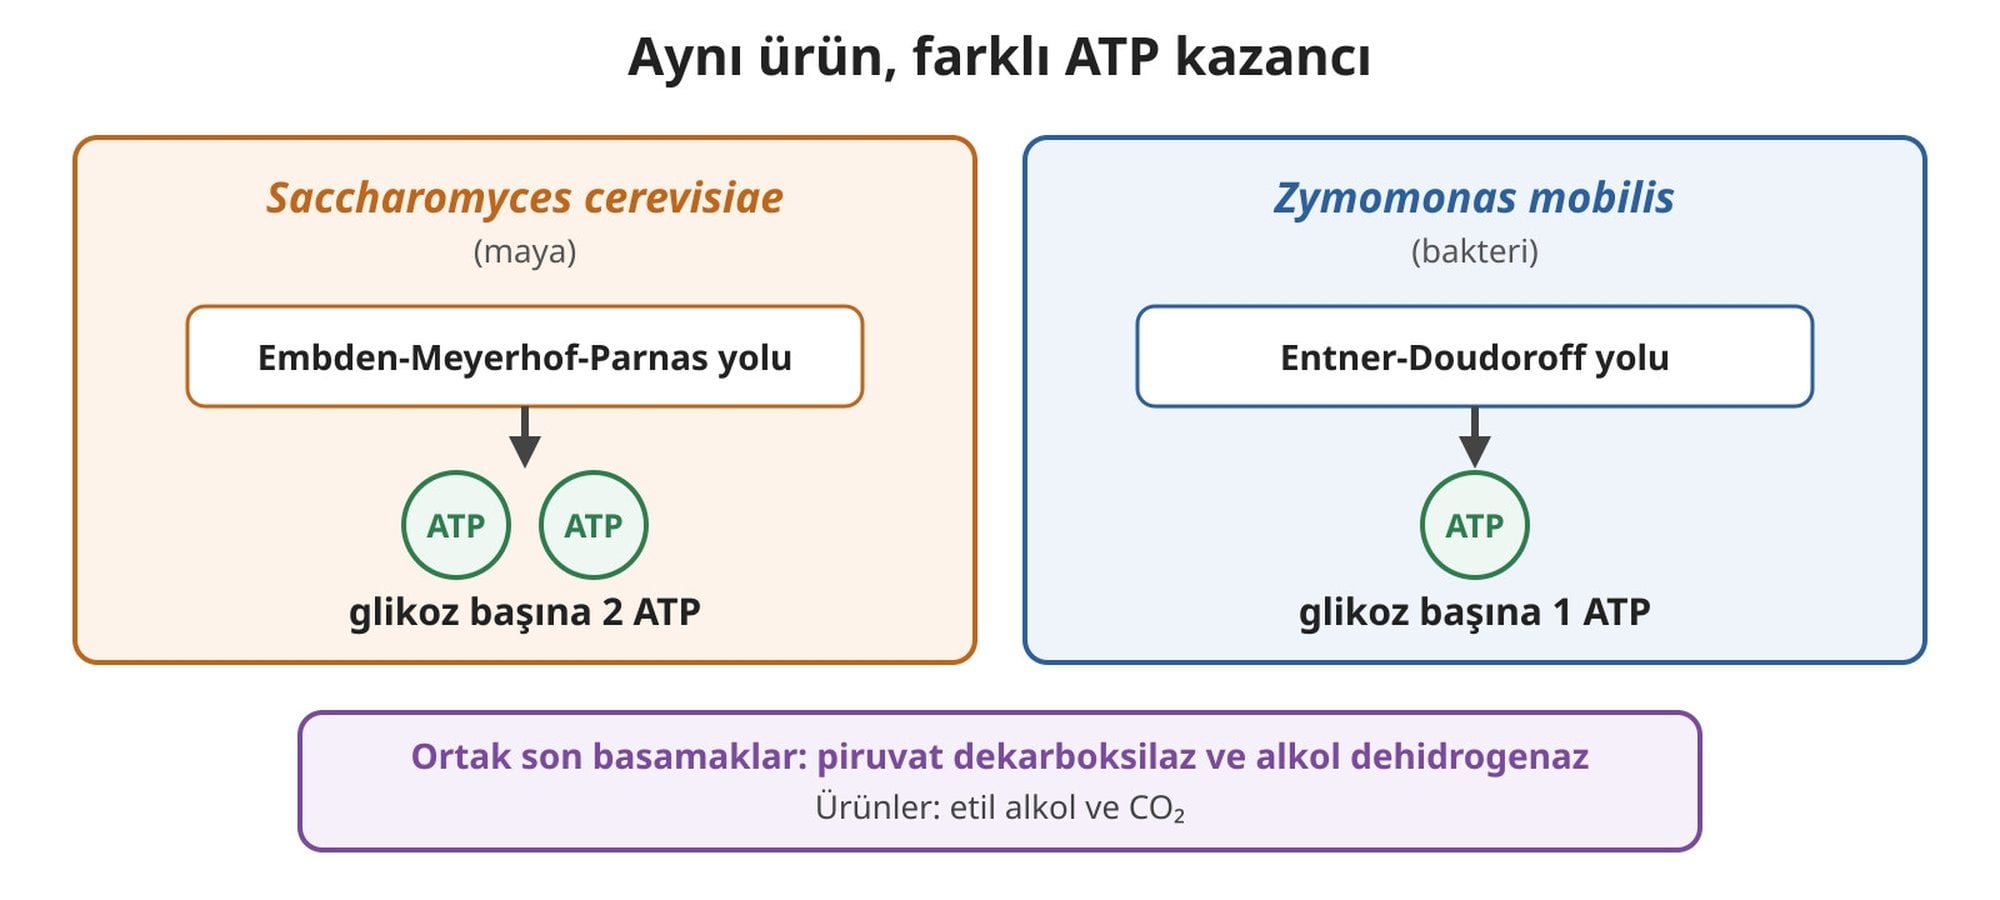
Etil alkol fermantasyonu çeşitli bakteri türlerinde ve birçok maya türünde görülmektedir. Mayalar tek hücreli mantarlardır. Ekmek yapımında kullanılan maya Saccharomyces cerevisiae türüdür. Bu maya ile bir bakteri olan Zymomonas mobilis, etil alkol üretiminde aynı iki temel enzimi, piruvat dekarboksilazı ve alkol dehidrogenazı kullanmaktadır. Fakat iki canlı glikozu piruvata kadar farklı yollarla parçalamakta ve farklı miktarda ATP elde etmektedir.
S. cerevisiae glikolizi Embden-Meyerhof-Parnas yolu üzerinden yürütmekte ve tükettiği her mol glikoz için 2 mol ATP elde etmektedir. Z. mobilis ise glikozu Entner-Doudoroff yoluyla parçalamakta ve glikoz başına sadece 1 ATP elde etmektedir.[11] Bu durumda bakteri, mayanın elde ettiği kadar ATP için iki kat glikoz harcamak zorundadır. Embden-Meyerhof-Parnas yolu, bu yazıda glikoliz diye anlatılan yolun kendisidir. Entner-Doudoroff yolu ise glikozu piruvata farklı ara ürünler üzerinden götüren başka bir yoldur.
Maya, oksijenle ilgili yaygın bir genellemenin de sınırını göstermektedir. Fermantasyonun oksijen varken hiç gerçekleşmediği sık söylenmektedir. Oysa S. cerevisiae oksijen mevcutken de sıkça fermantasyon kullanmaktadır.[15] Bu maya, popülasyonun ilk büyüme evresinde glikozu etil alkol fermantasyonuyla hızla tüketip etil alkol biriktirebilmekte, glikoz tükendiğinde ise biriken etil alkolü metabolize etmeye geçmektedir. Ancak fermantasyonun kendi ürünü de mayaya bir sınır koymaktadır. Biriken etil alkol maya için toksik hale gelebilmekte ve sonunda hücreleri öldürebilmektedir. Bununla birlikte farklı maya suşlarının dayanabildiği alkol miktarı aynı değildir.
Z. mobilis başka açılardan da mayadan ayrılmaktadır. Bu bakteri fakültatif anaerobdur. Yani oksijenli ve oksijensiz koşullarda yaşayabilen bir mikroorganizmadır. Yabanıl Z. mobilis'in doğal olarak kullanabildiği karbon kaynakları sınırlıdır ve bunlar arasında glikoz, fruktoz ve sakkaroz bulunmaktadır. Yabanıl terimi, bir canlının genetik olarak değiştirilmemiş, doğadaki halini anlatmaktadır. Bu sınırlılık, bakterinin endüstriyel kullanımında da önemli bir konu olarak öne çıkmaktadır.
Bakterilerde fermantasyonun yelpazesi laktik asit ve etil alkol oluşturan yollardan çok daha geniştir. Her fermantasyon türü oluşturduğu başlıca organik son ürünle tanımlanabilmektedir. Bu ürünler arasında asetik asit ile bütirik asit de bulunmaktadır. Örneğin Escherichia coli'nin karışık asit fermantasyonu tek bir son ürüne bağlı kalmamaktadır. Bu yolda laktik asit, asetat, format, süksinat, etil alkol, karbondioksit ve hidrojen değişen miktarlarda oluşabilmektedir. Bu çeşitlilik, fermantasyonun tek bir tepkime değil, ortak bir mantığa dayanan bir yollar ailesi olduğunu göstermektedir.
Kara Bitkilerinde Oksijensiz Ortama Uyum
Etil alkol üretebilen canlılar arasında bitkiler de vardır. Yüksek yapılı bitkilerde etil alkol fermantasyonu, oksijensiz koşullarda enerji üretimini sürdürmeye yardım eden başlıca metabolik uyumlardan biri olarak kabul edilmektedir.[10] Nitekim pirinç, mısır ve Arabidopsis üzerindeki çalışmalar da düşük oksijen koşullarında fermantasyonun önemini göstermiştir. Oksijenin yetersiz kaldığı bu duruma hipoksi adı verilmektedir.
Bitkilerdeki yol da iki basamaklıdır. Bitkisel piruvat dekarboksilaz, piruvatın asetaldehite dekarboksilasyonunu katalizlemektedir. Ardından asetaldehit, NADH elektron vericisi olarak kullanılarak etil alkole indirgenmektedir. Bu son basamağı ise bitkilere özgü, orta zincirli alkol dehidrogenazlar katalizlemektedir. Yani mayada olduğu gibi bitkilerde de piruvat, asetaldehit üzerinden etil alkole dönüşmektedir.
2019'da yayımlanan bir çalışma, bu yeteneğin farklı kara bitkisi gruplarında ne ölçüde korunduğunu araştırmıştır. Araştırmacılar, deney koşullarında inceledikleri bitki türlerinin tamamının hipoksi altında etil alkol saldığını belirlemiştir. Öte yandan etil alkol üretme yetisi birbirine uzak gruplarda korunmuş olsa da ilgili enzimlerin gen düzeyindeki düzenlenmesi eski bitki soy hatlarında korunmamıştır. Başka bir deyişle sonuç aynı kalsa da genlerin ne zaman ve nasıl açılacağını belirleyen denetim, farklı gruplarda farklı biçimlerde gelişmiş olabilir.
Fermente Besinlerin Mikrobiyolojisi
Fermente besinler (İng: "fermented foods"), istenen mikrobiyal büyüme ve besin bileşenlerinin enzimatik dönüşümleriyle üretilen besinlerdir.[12] Gıda biliminde terimin anlamı daha geniştir. Örneğin sirke ve kombu çayı üretiminde görev alan asetik asit bakterileri oksijenli metabolizma kullanmaktadır. Biyokimyasal anlamda fermantasyon sayılmayan bu süreçler, gıda biliminde yine de fermantasyon olarak adlandırılmaktadır. Bu yüzden bir yiyeceğin fermente olarak anılması, içinde biyokimyasal anlamda fermantasyon gerçekleştiği anlamına her zaman gelmemektedir.
Gıda fermantasyonunu bozulmadan ayıran özellik, sürecin amaçlı ve kontrollü olmasıdır. Bozulma istenmeden gerçekleşmektedir. Fermantasyon ise istenen özellikleri oluşturmak için bilerek ve denetim altında yürütülmektedir. Sözgelimi Pasteur'ün incelediği işletmede laktik asit alkol üreticisi açısından istenmeyen bir üründü ve bu durum, ayrımın amaca dayandığını göstermektedir. Ayrıca fermantasyon sırasında oluşan organik asitler, alkoller, bakteriyosinler ve başka antimikrobiyal son ürünler, besinlerin korunmasına da katkıda bulunabilmektedir.
Geleneksel Fermente Besinlerin Üretim Süreçleri
Ekmeğin mayalanması (İng: "leavening"), etil alkol fermantasyonunun mutfaktaki en tanıdık örneklerinden biridir. Hamurdaki maya hücrelerinin ürettiği karbondioksit kabarcıkları elastik hamurun içinde tutulmakta ve hamurun kabarması, sayısız küçük gaz kabarcığının bu şekilde hapsolmasının sonucudur. Fermantasyonla oluşan etil alkol ise ekmek pişerken buharlaşmaktadır. Pişirme aynı zamanda fermantasyonu yürüten mikroorganizmaları da öldürmektedir. Bu nedenle fermente bir besin, tüketildiği anda mutlaka canlı mikroorganizma içermemektedir.
Yoğurt üretiminde ise iki bakteri birlikte kullanılmaktadır. Bunlar Streptococcus thermophilus ile Lactobacillus delbrueckii subsp. bulgaricus bakterileridir. İlki streptokoklar, ikincisi laktobasiller arasında yer almaktadır ve iki grup da laktik asit fermantasyonunun görüldüğü bakteri grupları arasındadır. Öte yandan lahana ve başka yapraklı sebzelerin fermantasyonu tek bir türle değil, birbirini izleyen bir toplulukla ilerlemektedir. Süreci Leuconostoc mesenteroides başlatmaktadır. Ardından Lactiplantibacillus türleri ve Levilactobacillus brevis bu türü izleyebilmektedir. Yani bir türün başlattığı fermantasyonu başka türler devralabilmektedir.
Probiyotik Ayrımı ve Endüstriyel Biyoyakıt Uygulamaları
Fermente besin ile probiyotik (İng: "probiotic") birbirinin yerine kullanılabilecek kavramlar değildir. Bir ürünün probiyotik olarak nitelenmesi için iyi tanımlanmış ve özellikleri belirlenmiş canlı mikroorganizmalara bağlı, kanıtlanmış bir sağlık yararı gerekmektedir.[12] Örneğin pişirilmiş ekmek gibi canlı mikroorganizma içermeyen bir fermente besin bu koşulu baştan karşılayamamaktadır. Üstelik canlı mikroorganizma içeren her fermente besin de kendiliğinden probiyotik sayılmamaktadır. Bu ayrım, fermente ürünlerden ne beklenebileceğini doğru değerlendirmek açısından önemlidir.
Benzer bir karışıklık turşuda da ortaya çıkmaktadır. Sebze ya da meyveyi kimyasal yolla asitlendirmek, tek başına mikrobiyal fermantasyon yapıldığı anlamına gelmemektedir. Bu nedenle canlı mikroorganizmaların bulunmasını gerektirmeyen bu tür turşulama yöntemleriyle hazırlanan ürünler fermente besin sayılmamaktadır. Örneğin sadece asit eklenerek hazırlanan bir turşu, ekşi tadına rağmen bu ölçüte göre fermente besin değildir.
Fermantasyonun endüstriyel ölçekteki bir başka uygulaması biyoyakıt üretimidir. Doğal olarak etil alkol üreten Z. mobilis, biyoyakıt ve başka biyokimyasalların üretimi için bir model sistem olarak araştırılmaktadır. Model sistem, bir süreci anlamak ve geliştirmek için üzerinde ayrıntılı çalışılan örnek organizmadır. Ayrıca bakterinin fakültatif anaerob olması, üretim büyütülürken gereken gelişmiş havalandırma denetiminin maliyetini azaltabilmektedir.
Ancak bu ölçekte de engeller vardır. Biyoyakıt üretiminde biyokütlenin parçalanmasıyla elde edilen hidrolizatlar, mikroorganizmaları baskılayan çeşitli maddeler içermektedir. Bu inhibitörlerin birleşik etkileri, dayanıklı bir organizma olan Z. mobilis'te bile hücre büyümesini ve etil alkol üretimini olumsuz etkileyebilmektedir. Dolayısıyla bu alandaki çalışmalar, mikroorganizmaları bu maddelere karşı daha dayanıklı hale getirmeyi de hedeflemektedir.
Kontrollü Fermantasyon Deneylerinin Tasarımı
Fermantasyonu laboratuvarda izlemenin bir yolu, etil alkol fermantasyonunda açığa çıkan gazı görünür ve ölçülebilir hale getirmektir. Kuru maya kullanılan deneylerde, maya taneleri içindeki uykudaki hücreler suyla etkinleştirilmektedir. Yani kuru maya, su eklenene kadar etkinliğini göstermeyen bir üründür. Eklenen su ılıktır. Deney düzeneklerinde verilen sıcaklıklar 30 ila 40 °C arasında kalmaktadır.
Deneyler yine de önlem gerektirmektedir. Örneğin deney sırasında koruyucu gözlük takılmaktadır. Gazı tanımakta kullanılan kireç suyu, deriyi ve gözleri tahriş edebilecek bir madde olarak ele alınmaktadır. Hızlı ilerleyen bir fermantasyonda ise karışım erlenin dışına taşabilmektedir. Sonuçların ne kadar sürede görüleceği de sıcaklığa, karışımın ne kadar iyi karıştırıldığına ve mayanın tazeliğine bağlıdır.
Kireç Suyuyla Karbondioksit Gazı Testi
En basit düzenekte bir erlene 5 g glikoz, 30 ila 40 °C sıcaklıkta 50 cm³ ılık su ve 1 g maya konmaktadır. Mayanın olabildiğince hızlı etki eden türden olması tercih edilmektedir. Ardından malzemeler iyice karıştırılmakta ve erlenin ağzı pamukla gevşekçe kapatılmaktadır. Böylece deneyin ilk bölümü tamamlanmakta ve karışım fermantasyonun başlaması için bir süre bekletilmektedir.
Gazı tanımak için ayrı bir deney tüpüne 5 cm³ kireç suyu konmaktadır. Erlende biriken gaz bu tüpe aktarılırken sıvının kireç suyuna dökülmemesine dikkat edilmektedir. Beklenen sonuç, kireç suyunun bulanıklaşması ya da sütümsü bir görünüm almasıdır. Bu değişim, erlende oluşan gazın karbondioksit olduğunu göstermektedir.[13] Ancak bu test gazın miktarını ölçmemektedir.
Kontrollü Maya Deneyinde Bağımsız Değişkenler
Şekerli suya konan mayanın kabarcık çıkarması, kabarcıkların mutlaka etil alkol fermantasyonundan geldiğini tek başına göstermemektedir. Bu yüzden iyi bir deney, olası öteki açıklamaları ayrı kontrollerle dışarıda bırakmaktadır. Kontrol, sonucun belirli bir koşula bağlı olup olmadığını anlamaya yarayan karşılaştırma düzeneğidir. Bu amaçla tasarlanmış bir düzenekte, kuru maya tanelerinin etil alkol fermantasyonu yapabilen canlı hücreler içerip içermediği üç kapla sınanmaktadır.[14]
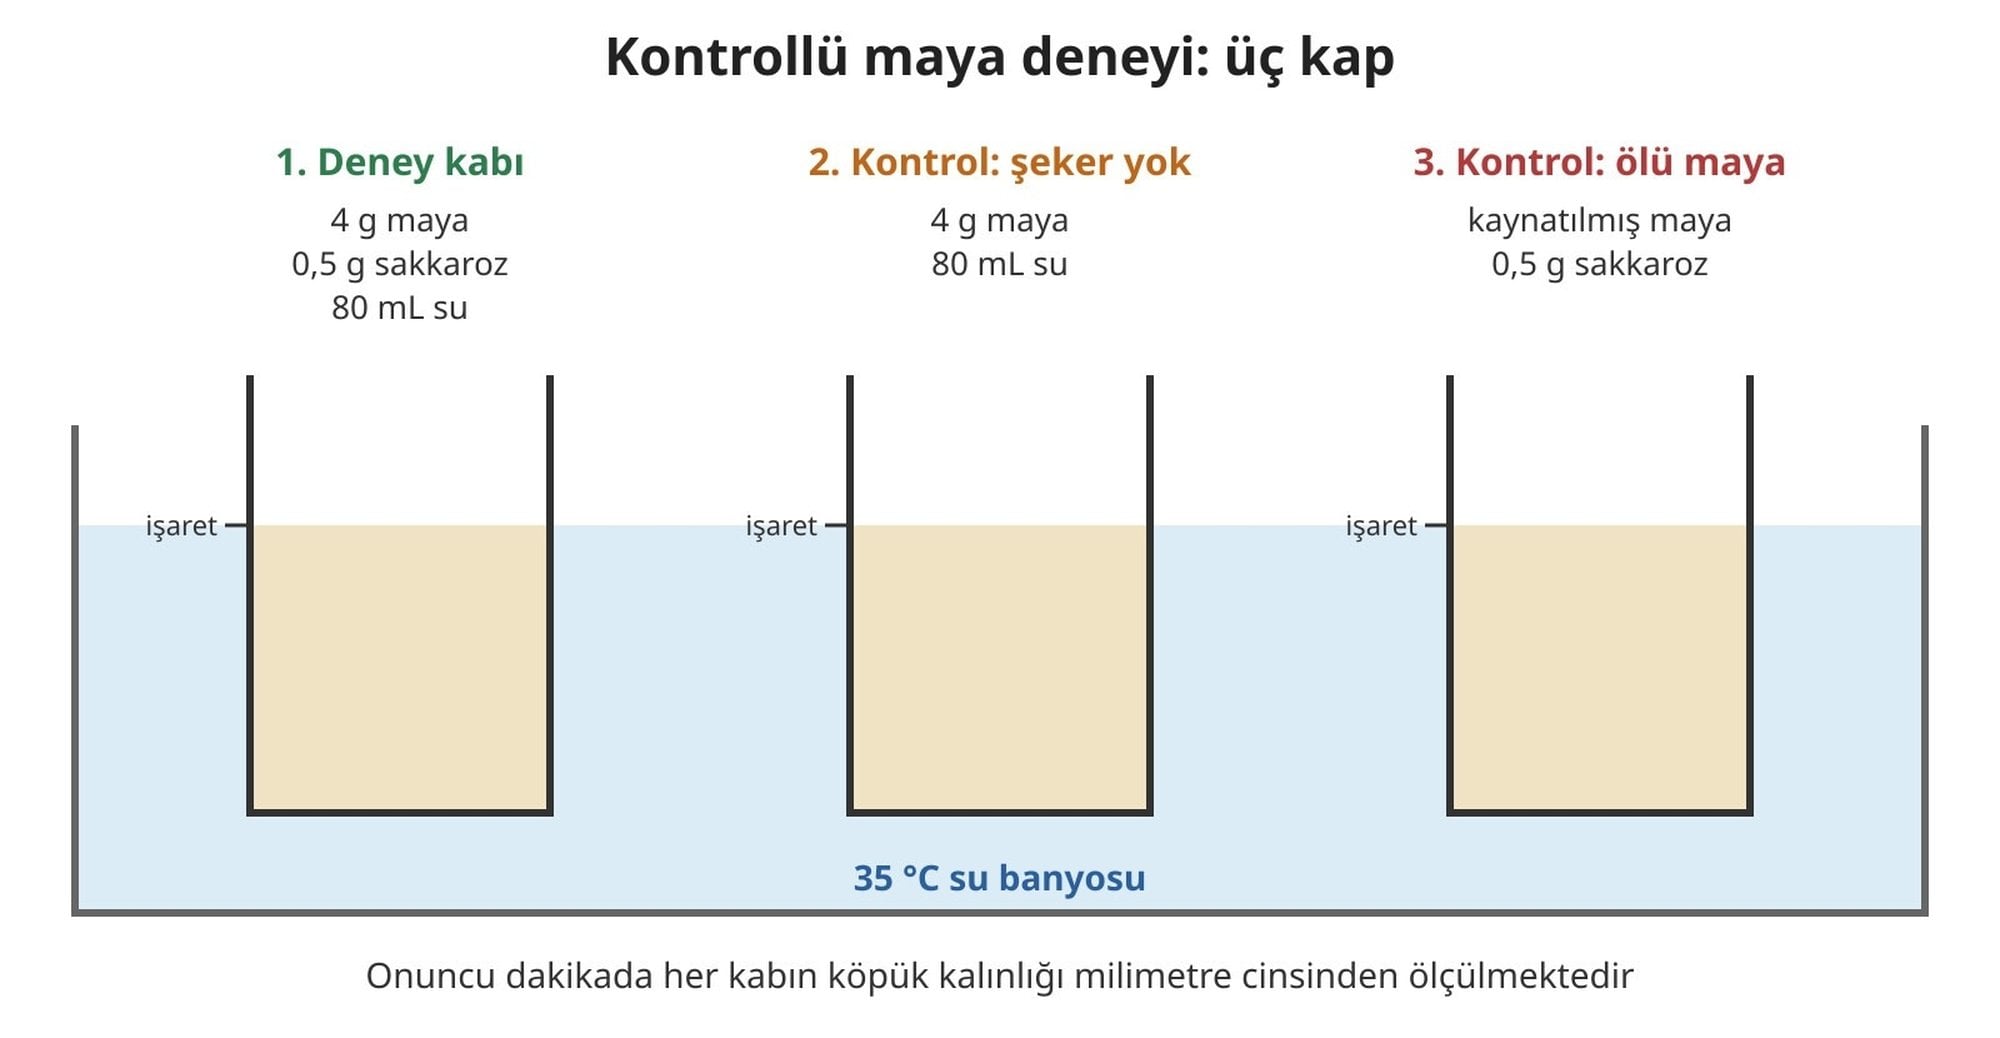
Birinci kapta 4 g maya, 0,5 g sakkaroz ve 35 °C'deki 80 mL su bulunmakta ve bu kap, canlı maya ile şekerin bir arada bulunduğu durumu temsil etmektedir. İkinci kap 4 g maya ile aynı hacim ve sıcaklıktaki sudan oluşmaktadır. Ancak şeker yoktur. Bu kap, olası canlı maya hücrelerinin sade suda kabarcık üretip üretmediğini sınamaktadır. İki kap arasındaki tek fark şeker olduğu için aralarındaki sonuç farkı da şekerin etkisini göstermektedir.
Üçüncü kapta ise 0,5 g sakkaroz ve 35 °C'deki 80 mL ölü maya süspansiyonu bulunmaktadır. Süspansiyon, katı taneciklerin sıvı içinde çözünmeden dağıldığı karışımdır. Bu süspansiyon, 4 g maya 80 mL suda 5 dakika kaynatılarak hazırlanmakta, ardından yaklaşık 35 °C'ye getirilip iyice karıştırılmaktadır. Kaynatma, maya hücrelerindeki enzimleri denatüre ederek etkisiz hale getirmektedir. Denatürasyon, bir proteinin işlevi için gereken üç boyutlu yapısının bozulmasıdır. Dolayısıyla bu kap, şeker bulunsa bile cansız maya kalıntılarının kabarcık oluşturup oluşturmadığını ortaya koymaktadır.
Her kabın içeriği bir dakika boyunca karıştırılmakta ve maya topakları ezilmektedir. Sıvı düzeyleri kapların üzerine işaretlenmekte, ardından kaplar suyun kaplardaki sıvı düzeyine kadar yükseldiği 35 °C'lik bir su banyosuna yerleştirilmektedir. Su banyosunun başlangıç sıcaklığı ve 9. dakikadaki sıcaklığı kaydedilerek deney boyunca sıcaklığın değişip değişmediği izlenmektedir. Onuncu dakikada ise her kabın kenarındaki köpük katmanının kalınlığı milimetre cinsinden ölçülmektedir.[14]
Sonuçları yorumlarken şekersiz kontrol önemli bir ayrıntı taşımaktadır. Bu kapta karıştırmanın hemen ardından birkaç kabarcık görülebilmektedir. Eğer bu kabarcıklar karıştırmadan hemen sonra ortaya çıkıyor ve miktarları zamanla artmıyorsa, bunlar fermantasyonun değil karıştırmanın ardıl etkisidir. Üçüncü kap ise şeker varken bile enzimleri etkisiz hale gelmiş hücrelerin köpük üretip üretmediğini göstermektedir. İki kontrol de beklendiği gibi sonuç verdiğinde, birinci kaptaki köpüğün canlı maya hücrelerinden ve şekerin varlığından kaynaklandığı yönündeki yorum güçlenmektedir.
Tek bir deneme yeterli değildir. Deneylerin tekrarlanması gerekmektedir. Bu bağlamda sıcaklığın ve sakkaroz miktarının etkisi araştırılırken her bağımsız değişken ayrı ayrı sınanmaktadır. Yani bir değişkenin farklı düzeyleri denenirken öteki değişken sabit tutulmaktadır. Aksi halde iki değişken aynı anda değiştiğinde, gözlenen farkın hangisinden kaynaklandığını ayırmak mümkün olmamaktadır.
İki sezgisel beklenti de sınırlıdır. Daha fazla şekerin her zaman daha hızlı fermantasyon sağlayacağı düşünülebilir. Oysa çok yüksek sakkaroz düzeyleri maya hücrelerinde ozmotik strese, yani yoğun şekerli ortamın hücreler üzerinde yarattığı baskıya yol açarak karbondioksit üretimini azaltabilmektedir.[15] Benzer şekilde sıcaklık artışının enzimlere sağladığı yarar da sınırsız değildir. Sıcaklık yeterince yükseldiğinde enzim denatüre olmakta ve katalizör olarak işlev görmemektedir.
Gaz Hacminin Zamana Bağlı Ölçümü
Kireç suyu testi gazın ne olduğunu, köpük ölçümü ise köpük katmanının kalınlığını göstermektedir. Belirli zaman aralıklarında üretilen gazın hacmini izlemek içinse gaz hacminin zamana bağlı olarak ölçülmesi gerekmektedir. Bunun için erlen bir gaz şırıngasına ya da su içinde ters çevrilmiş bir ölçü silindirine bağlanabilmektedir. Böylece sabit zaman aralıklarında üretilen gazın hacmi okunabilmektedir. Bu yöntem, sadece belirli bir andaki sonucu değil, fermantasyonun zaman içindeki seyrini de ortaya koymaktadır.
Daha basit bir düzenekte, maya ve şeker çözeltisiyle doldurulmuş, kapağı delikli bir tüp ters çevrilmektedir. Oluşan karbondioksit, maya ve şeker çözeltisini kapaktaki deliklerden dışarı itmekte ve gaz hacminin zaman içinde izlenmesine olanak vermektedir.[16] Tüp bir hacim göstergesidir. Düzenek kurulurken tüpte başlangıçta büyük hava kabarcıkları bulunmamasına dikkat edilmektedir. Aksi halde işaretlenen hacim, fermantasyondan gelmeyen havayı da içerebilmektedir.
Gaz kabarcığının alt sınırı hemen işaretlenmekte, sonra 30 dakika boyunca 5 dakikada bir yeniden işaretlenmektedir.[16] İşaretlerin karşılık geldiği hacim deneyden sonra bulunmaktadır. Bunun için tüp boşaltılmakta, tam işarete kadar suyla doldurulmakta ve bu su dereceli bir silindire dökülerek ölçülmektedir. Ardışık iki işaret arasındaki hacim farkı da bu 5 dakikalık aralıkta üretilen gazı vermektedir.
Sonuç
Fermantasyon, hücrelerin ETS'ye ihtiyaç duymadan glikolizi sürdürmesini sağlayan, NADH'deki elektronları organik bir son alıcıya aktararak NAD+'yı yenileyen metabolik yoldur. Laktik asit fermantasyonunda bu alıcı piruvatın kendisidir. Etil alkol fermantasyonunda ise piruvattan karbondioksit ayrıldıktan sonra oluşan asetaldehittir. Her iki yol da ek ATP üretmemekte, ama glikolizin durmasını engellemektedir.[3]
Bu temel mekanizma birçok canlıda ortak olsa da çevresindeki düzenleme her yerde aynı değildir. Hipoksi altında etil alkol salma yeteneği birbirine uzak kara bitkisi gruplarında bulunmaktadır, fakat ilgili enzimlerin gen düzeyindeki denetimi eski soy hatlarında korunmamıştır.[10] Aynı ürünü veren yolların farklı bitki gruplarında farklı biçimde denetlenmesi, bu metabolik uyumun bitkilerde tek tip olmadığını göstermektedir.
Endüstride soru farklıdır. Z. mobilis gibi doğal etil alkol üreticilerinde bile biyokütle hidrolizatlarındaki inhibitörlerin birleşik etkileri, büyümeyi ve üretimi olumsuz etkileyebilmektedir.[11] Ezilmiş üzüm kaplarındaki kabarcıklarla başlayan merak, bugün bu engellere dayanabilecek mikroorganizmaları geliştirme çabasına uzanmaktadır.
Bu makale üzerine konuşmaya devam et
Topluluk sohbetine katıl, yorum bırak veya ayrıntılı bir soru sor.
- Bilim Budur!20
- Merak Uyandırıcı!9
- Tebrikler!7
- Mmm... Çok sapyoseksüel!3
- İnanılmaz2
- Muhteşem!0
- Güldürdü0
- Umut Verici!0
- Üzücü!0
- Grrr... *@$#0
- İğrenç!0
- Korkutucu!0
- ^abJurtshuk, P., Jr. Bacterial Metabolism. S. Baron (Ed.), Medical Microbiology, 4. Baskı, Bölüm 4. University Of Texas Medical Branch At Galveston. (1 Ocak 1996). Alındığı Tarih: 8 Kasım 2026. Alındığı Yer: NCBI Bookshelf | Arşiv Bağlantısı
- ^abCooper, G. M.. Metabolic Energy. The Cell: A Molecular Approach, 2. Baskı, Bölüm 2. Sinauer Associates. (1 Ocak 2000). Alındığı Tarih: 8 Kasım 2026. Alındığı Yer: NCBI Bookshelf | Arşiv Bağlantısı
- ^abBokinsky, G., De Magistris, P., Beije, J. ve Tilly, B.. A Brief Introduction To Biochemistry: Biochemistry For Non-Chemists, Bölüm 7: Metabolism. Tu Delft Open Books. Doi:10.59490/Mt.209. (1 Ocak 2025). Alındığı Tarih: 8 Kasım 2026. Alındığı Yer: Delft University of Technology Interactive Textbooks | Arşiv Bağlantısı
- ^abGeorgia Institute of Technology, School of Biological Sciences. Fermentation, Mitochondria, And Regulation. Biological Principles. Alındığı Tarih: 8 Kasım 2026. Alındığı Yer: Georgia Tech Biological Sciences | Arşiv Bağlantısı
- ^abGunsalus, R. ve Schröder, I.. Fermentation. Microbe Scholar, University Of California, Los Angeles. Alındığı Tarih: 8 Kasım 2026. Alındığı Yer: UCLA Microbe Scholar | Arşiv Bağlantısı
- ^abAlba-Lois, L. ve Segal-Kischinevzky, C.. Yeast Fermentation And The Making Of Beer And Wine. Nature Education, 3(9), 17. (1 Ocak 2010). Alındığı Tarih: 8 Kasım 2026. Alındığı Yer: Nature Scitable | Arşiv Bağlantısı
- ^abBuchner, E.. Alcoholic Fermentation Without Yeast Cells (H. C. Friedmann, Çev.). A. Cornish-Bowden (Ed.), New Beer In An Old Bottle: Eduard Buchner And The Growth Of Biochemical Knowledge, S. 25-31. Universitat De València. Özgün Makale: Alkoholische Gährung Ohne Hefezellen, Berichte Der Deutschen Chemischen Gesellschaft, 30(1), 117-124. Doi:10.1002/Cber.18970300121. (1 Ocak 1997). Alındığı Tarih: 8 Kasım 2026. Alındığı Yer: University of California, San Diego, öğretim arşivi | Arşiv Bağlantısı
- ^abBuchner, E.. Cell-Free Fermentation. Nobel Lecture, 11 Aralık 1907, S. 103-120. Nobel Foundation. (1 Ocak 1907). Alındığı Tarih: 8 Kasım 2026. Alındığı Yer: The Nobel Prize | Arşiv Bağlantısı
- ^abBrooks, G. A., Osmond, A. D., Arevalo, J. A., Duong, J. J., Curl, C. C., Moreno-Santillan, D. D. ve Leija, R. G.. Lactate As A Myokine And Exerkine: Drivers And Signals Of Physiology And Metabolism. Journal Of Applied Physiology, 134(3), 529-548. Doi:10.1152/Japplphysiol.00497.2022. (1 Ocak 2023). Alındığı Tarih: 8 Kasım 2026. Alındığı Yer: PubMed Central | Arşiv Bağlantısı
- ^abBui, L. T., Novi, G., Lombardi, L., Iannuzzi, C., Rossi, J., Santaniello, A., Mensuali, A., Corbineau, F., Giuntoli, B., Perata, P., Zaffagnini, M. ve Licausi, F.. Conservation Of Ethanol Fermentation And Its Regulation In Land Plants. Journal Of Experimental Botany, 70(6), 1815-1827. Doi:10.1093/Jxb/Erz052. (1 Ocak 2019). Alındığı Tarih: 8 Kasım 2026. Alındığı Yer: PubMed Central | Arşiv Bağlantısı
- ^abYang, S., Fei, Q., Zhang, Y., Contreras, L. M., Utturkar, S. M., Brown, S. D., Himmel, M. E. ve Zhang, M.. Zymomonas Mobilis As A Model System For Production Of Biofuels And Biochemicals. Microbial Biotechnology, 9(6), 699-717. Doi:10.1111/1751-7915.12408. (1 Ocak 2016). Alındığı Tarih: 8 Kasım 2026. Alındığı Yer: PubMed Central | Arşiv Bağlantısı
- ^abMarco, M. L., Sanders, M. E., Gänzle, M., Arrieta, M. C., Cotter, P. D., De Vuyst, L., Hill, C., Holzapfel, W., Lebeer, S., Merenstein, D., Reid, G., Wolfe, B. E. ve Hutkins, R.. The International Scientific Association For Probiotics And Prebiotics (Isapp) Consensus Statement On Fermented Foods. Nature Reviews Gastroenterology & Hepatology, 18(3), 196-208. Doi:10.1038/S41575-020-00390-5. (1 Ocak 2021). Alındığı Tarih: 8 Kasım 2026. Alındığı Yer: PubMed Central | Arşiv Bağlantısı
- ^abGoalby, N., Nuffield Foundation ve Royal Society of Chemistry. Fermentation Of Glucose Using Yeast (Deney Protokolü Ve Öğretmen Notları). Royal Society Of Chemistry, Practical Chemistry / Nuffield Practical Collection. (1 Ocak 2024). Alındığı Tarih: 8 Kasım 2026. Alındığı Yer: RSC Education | Arşiv Bağlantısı
- ^abWaldron, I. ve Doherty, J.. Alcoholic Fermentation In Yeast - A Bioengineering Design Challenge: Student Handout. University Of Pennsylvania, Biology Department. (1 Ocak 2024). Alındığı Tarih: 8 Kasım 2026. Alındığı Yer: Serendip Studio, üniversite öğretim materyali | Arşiv Bağlantısı
- ^abWaldron, I. ve Doherty, J.. Teacher Preparation Notes For Alcoholic Fermentation In Yeast - A Bioengineering Design Challenge. University Of Pennsylvania, Biology Department. (1 Ocak 2024). Alındığı Tarih: 8 Kasım 2026. Alındığı Yer: Serendip Studio, üniversite öğretim materyali | Arşiv Bağlantısı
- ^abRockEDU Science Outreach. Which Sugars Do Yeast Prefer? The Rockefeller University. İlk Yayımlanma: 27 Eylül 2018, Güncelleme: 27 Ağustos 2025. (1 Ocak 2025). Alındığı Tarih: 8 Kasım 2026. Alındığı Yer: Rockefeller University RockEDU | Arşiv Bağlantısı
Evrim Ağacı'na her ay sadece 1 kahve ısmarlayarak destek olmak ister misin?
Şu iki siteden biriyle hemen destek olabilirsin:
kreosus.com/evrimagaci | patreon.com/evrimagaci
Çıktı Bilgisi: Bu sayfa, Evrim Ağacı yazdırma aracıyla 11.11.2026 00:37:21 tarihinde oluşturuldu. Evrim Ağacı'ndaki içerikleri birden fazla editör sürekli gözden geçiriyor, güncelliyor ve geliştiriyor. Bu çıktıdan sonraki güncellemeleri görmek ve içeriğin en güncel hâlini okumak için şu adrese git: evrimagaci.org/s/9197
İçerik Kullanım İzinleri: Evrim Ağacı'ndaki yazılı içerikler orijinallerine hiçbir şekilde dokunulmadığı sürece izin alınmaksızın paylaşılabilir, kopyalanabilir, yapıştırılabilir, çoğaltılabilir, basılabilir, dağıtılabilir, yayılabilir, alıntılanabilir. Ancak bu içeriklerin hiçbiri izin alınmaksızın değiştirilemez ve değiştirilmiş hâlleri Evrim Ağacı'na aitmiş gibi sunulamaz. Benzer şekilde, içeriklerin hiçbiri, söz konusu içeriğin açıkça belirtilmiş yazarlarından ve Evrim Ağacı'ndan başkasına aitmiş gibi sunulamaz.