
Dinozorların Gölgesinden Dünya Hakimiyetine
Memelilerin Aşırı Hızlı Evrimi
- Blog Yazısı
Blog Yazısı
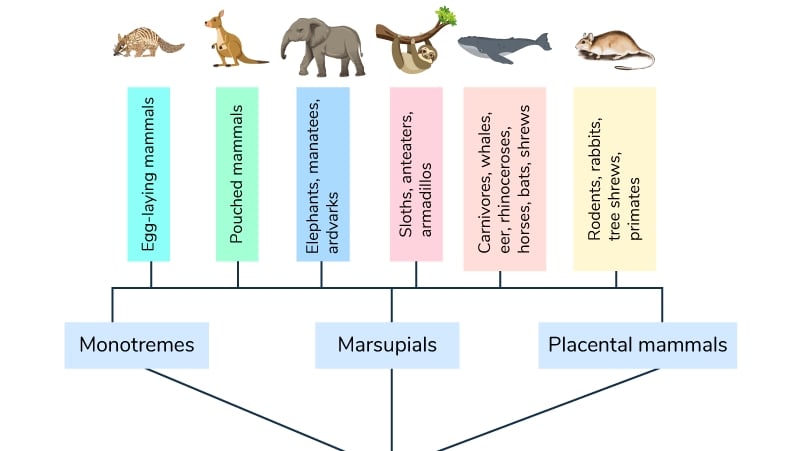
Memelilerin Senozoik'teki yükselişi, evrimsel biyolojinin en çarpıcı anlatılarından biridir. Geleneksel görüş, küçük, gececil ve böcekçil ataların, dinozorların yok oluşuyla boşalan ekolojik alanlara adeta bir "boşluk doldurma" refleksiyle yayıldığını varsayar. Ancak son yirmi yılda fosil kayıtları, moleküler filogeniler ve genomik analizlerden gelen veriler, bu tabloyu hem kronolojik hem de mekanistik açıdan ciddi biçimde revize etmiştir. Bugün, Kretase-Paleojen (K-Pg) sınırında yaşananların basit bir "yok oluş-sonrası patlama"dan çok daha katmanlı bir süreç olduğunu biliyoruz.
Kretase'nin sonuna gelindiğinde memeliler, sanıldığı kadar "bastırılmış" bir grup değildi. Özellikle çok tüberküllü memelilerde (Multituberculata) adaptif radyasyonun K-Pg sınırından en az 20 milyon yıl önce başladığı ve sınır boyunca devam ettiği gösterilmiştir. Benzer şekilde, therian memelilerin (modern memelilerin ataları) de dinozorların yok oluşundan 10–20 milyon yıl önce çeşitlenmeye başladığına dair fosil kanıtları birikmektedir. Bu dönemde çiçekli bitkilerin yayılışı, yeni besin kaynakları (tohumlar, meyveler, böcekler) yaratarak memeli çeşitlenmesini tetiklemiş olabilir. Dolayısıyla K-Pg sınırı, memeli evriminde bir "sıfır noktası" değil, hâlihazırda işleyen bir sürecin kesintiye uğradığı ve yeniden şekillendiği bir eşiktir.
K-Pg kitlesel yok oluşunun memeliler için her zaman bir "fırsat penceresi" olmadığı da açıktır. Fosil verileri, sınırda memeli çeşitliliğinde geçici bir düşüş yaşandığını göstermektedir; özellikle dar beslenme nişlerine özelleşmiş türler yok olurken, ekolojik olarak genelci (generalist) türler hayatta kalmıştır. Dahası, K-Pg sınırını geçen plasentalı memeli soyu sayısının beklenenden düşük olduğu (bazı analizlerde 10'dan az) ve yok oluşun yavaş türleşen soyları daha fazla elimine ettiği anlaşılmaktadır. Yani sınır, memelileri "serbest bırakan" bir olay değil, mevcut çeşitliliği süzerek yeniden yapılandıran bir seçilim baskısı işlevi görmüştür.
K-Pg sonrası döneme dair en sağlam bulgu, morfolojik evrim hızlarındaki çarpıcı artıştır. Kafatası morfolojisi üzerine yapılan geniş ölçekli analizler, evrimsel değişim hızının K-Pg sınırı civarında zirve yaptığını ve Senozoik boyunca genel olarak azaldığını göstermektedir. Sınırı takip eden ilk 5 milyon yılda eutherian (plasentalı) memelilerin morfolojik evrim hızının, Kretase arka plan hızının yaklaşık üç katı olduğu hesaplanmıştır. Bu, boşalan ekolojik alanlara giren soyların hızla yeni formlar geliştirdiğini doğrular.
Ancak ilginç bir ayrım vardır: Türleşme (speciation) hızı, morfolojik evrim hızıyla aynı eğilimi göstermemiştir. Kapsamlı filogenetik ve fosil verilerini birleştiren "doğum-ölüm difüzyon" modelleri, türleşme hızlarının K-Pg sınırından önce ve sınır sırasında arttığını, ancak sınır sonrasında bir "toparlanma" (rebound) yerine kademeli bir yavaşlama yaşandığını ortaya koymuştur. Paleosen'de (yaklaşık 66–56 milyon yıl önce) belirgin bir türleşme dalgası tespit edilse de, bu dalgada ortaya çıkan taksonların yaklaşık üçte ikisinin modern torun bırakmadığı anlaşılmaktadır. Yani K-Pg sonrası "patlama", esas olarak mevcut soyların hızla yeni morfolojilere ve ekolojilere yayılmasıyla karakterizedir; yeni türlerin kalıcı olarak birikmesi ise daha kademeli ve seçici bir süreç olmuştur.
Bu ekolojik genişlemenin en somut kanıtlarından biri, plasentalı memeli genomlarında korunmuş olan kitinaz genleridir (CHIAs). Kitinaz enzimleri, böceklerin dış iskeletindeki kitini sindirebilir. Karşılaştırmalı genomik analizler, tüm plasentalı memelilerin ortak atasının beş fonksiyonel kitinaz geni kopyasına sahip olduğunu ve bu gen sayısının günümüz türlerinde diyetlerindeki omurgasız oranıyla pozitif ilişkili olduğunu göstermiştir. Kretase'deki eutherian ataların böcekçil olduğu fosil kanıtlarıyla uyumlu olarak, K-Pg sınırından itibaren çeşitli plasentalı soylarda bu genlerin işlevini yitirmesi (pseudogenizasyon) ve kaybı, otçulluk ve etçillik gibi böcekçil olmayan beslenme nişlerine geçişin genomik izini oluşturmaktadır. Bu bulgu, diyet nişlerinin K-Pg sonrasında gerçekten de genişlediğini ve bu genişlemenin genom düzeyinde izlenebilir olduğunu kanıtlaması bakımından önemlidir.
K-Pg sonrası radyasyonun merkezinde, boşalan ekolojik alanların ötesinde, ekosistemlerin yeniden örgütlenmesi yatmaktadır. Dinozorların yok oluşu yalnızca "boşluk" yaratmakla kalmamış, aynı zamanda memelilerin daha önce erişemediği kaynaklara ve yaşam alanlarına erişimini mümkün kılmıştır. Ancak artan çeşitlilik yalnızca vücut boyutunun büyümesiyle açıklanamaz; küçük vücutlu memeli sınıflarında da K-Pg sınırında ani ve kalıcı bir tür zenginliği artışı yaşanmıştır. Bu, memelilerin yalnızca dinozorların büyük vücut boyutlarından kurtulmakla kalmayıp, aynı zamanda küçük vücut boyutu nişlerini de daha verimli bir şekilde paylaşabildiklerini (niche packing) göstermektedir. Memelilerin ebeveyn yatırımı ve ontogenetik niş farklılaşması gibi yaşam öyküsü özellikleri, dinozorlara kıyasla aynı ekolojik alanda daha yüksek tür zenginliğine ulaşmalarını kolaylaştırmış olabilir.
Vücut boyutu evrimi de bu tabloyu tamamlar niteliktedir. K-Pg sonrasında fare büyüklüğündeki memelilerden fil boyutlarına ulaşmak, mikroevrimsel ölçekte gözlemlenen hızlardan çok daha yavaş gerçekleşmiştir; bu "makroevrimsel" süreç, yaklaşık 24 milyon nesil almıştır. Denizel ortamda ise balinalar gibi dev formlar, karasal memelilere kıyasla çok daha hızlı büyümüştür (1000 katlık bir boyut artışı için yaklaşık 3 milyon nesil), bu da sucul yaşamın getirdiği farklı fizyolojik kısıtlar ve termoregülasyon gereksinimleriyle açıklanmaktadır. Bu farklı yörüngeler, K-Pg sonrası radyasyonun tek bir "patlama" değil, farklı ekolojik arenalarda farklı hızlarda işleyen çok yönlü bir süreç olduğunu göstermektedir.
Elimizdeki sentez, memelilerin kısa sürede bu denli çeşitlenmesini ve dünyayı "ele geçirmesini" tek bir nedene indirgemenin yanıltıcı olacağını göstermektedir. K-Pg sınırı, memelileri dinozorların baskısından kurtaran bir "ekolojik serbest bırakılma" (ecological release) olayı olarak önemini korumakla birlikte, bu serbest bırakılmanın etkileri, sınır öncesinde başlamış olan çeşitlenme eğilimleri, sınırda işleyen seçici yok oluş filtresi ve sınır sonrasında ekosistemlerin kalıcı olarak yeniden yapılanmasıyla birlikte değerlendirilmelidir. Memeliler dünyayı, boş bir sahneye çıkan oyuncular gibi değil; sahnenin kendisi değişirken, hâlihazırda üzerinde durdukları zemini dönüştürerek devralmışlardır. Bu süreçte morfolojik yenilikler patlamış, beslenme nişleri genomlara kazınmış ve vücut boyutu evrimi, ekolojik fırsatların ve fizyolojik kısıtların diyalektiği içinde şekillenmiştir. Bugünün memeli çeşitliliği, 66 milyon yıl önceki bu çok katmanlı yeniden yapılanmanın doğrudan ve hâlâ süregiden bir sonucudur.Memelilerin Senozoik'teki yükselişi, evrimsel biyolojinin en çarpıcı anlatılarından biridir. Geleneksel görüş, küçük, gececil ve böcekçil ataların, dinozorların yok oluşuyla boşalan ekolojik alanlara adeta bir "boşluk doldurma" refleksiyle yayıldığını varsayar. Ancak son yirmi yılda fosil kayıtları, moleküler filogeniler ve genomik analizlerden gelen veriler, bu tabloyu hem kronolojik hem de mekanistik açıdan ciddi biçimde revize etmiştir. Bugün, Kretase-Paleojen (K-Pg) sınırında yaşananların basit bir "yok oluş-sonrası patlama"dan çok daha katmanlı bir süreç olduğunu biliyoruz.
Kretase'nin sonuna gelindiğinde memeliler, sanıldığı kadar "bastırılmış" bir grup değildi. Özellikle çok tüberküllü memelilerde (Multituberculata) adaptif radyasyonun K-Pg sınırından en az 20 milyon yıl önce başladığı ve sınır boyunca devam ettiği gösterilmiştir. Benzer şekilde, therian memelilerin (modern memelilerin ataları) de dinozorların yok oluşundan 10–20 milyon yıl önce çeşitlenmeye başladığına dair fosil kanıtları birikmektedir. Bu dönemde çiçekli bitkilerin yayılışı, yeni besin kaynakları (tohumlar, meyveler, böcekler) yaratarak memeli çeşitlenmesini tetiklemiş olabilir. Dolayısıyla K-Pg sınırı, memeli evriminde bir "sıfır noktası" değil, hâlihazırda işleyen bir sürecin kesintiye uğradığı ve yeniden şekillendiği bir eşiktir.
K-Pg kitlesel yok oluşunun memeliler için her zaman bir "fırsat penceresi" olmadığı da açıktır. Fosil verileri, sınırda memeli çeşitliliğinde geçici bir düşüş yaşandığını göstermektedir; özellikle dar beslenme nişlerine özelleşmiş türler yok olurken, ekolojik olarak genelci (generalist) türler hayatta kalmıştır. Dahası, K-Pg sınırını geçen plasentalı memeli soyu sayısının beklenenden düşük olduğu (bazı analizlerde 10'dan az) ve yok oluşun yavaş türleşen soyları daha fazla elimine ettiği anlaşılmaktadır. Yani sınır, memelileri "serbest bırakan" bir olay değil, mevcut çeşitliliği süzerek yeniden yapılandıran bir seçilim baskısı işlevi görmüştür.
K-Pg sonrası döneme dair en sağlam bulgu, morfolojik evrim hızlarındaki çarpıcı artıştır. Kafatası morfolojisi üzerine yapılan geniş ölçekli analizler, evrimsel değişim hızının K-Pg sınırı civarında zirve yaptığını ve Senozoik boyunca genel olarak azaldığını göstermektedir. Sınırı takip eden ilk 5 milyon yılda eutherian (plasentalı) memelilerin morfolojik evrim hızının, Kretase arka plan hızının yaklaşık üç katı olduğu hesaplanmıştır. Bu, boşalan ekolojik alanlara giren soyların hızla yeni formlar geliştirdiğini doğrular.
Ancak ilginç bir ayrım vardır: Türleşme (speciation) hızı, morfolojik evrim hızıyla aynı eğilimi göstermemiştir. Kapsamlı filogenetik ve fosil verilerini birleştiren "doğum-ölüm difüzyon" modelleri, türleşme hızlarının K-Pg sınırından önce ve sınır sırasında arttığını, ancak sınır sonrasında bir "toparlanma" (rebound) yerine kademeli bir yavaşlama yaşandığını ortaya koymuştur. Paleosen'de (yaklaşık 66–56 milyon yıl önce) belirgin bir türleşme dalgası tespit edilse de, bu dalgada ortaya çıkan taksonların yaklaşık üçte ikisinin modern torun bırakmadığı anlaşılmaktadır. Yani K-Pg sonrası "patlama", esas olarak mevcut soyların hızla yeni morfolojilere ve ekolojilere yayılmasıyla karakterizedir; yeni türlerin kalıcı olarak birikmesi ise daha kademeli ve seçici bir süreç olmuştur.
Bu ekolojik genişlemenin en somut kanıtlarından biri, plasentalı memeli genomlarında korunmuş olan kitinaz genleridir (CHIAs). Kitinaz enzimleri, böceklerin dış iskeletindeki kitini sindirebilir. Karşılaştırmalı genomik analizler, tüm plasentalı memelilerin ortak atasının beş fonksiyonel kitinaz geni kopyasına sahip olduğunu ve bu gen sayısının günümüz türlerinde diyetlerindeki omurgasız oranıyla pozitif ilişkili olduğunu göstermiştir. Kretase'deki eutherian ataların böcekçil olduğu fosil kanıtlarıyla uyumlu olarak, K-Pg sınırından itibaren çeşitli plasentalı soylarda bu genlerin işlevini yitirmesi (pseudogenizasyon) ve kaybı, otçulluk ve etçillik gibi böcekçil olmayan beslenme nişlerine geçişin genomik izini oluşturmaktadır. Bu bulgu, diyet nişlerinin K-Pg sonrasında gerçekten de genişlediğini ve bu genişlemenin genom düzeyinde izlenebilir olduğunu kanıtlaması bakımından önemlidir.
K-Pg sonrası radyasyonun merkezinde, boşalan ekolojik alanların ötesinde, ekosistemlerin yeniden örgütlenmesi yatmaktadır. Dinozorların yok oluşu yalnızca "boşluk" yaratmakla kalmamış, aynı zamanda memelilerin daha önce erişemediği kaynaklara ve yaşam alanlarına erişimini mümkün kılmıştır. Ancak artan çeşitlilik yalnızca vücut boyutunun büyümesiyle açıklanamaz; küçük vücutlu memeli sınıflarında da K-Pg sınırında ani ve kalıcı bir tür zenginliği artışı yaşanmıştır. Bu, memelilerin yalnızca dinozorların büyük vücut boyutlarından kurtulmakla kalmayıp, aynı zamanda küçük vücut boyutu nişlerini de daha verimli bir şekilde paylaşabildiklerini (niche packing) göstermektedir. Memelilerin ebeveyn yatırımı ve ontogenetik niş farklılaşması gibi yaşam öyküsü özellikleri, dinozorlara kıyasla aynı ekolojik alanda daha yüksek tür zenginliğine ulaşmalarını kolaylaştırmış olabilir.
Vücut boyutu evrimi de bu tabloyu tamamlar niteliktedir. K-Pg sonrasında fare büyüklüğündeki memelilerden fil boyutlarına ulaşmak, mikroevrimsel ölçekte gözlemlenen hızlardan çok daha yavaş gerçekleşmiştir; bu "makroevrimsel" süreç, yaklaşık 24 milyon nesil almıştır. Denizel ortamda ise balinalar gibi dev formlar, karasal memelilere kıyasla çok daha hızlı büyümüştür (1000 katlık bir boyut artışı için yaklaşık 3 milyon nesil), bu da sucul yaşamın getirdiği farklı fizyolojik kısıtlar ve termoregülasyon gereksinimleriyle açıklanmaktadır. Bu farklı yörüngeler, K-Pg sonrası radyasyonun tek bir "patlama" değil, farklı ekolojik arenalarda farklı hızlarda işleyen çok yönlü bir süreç olduğunu göstermektedir.
Elimizdeki sentez, memelilerin kısa sürede bu denli çeşitlenmesini ve dünyayı "ele geçirmesini" tek bir nedene indirgemenin yanıltıcı olacağını göstermektedir. K-Pg sınırı, memelileri dinozorların baskısından kurtaran bir "ekolojik serbest bırakılma" (ecological release) olayı olarak önemini korumakla birlikte, bu serbest bırakılmanın etkileri, sınır öncesinde başlamış olan çeşitlenme eğilimleri, sınırda işleyen seçici yok oluş filtresi ve sınır sonrasında ekosistemlerin kalıcı olarak yeniden yapılanmasıyla birlikte değerlendirilmelidir. Memeliler dünyayı, boş bir sahneye çıkan oyuncular gibi değil; sahnenin kendisi değişirken, hâlihazırda üzerinde durdukları zemini dönüştürerek devralmışlardır. Bu süreçte morfolojik yenilikler patlamış, beslenme nişleri genomlara kazınmış ve vücut boyutu evrimi, ekolojik fırsatların ve fizyolojik kısıtların diyalektiği içinde şekillenmiştir. Bugünün memeli çeşitliliği, 66 milyon yıl önceki bu çok katmanlı yeniden yapılanmanın doğrudan ve hâlâ süregiden bir sonucudur.
- ^David M Grossnickle, Elis Newham, et al. Therian Mammals Experience An Ecomorphological Radiation During The Late Cretaceous And Selective Extinction At The K–Pg Boundary. (15 Haziran 2016). Alındığı Yer: PubMed Central (PMC) doi: 10.1098/rspb.2016.0256. | Arşiv Bağlantısı
- ^Mathias M Pires, Brian D Rankin, Daniele Silvestro, Tiago B Quental, et al. Diversification Dynamics Of Mammalian Clades During The K–Pg Mass Extinction. (26 Ağustos 2018). Alındığı Yer: PubMed Central (PMC) doi: 10.1098/rsbl.2018.0458. | Arşiv Bağlantısı
- ^Nathan S Upham, Jacob A Esselstyn, Walter Jetz, et al. Molecules And Fossils Tell Distinct Yet Complementary Stories Of Mammal Diversification. (10 Mayıs 2022). Alındığı Yer: PubMed Central (PMC) doi: 10.1016/j.cub.2021.07.012. | Arşiv Bağlantısı
- ^Jonathan J Hughes, Jacob S Berv , Stephen G B Chester, Eric J Sargis, Daniel J Field, et al. Ecological Selectivity And The Evolution Of Mammalian Substrate Preference Across The K–Pg Boundary. (11 Eylül 2021). Alındığı Yer: PubMed Central (PMC) doi: 10.1002/ece3.8114. | Arşiv Bağlantısı
- Bilim Budur!1
- Muhteşem!0
- Tebrikler!0
- Mmm... Çok sapyoseksüel!0
- Güldürdü0
- İnanılmaz0
- Umut Verici!0
- Merak Uyandırıcı!0
- Üzücü!0
- Grrr... *@$#0
- İğrenç!0
- Korkutucu!0
Evrim Ağacı'na her ay sadece 1 kahve ısmarlayarak destek olmak ister misin?
Şu iki siteden biriyle hemen destek olabilirsin:
kreosus.com/evrimagaci | patreon.com/evrimagaci
Çıktı Bilgisi: Bu sayfa, Evrim Ağacı yazdırma aracıyla 20.11.2026 15:42:53 tarihinde oluşturuldu. Evrim Ağacı'ndaki içerikleri birden fazla editör sürekli gözden geçiriyor, güncelliyor ve geliştiriyor. Bu çıktıdan sonraki güncellemeleri görmek ve içeriğin en güncel hâlini okumak için şu adrese git: evrimagaci.org/s/24031
İçerik Kullanım İzinleri: Evrim Ağacı'ndaki yazılı içerikler orijinallerine hiçbir şekilde dokunulmadığı sürece izin alınmaksızın paylaşılabilir, kopyalanabilir, yapıştırılabilir, çoğaltılabilir, basılabilir, dağıtılabilir, yayılabilir, alıntılanabilir. Ancak bu içeriklerin hiçbiri izin alınmaksızın değiştirilemez ve değiştirilmiş hâlleri Evrim Ağacı'na aitmiş gibi sunulamaz. Benzer şekilde, içeriklerin hiçbiri, söz konusu içeriğin açıkça belirtilmiş yazarlarından ve Evrim Ağacı'ndan başkasına aitmiş gibi sunulamaz.
Yorumlar 0