Besinler Solunuma Nasıl Katılır? Karbohidrat, Protein ve Yağlar Nereye Bağlanır?
Yediğiniz Her Lokma Hücre İçinde Aynı Kapıdan mı Geçer?


Bu Makalede Neler Öğreneceksin?
Bu bölümü yapay zekâ hazırlar.- Karbohidratlar, proteinler ve lipitler gibi farklı besin molekülleri, hücrelerde enerji üretimi için glikoliz ve sitrik asit döngüsüne bağlanan katabolik yolaklarla işlenir.
- Hayvanlarda glikojen, kısa süreli enerji depolamak için karaciğer ve kaslarda sentezlenir ve gerektiğinde kan şekeri seviyesini düzenlemek için kullanılır.
- Fotosentez ve hücresel metabolizma evrimleşerek oksijen üretimini mümkün kılmış ve bu sayede canlılar daha verimli enerji üretimi yapan solunuma uyum sağlamıştır.
Besinlerin solunuma katılımı, sindirimle küçük yapı taşlarına ayrılan karbohidrat, yağ ve proteinlerin hücresel solunum tepkimelerine farklı ara basamaklardan bağlanarak enerji üretmesi sürecidir. Hücresel solunum, besinlerdeki kimyasal bağ enerjisini hücrenin doğrudan kullanabileceği ATP moleküllerine dönüştüren temel mekanizmadır. Ne var ki büyük besin molekülleri hücre zarından olduğu gibi geçememektedir. Bu nedenle sindirim sistemi makarna, peynir ve zeytinyağı gibi iri besin yapılarını önce şekerlere, yağ bileşenlerine ve azotlu yapı taşlarına parçalamaktadır. Ardından hücreye giren bu küçük birimler, kimyasal özelliklerine uygun ara kapılardan enerji üretim hattına dahil olmaktadır. Hücreye gelen yapı taşları karbon sayıları ve taşıdıkları fonksiyonel gruplar bakımından birbirinden ayrılmaktadır, dolayısıyla sitoplazmada ve mitokondride görev yapan enzimler her besin grubunu kendi atom dizilimine uygun bir ara basamaktan yakalayarak ortak solunum yoluna bağlamaktadır.
İnsan hücrelerinin enerji üretmek için sadece şeker kullandığı düşüncesi oldukça yaygın bir yanılgıdır.[14] Oysa metabolik işleyiş son derece esnektir ve dokular kullandıkları yakıtı ihtiyaca göre anlık olarak değiştirebilmektedir. Bu sayede hücrelerimiz gün içinde gerek besinlerle alınan gerekse dokularda depolanan üç besin grubunu eşzamanlı ya da dönüşümlü biçimde kullanmaktadır. Her yapı taşının solunum hattına katıldığı basamak ise bu molekülden elde edilecek enerji miktarını ve geride kalacak yan ürünleri belirlemektedir. Bu nedenle besin gruplarının bu ortak enerji yolunda nasıl birleştiğini kavramak, hücrenin yakıt ekonomisini bütünüyle anlamamıza yardımcı olmaktadır. Bu yazıda üç ana besin grubunun yapı taşlarını, solunum hattına hangi ara basamaklardan girdiklerini, enerji verimlerini ve dokuların yakıt seçimini adım adım ele alacağız.
Besin Grupları ve Yapı Taşları
Yediğimiz besinlerin hücresel solunum tepkimelerine katılabilmesi için önce sindirim kanalında parçalanması gerekmektedir. Bu hazırlık aşaması zorunludur, çünkü ekmekteki uzun şeker zincirleri, etteki büyük protein yumakları veya tereyağındaki yağ damlacıkları hücre zarını doğrudan aşamayacak kadar iri moleküllerdir. Dolayısıyla sindirim enzimleri bu dev yapıları kimyasal bağlarından keserek kan dolaşımıyla dokulara taşınabilen küçük yapı taşlarına ayırmakta, böylece her hücreye karmaşık besin karışımları yerine belirli küçük moleküllerden oluşan ortak bir hammadde havuzu sağlamaktadır. Hücre zarından içeri alınan yapı taşları sitoplazmadaki hazırlık enzimleri tarafından karşılanarak enerji üretim basamaklarına yönlendirilmekte, başka bir deyişle sindirim kanalı büyük besinleri küçültürken farklı yiyecekleri hücrenin tanıyabileceği ortak kimyasal birimlere tercüme etmektedir.
Hücreye ulaşan bu hammaddeler, her biri farklı atom dizilimine sahip üç temel besin grubunda toplanmaktadır. Karbohidratlar ve yağlar yapılarında sadece karbon, hidrojen ve oksijen atomları bulundururken proteinlerin yapı taşlarında bu üç elemente ek olarak azot atomu da yer almaktadır. İşte bu yapısal farklar, hangi yapı taşının solunum hattına doğrudan girebileceğini ve hangisinin önce ön işlemden geçmesi gerektiğini belirlemektedir. Örneğin amino asitlerdeki azotlu kısmın süreç başında yapıdan ayrılması zorunlu olduğundan, protein yapı taşları solunuma girmeden önce özel bir ayıklama adımından geçirilmektedir.
Karbohidratlar: Şekerler, Nişasta ve Glikojen
Günlük beslenmede karbohidrat içeren başlıca besinlere tam buğday ekmeği, yulaf ezmesi, pirinç, makarna ve şekerli atıştırmalıklar ile içecekler örnek verilebilir.[1] Karbohidratlardaki bu şekerler, moleküllerinde kaç şeker birimi bulunduğuna göre gruplandırılmaktadır. Buna göre yapısında tek bir şeker birimi barındıran en küçük karbohidratlara monosakkarit adı verilirken, iki şeker biriminin birbirine bağlanmasıyla oluşan şekerler disakkarit olarak adlandırılmaktadır.[2] Beslenmede öne çıkan üç temel monosakkarit olan glikoz, fruktoz ve galaktoz altı karbonlu şekerler (heksozlar) grubunda yer almakta ve hücreye girdiklerinde altı karbonluk birer iskelet taşımaktadır. Fakat atomlarının uzaydaki dizilişi farklı olduğu için hücre bu üç şekeri aynı enzimle karşılamamaktadır.
Çift birimden oluşan disakkaritler, bu altı karbonlu monosakkaritlerin ikili kombinasyonları halinde kurulmaktadır. Örneğin sofra şekeri olarak bilinen sakkaroz bir glikoz ile bir fruktoz biriminden, arpa şekeri olarak anılan maltoz iki glikoz biriminin birleşmesinden, süt şekeri olan laktoz ise bir galaktoz ve bir glikoz biriminden oluşmaktadır. Ancak disakkaritler solunuma bütün halinde katılamamaktadır, çünkü bağırsak epitelinden bu boyutta geçmeleri mümkün değildir. Bu nedenle sindirim sürecinde bu birimler arasındaki kimyasal bağın kesilmesi zorunludur. Söz gelimi laktozun galaktoz ile glikoza parçalanmasını sağlayan laktaz enzimi yetersiz olduğunda laktoz intoleransı gelişmektedir. Benzer şekilde sakkaroz ve maltoz da bağırsak yüzeyinde kendi monosakkarit birimlerine ayrıldıktan sonra kana geçerek hücrelere ulaşmaktadır.
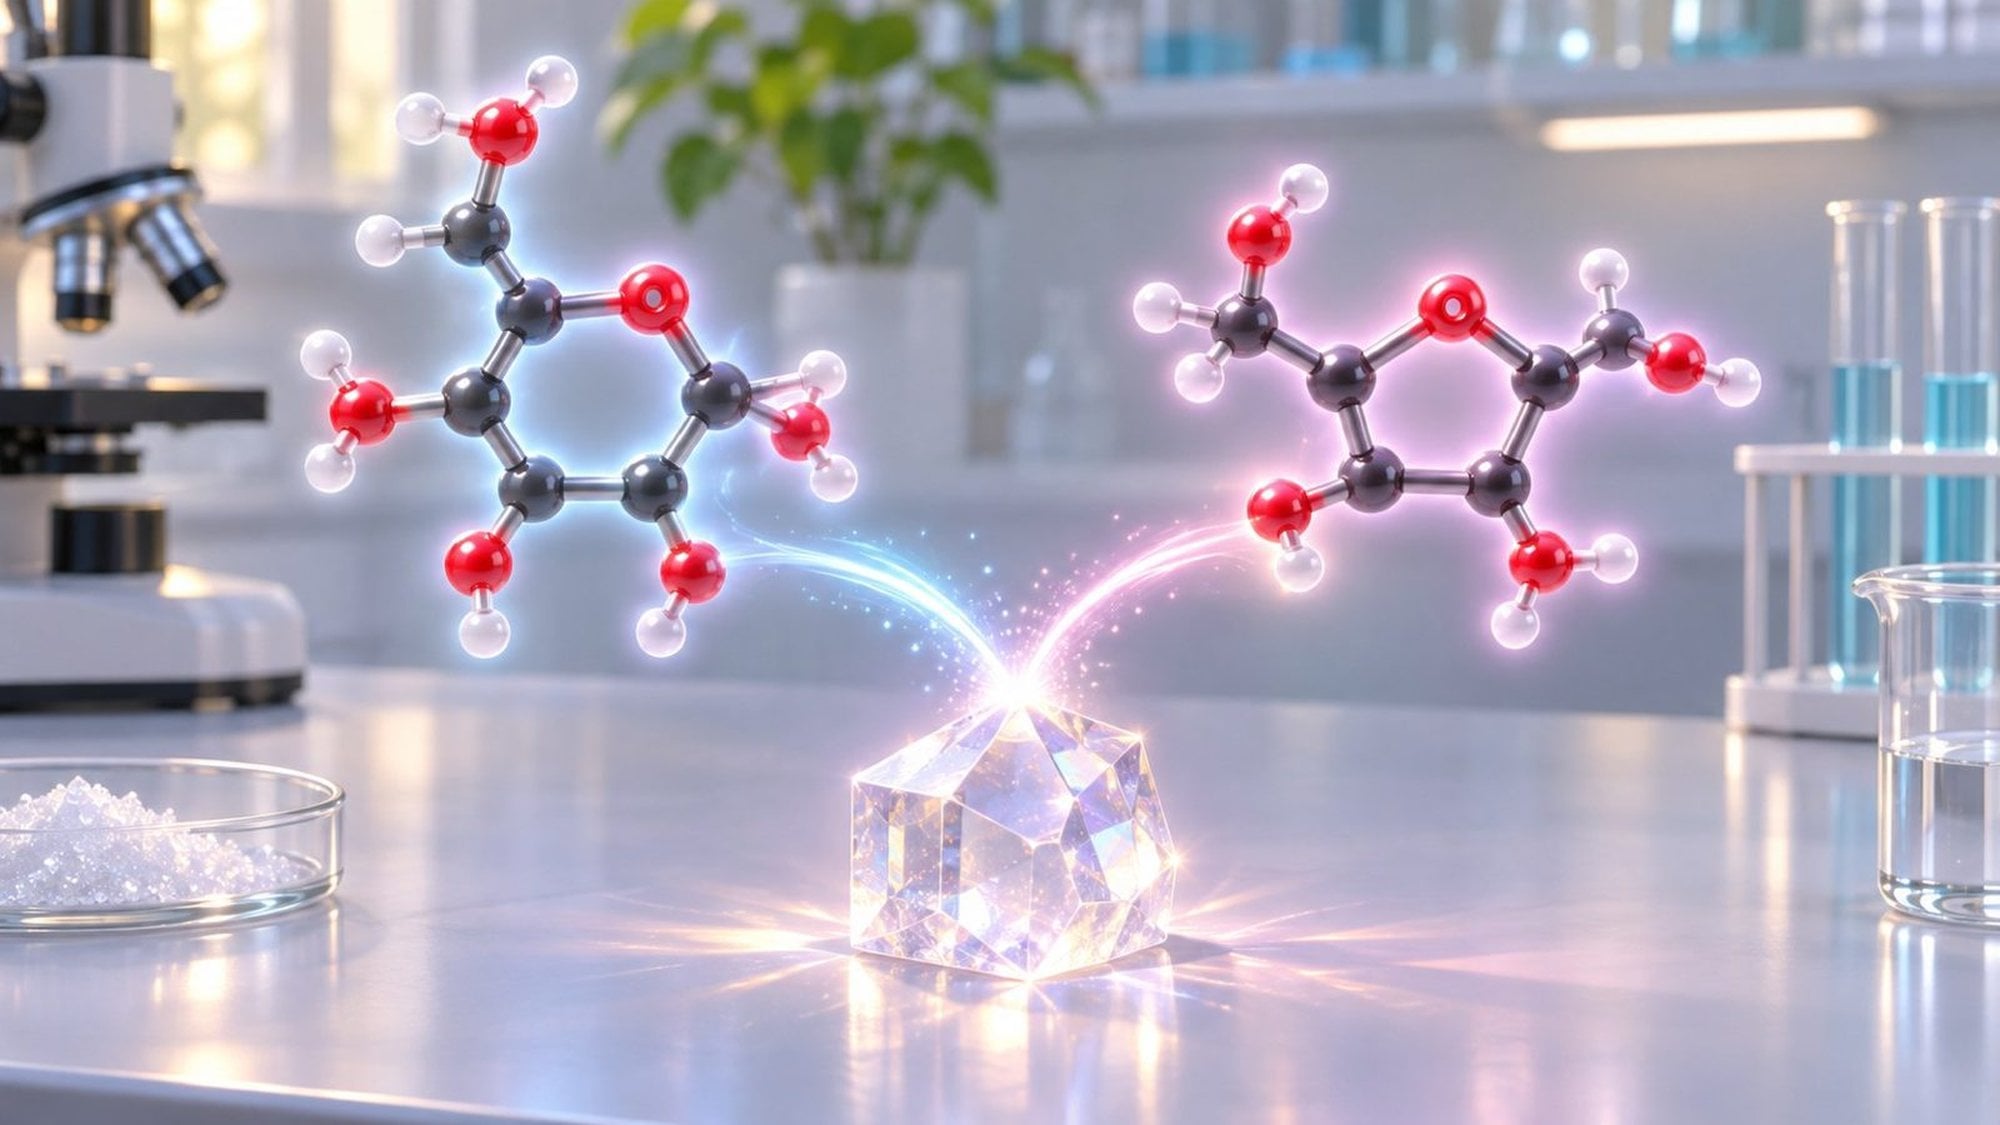
Canlılar anlık olarak kullanmadıkları fazla glikoz birimlerini birbirine ekleyerek büyük depo molekülleri halinde saklamaktadır. Depolama biçimi canlı grupları arasında farklılık gösterse de kullanılan temel şeker birimi değişmemektedir. Söz gelimi nişasta bitkilerde glikozun depo biçimi olarak tahıllar ile yumrularda bolca bulunurken, hayvanlardaki karbohidrat depo biçimi bitkilerden farklı olarak glikojen molekülüdür. İster bitkisel nişasta sindirilsin ister hayvan hücresindeki glikojen depoları yıkılsın, açığa çıkan altı karbonlu birimler solunum hattının ilk bölümüne yönlendirilmektedir. Böylelikle farklı karbohidrat kaynakları hücrede aynı ortak hatta buluşmaktadır. Yani besinlerle alınan nişasta bağırsakta serbest glikoza parçalanıp hücreye girerken, kas ve karaciğerdeki glikojen hücre içinde doğrudan fosfatlı şeker birimlerine kesilerek aynı solunum yoluna dahil olmaktadır.
Proteinler ve Amino Asitler
Besinlerdeki başlıca protein kaynakları arasında kuru yemişler, baklagiller, yağsız süt, yumurta akı ve et bulunmaktadır. Proteinler hücreye yapısal hammadde sağlamaktadır, dahası enzimlerin ve taşıyıcıların ana gövdesini oluşturmaktadır. Yiyeceklerle alınan büyük protein zincirleri amino asit adı verilen çok daha küçük birimlerin uç uca dizilmesiyle oluştuğundan, sindirim sistemi proteinleri bu tekil amino asit birimlerine kadar parçalayarak kan dolaşımına vermekte ve hücrelere yeniden kullanabilecekleri temel yapı taşları sunmaktadır. Besinlerle alınan veya hücrede ömrünü tamamlayan proteinler amino asitlere parçalanmakta, ardından açığa çıkan bu birimler ilk sırada yeni proteinlerin yapımında değerlendirilmektedir. Bununla birlikte hücrenin enerji gereksinimi yükseldiğinde ya da besinlerle ihtiyaçtan fazla protein alındığında bu yapı taşları solunum tepkimelerine de yönlendirilmektedir.
Proteinleri karbohidratlardan ve yağlardan ayıran en belirleyici kimyasal özellik yapılarındaki element çeşitliliğidir. Yani karbohidratlar ve yağlar sadece karbon, hidrojen ve oksijen atomlarından kurulurken, proteinler bu üç elementin yanında her amino asidin yapısında özel bir fonksiyonel grup halinde bulunan azot (N) da içermektedir.[2] Amino asitlerin solunum tepkimelerine katılabilmesi için yapılarındaki azotlu grubun öncelikle uzaklaştırılması gerekmektedir. Bu nedenle hücre, bir amino asidi enerji üretimi için kullanacağında iki adımlı bir yol izlemektedir. Buna göre ilk adımda azotlu grubu molekülden güvenli şekilde ayırmakta, ardından geriye kalan karbon gövdesini enerji üretim hattına yönlendirmektedir.
Yağlar ve Trigliseritler
Besinlerle aldığımız başlıca yağ kaynakları arasında sıvı yağlar, tereyağı ve yumurta sarısı yer almaktadır. Yağlar yüksek yoğunluklu enerji taşımakta ve dokularda çok az yer kaplamaktadır. Hem yiyeceklerdeki hem de vücut depolarındaki yağların temel kimyasal biçimi olan trigliserit molekülü, üç ayrı yağ asidi zincirinin üç karbonlu tek bir gliserol molekülüne bağlanmasıyla oluşmaktadır. Dolayısıyla bir trigliserit yıkıldığında, suda çözünebilen üç karbonlu bir gliserol molekülü ile uzun hidrokarbon zincirlerine sahip üç yağ asidi açığa çıkmaktadır. Bunun sonucunda yapıları birbirinden farklı olan bu iki bileşen, hücre içinde solunum yolunun iki ayrı basamağına yönlendirilmektedir.
Besinlerle alınan trigliseritlerin sindirim kanalından emilebilmesi için önce kısmen parçalanması gerekmektedir. Bütün trigliserit bağırsak zarından geçememektedir, çünkü molekül yapısı fazla büyüktür. Bu nedenle bağırsak lümeninde görev yapan lipaz enzimleri her bir trigliserit üzerinde iki kez su kullanarak iki yağ asidini koparmakta ve geride tek bir yağ asidi taşıyan monoasilgliserit bırakmaktadır.[4] Bağırsak duvarını geçen bu parçalar hücre içinde yeniden trigliserit haline getirildikten sonra dolaşıma verilmekte, sonunda vücutta adiposit adı verilen özelleşmiş yağ hücrelerinde depolanmaktadır. Üstelik karbohidrat depoları sınırlı düzeyde kalırken, adipositlerde bulunan trigliserit damlacıkları çok yüksek miktarda kimyasal enerjiyi uzun süre depolayabilmektedir.
Ancak adipositlerde tutulan bu yağ depoları hareketsiz birer birikim değildir. Vücuttaki dokuların enerji gereksinimine bağlı olarak sürekli biçimde düzenlenmektedir. Uygun kimyasal sinyalleri alan adipositler depoladıkları yağı gliserol ve serbest yağ asitlerine parçalamaya başlamakta, böylece gliserol doğrudan kana karışarak karaciğer gibi dokulara kolayca ulaşmaktadır. Serbest yağ asitleri ise suda çözünemediğinden kan dolaşımında serum albümini adlı taşıyıcı proteine bağlanarak ilerlemekte ve kas ile karaciğer hücrelerine bu şekilde taşınmaktadır.
Hücresel Solunumun Ortak Yolu
Üç besin grubundan gelen yapı taşlarının tamamı, hücre içinde katabolizma adı verilen yıkım süreçlerine girmektedir. Katabolik bir tepkime veya yol, büyük molekülleri daha küçük parçalara ayırarak hücreye enerji sağlamaktadır. Özellikle hücresel solunumda bu yıkım süreci, karbon bağlarındaki elektronların aşamalı biçimde koparılarak özel taşıyıcı koenzimlere devredilmesi esasına dayanmaktadır. Biz bu yazıda sadece besin gruplarının bu ortak yola nasıl katıldığına odaklanacağız (basamakların kendi içindeki moleküler ayrıntılarını 24103 ve 9197 numaralı yazılarımızda inceleyebilirsiniz). Elektronların besinlerden alınıp taşıyıcılara aktarılması birbirine bağlı yükseltgenme (İng: "oxidation") ve indirgenme (İng: "reduction") tepkimeleriyle gerçekleşmektedir. Buna göre bu tepkimelerde yükseltgenen molekül en az bir elektron verirken, indirgenen molekül en az bir elektron almaktadır.
Besin yapı taşları yükseltgendikçe koparılan elektronlar NAD⁺ ve FAD koenzimlerine aktarılmakta, bu sayede bu moleküller indirgenerek yüksek enerjili NADH ve FADH₂ elektron taşıyıcılarına dönüşmektedir. Sitoplazmada ve mitokondri matriksinde farklı besinlerden toplanan bütün bu elektronlar, sonunda tek bir ortak zar sistemine teslim edilerek ATP üretiminde kullanılmaktadır. Bu yönüyle hücresel solunum yolu, farklı kolları aynı yatakta buluşan bir akarsu sistemine benzetilebilir. Yani şekerler, gliserol, yağ asitleri ve amino asitlerin karbon iskeletleri ilk adımlarda kendilerine özgü enzimlerle işlenirken, alt basamaklara inildikçe ortak ara ürünlerde birleşerek aynı elektron taşıma zincirine elektron sağlamaktadır.
Glikoliz ve Piruvatın Oksidasyonu
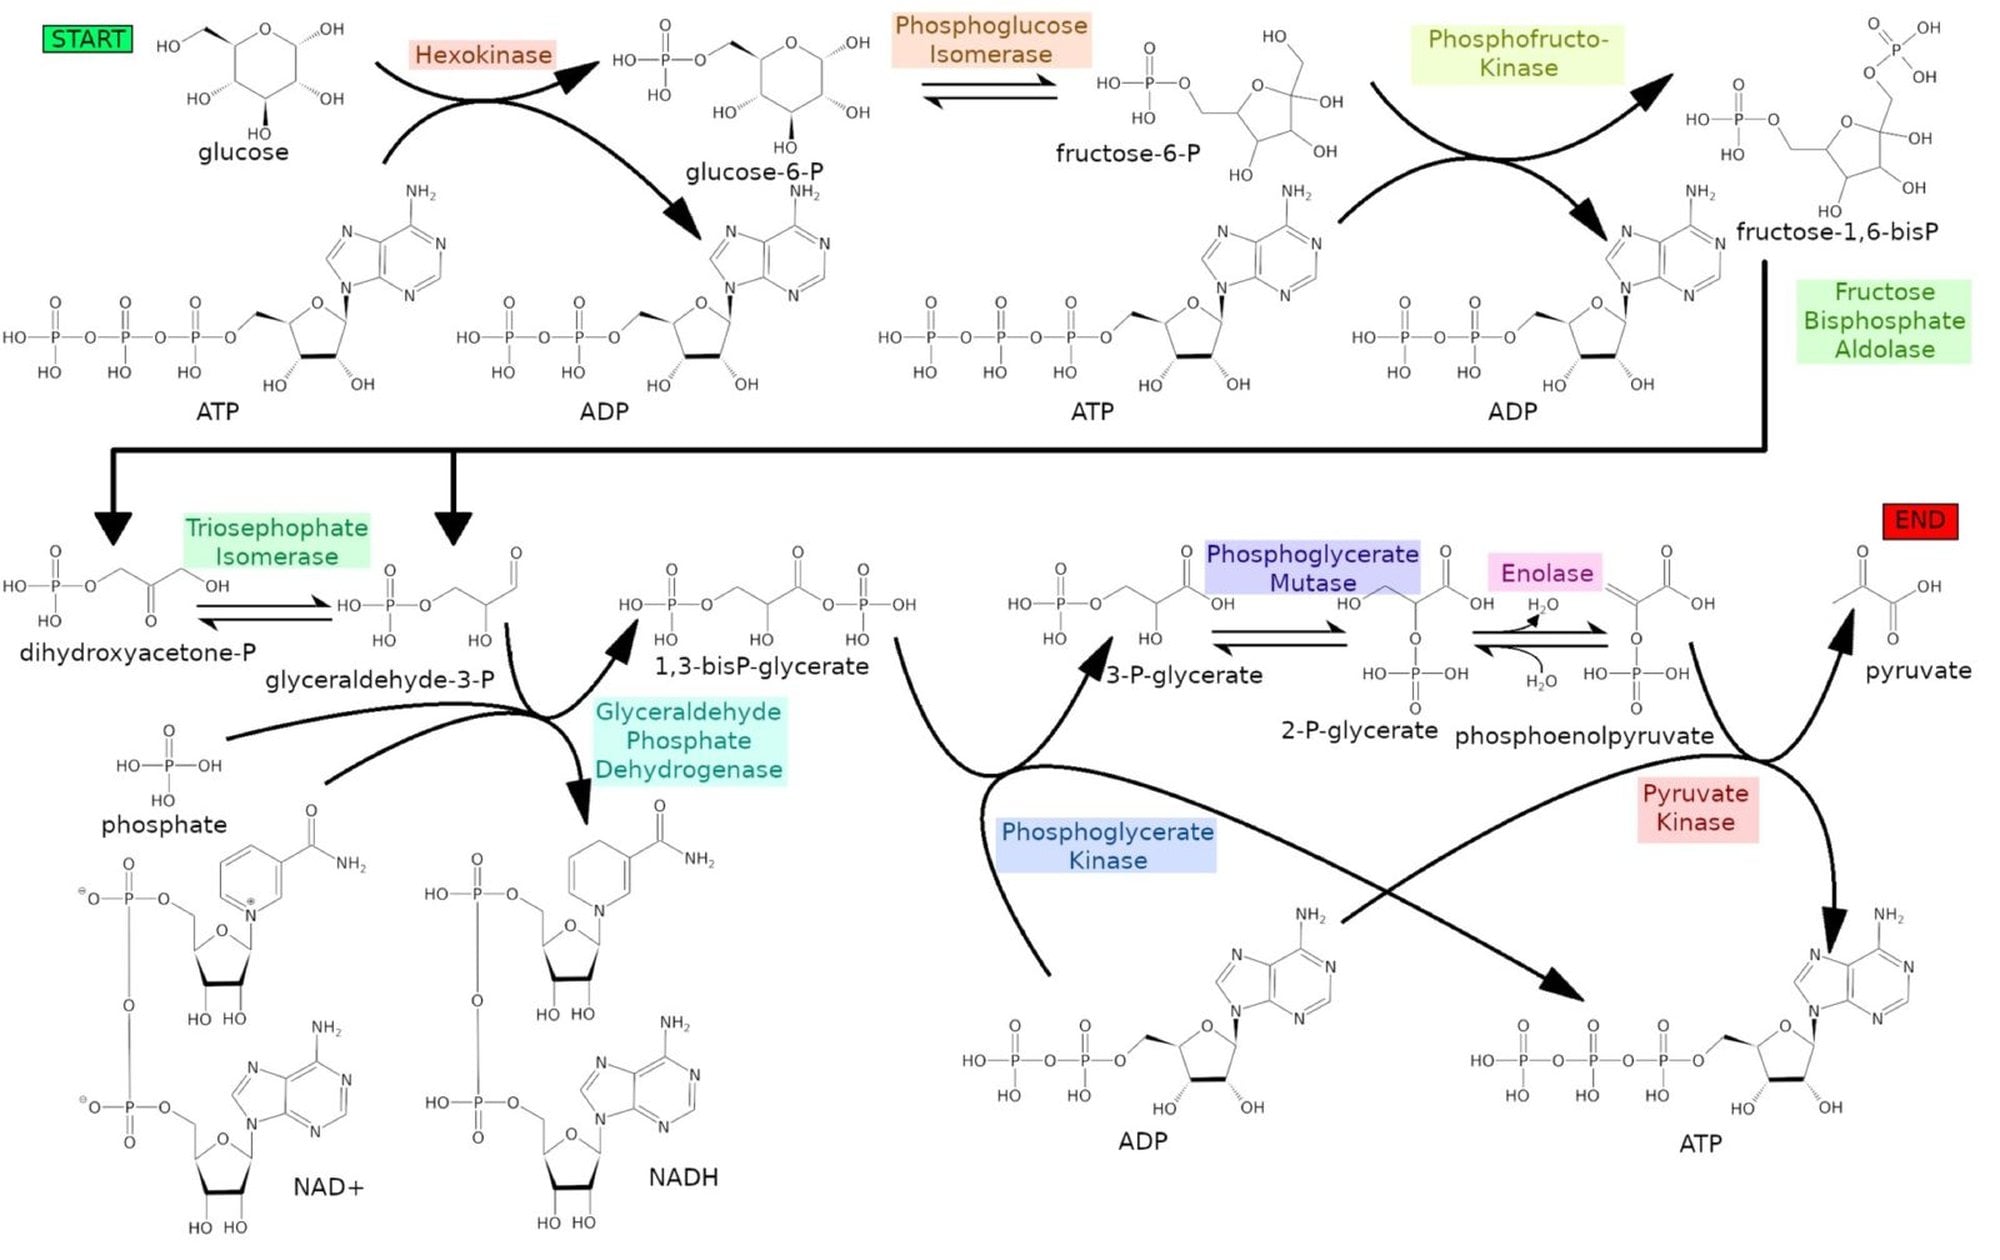
Şekerlerin solunum hattına girdiği ilk ana cadde glikoliz sürecidir ve glikoliz enzimlerinin tamamı hücrenin sitoplazmasında bulunmaktadır. Altı karbonlu glikoz sitoplazmaya ulaştığında, ilk fosforillenme adımında heksokinaz enzimi ATP'den aldığı bir fosfat grubunu şekere bağlayarak glikoz-6-fosfat üretmektedir. Oluşan bu fosfatlı bileşik hücre zarının çift tabakasından dışarı sızamadığından, glikoz hücre içinde alıkonulmaktadır. Bu noktada hücreye hapsedilen glikoz-6-fosfat glikolizin ikinci basamağında kendi izomeri olan fruktoz-6-fosfata dönüştürülmekte, hemen ardından fosfofruktokinaz-1 (PFK-1) enzimi devreye girerek fruktoz-6-fosfatın bir ATP daha kullanılmasıyla ikinci kez fosforillenmesini katalizlemektedir.
PFK-1 enziminin katalizlediği bu ikinci fosforillenme basamağı, glikoliz akışının hızını denetleyen ana kontrol kapısıdır. Örneğin hücrede ATP bollaştığında bu kapı yavaşlamakta, enerji azaldığında ise hızla açılmaktadır. Başlangıçtaki bu iki ATP'lik enerji yatırımının ardından altı karbonlu şeker ikiye bölünerek hasat basamağındaki tepkimelerle her biri üç karbonlu iki piruvat molekülüne dönüştürülmekte, sonuçta bir glikoz molekülünden net 2 ATP ile 2 NADH elde edilmektedir.
Çözümlü örnek 1: Glikolizde bir glikoz molekülünün parçalanmasında kaç ATP harcanır ve karbon dengesi nasıl kurulur?
Verilenler: Altı karbonlu molekülünün parçalanmasıyla oluşan üçer karbonlu molekülü, hasat basamağında üretilen toplam , süreç sonunda elde edilen ve kazancı.[8]
İstenen: Glikolizin yatırım basamağında harcanan ATP miktarı () ve tepkimenin başlangıç ile bitiş arasındaki karbon korunumu.
1. adım: Altı karbonlu tek bir glikoz molekülü iki parçaya ayrıldığı için oluşan piruvat moleküllerinin sayısı karbon içerikleriyle çarpılarak ürünlerdeki toplam karbon sayısı doğrulanmaktadır:
2. adım: Hasat basamağında üretilen toplam ATP sayısından net ATP çıktısı çıkarılarak başlangıçtaki yatırım basamağında harcanan ATP miktarı hesaplanmaktadır:
Sonuç: Altı karbonlu bir glikoz molekülü karbon kaybı olmaksızın üçer karbonlu iki piruvat molekülüne ayrılırken yatırım basamağında harcanmakta, hasat basamağındaki üretimiyle birlikte hücreye ve kalmaktadır.
Sitoplazmada oluşan üç karbonlu piruvat, hücrenin oksijen durumuna göre yoluna devam etmektedir. Ortamda oksijenli solunum için yeterli oksijen bulunduğunda, sitoplazmada oluşan piruvat mitokondriye geçmekte, böylece glikoliz ile mitokondrideki döngüyü birbirine bağlayan piruvatın oksidasyonu (İng: "pyruvate oxidation") basamağına katılmaktadır. Piruvat dehidrojenaz kompleksinin yürüttüğü bu basamakta, dekarboksilasyonla piruvatın üç karbonundan biri CO₂ biçiminde yapıdan koparılmaktadır. Kalan iki karbonlu asetil birimi koenzim A (CoA) ile bağlanarak asetil-CoA (İng: "acetyl-CoA") molekülüne dönüşmekte ve eşzamanlı elektron aktarımıyla NADH sentezlenmektedir. Söz konusu tepkime tek yönlü olduğundan, ortaya çıkan asetil-CoA yeniden piruvata dönüştürülememektedir.
Krebs Döngüsü ve Elektron Taşıma Sistemi
Mitokondride oluşan iki karbonlu asetil-CoA, Krebs döngüsü olarak da bilinen sitrik asit döngüsüne girmektedir. Bu döngü, şekerlerin, yağ asitlerinin ve amino asitlerin yıkım ürünlerinin CO₂ moleküllerine yükseltgenmesinde tüm besin gruplarını buluşturan ortak bir yoldur.[6] Tek bir besin grubuna bağlı olmayan asetil-CoA hücrede glikoliz ürünü piruvat, yağ asitlerinin beta oksidasyonu, keton cisimleri ve amino asitlerin yıkımı olmak üzere dört ayrı kaynaktan üretilebilmektedir. Döngünün ilk adımında iki karbonlu asetil-CoA dört karbonlu oksaloasetat (OAA) ile birleşerek altı karbonlu sitratı oluşturmakta, izleyen halkasal tepkimelerde ise karbonlar aşamalı olarak yapıdan uzaklaştırılmaktadır.
Bu halkasal tepkime dizisini Hans Adolf Krebs keşfetmiştir. Krebs'in aktardığına göre döngü düşüncesini ortaya çıkaran gözlemler, 1937 yılının mart ile haziran ayları arasında Sheffield'daki laboratuvarında gerçekleştirilmiştir. Döngünün işleyişini aydınlatan başlıca deneyler ise özellikle güvercin göğüs kası ve güvercin karaciğeri üzerinde yürütülmüştür.[13] Krebs döngüsünün her turunda iki karbonlu asetil birimi bütünüyle CO₂ halinde salınırken ayrılan yüksek enerjili elektronlar üç NADH ve bir FADH₂ taşıyıcısına aktarılmakta, ayrıca substrat düzeyinde bir GTP (ATP eşdeğeri) sentezlenmektedir.
Krebs döngüsünde besin karbonları CO₂ olarak ayrılırken toplanan elektronlar NADH ve FADH₂ taşıyıcılarıyla solunumun son evresine iletilmektedir. Özellikle ökaryot hücrelerde ATP üretiminin büyük kısmı mitokondrideki oksidatif fosforilasyon aşamasında gerçekleşmektedir. Bu aşamayı üstlenen elektron taşıma sistemi ise mitokondrinin iç zarında yer almaktadır. Taşıyıcılardan alınan elektronlar bu zar boyunca dizili proteinlerden geçerken zarlar arası bölgeye proton pompalanmakta, elektronlar en sonda oksijen ve protonlarla birleşerek H₂O oluştururken iç zarın iki yakasında biriken proton farkı da ATP sentaz kompleksini çalıştırarak ADP ile inorganik fosfattan ATP sentezletmektedir. Mitokondri iç zarını protonlara geçirgen kılan kimyasallar ise protonların zardan sızmasına yol açmakta, böylece elektron aktarımı ile ATP üretimi arasındaki eşleşmeyi bozmaktadır.[7]
Karbohidratlar Glikolize Nereden Girer?
Besinlerle aldığımız veya dokularda depoladığımız karbohidratların tamamı solunum hattına glikoliz basamaklarından bağlanmaktadır. Bununla birlikte söz konusu şekerlerin tamamı glikolize en üstteki serbest glikoz basamağından katılmamaktadır. Örneğin sakkarozun yıkımından gelen fruktoz, laktozun yıkımından gelen galaktoz, besinlerdeki mannoz ve hayvan hücrelerindeki depo glikojen, glikoliz zincirine kendilerine özgü enzimlerle hazırlanarak farklı ara basamaklardan katılmaktadır. Farklı monosakkaritler birkaç hazırlık adımının ardından glikoz-6-fosfat, fruktoz-6-fosfat veya üç karbonlu trioz fosfatlar gibi glikolizin mevcut ara ürünlerine dönüştürülmekte, böylece büyük bir enzim tasarrufu sağlanmaktadır.
Öte yandan glikolizin sitoplazmadaki bu ara basamakları sadece yıkım yönünde çalışan tek yönlü bir hat değildir. Hatta açlık durumunda vücudun yeni glikoza gereksinim duyması nedeniyle bu hat ters yönde de çalıştırılabilmektedir. Hücrenin yeni glikoz ürettiği bu anabolik yola glukoneogenez adı verilmekte olup süreçteki on bir enzimden dokuzu glikoliz enzimleri gibi sitoplazmada görev yaparken, kalan iki enzim sitoplazma dışında bulunmaktadır. Dolayısıyla şekerlerin veya diğer besinlerden gelen uygun parçaların glikolize bağlandığı ara ürünler, hücrenin ihtiyacına göre iki farklı yöne gidebilmektedir. Buna göre enerji gerektiğinde bu ara ürünler aşağıya doğru yıkılarak piruvata çevrilirken kan şekerinin desteklenmesi gerektiğinde karaciğer hücreleri aynı sitoplazmik kavşakları yukarıya doğru çalıştırarak glukoneogenez yoluyla yeni glikoz sentezlemektedir.
Glikojenden Glikoz-1-Fosfata
Hücre kendi içindeki glikojen deposunu enerji için kullanacağında, serbest glikozu doğrudan parçalamak yerine fosfatlı bir kesim işlemi uygulamaktadır. Bu adımda görev alan glikojen fosforilaz enzimi, glikojen zincirindeki bağı keserek glikoz-1-fosfat birimlerini ayırmaktadır. Üstelik şekere bağlanan fosfat grubu ATP harcanarak değil, doğrudan sitoplazmadaki serbest inorganik fosfat kullanılarak eklenmektedir.[3] Bu yolla glikozidik bağdaki enerji fosfatlı şeker molekülünde muhafaza edilmektedir.
Hücreye dışarıdan giren serbest bir glikoz molekülü için heksokinaz adımında bir ATP tüketilmektedir. Oysa glikojen yıkımında glikoz-1-fosfat eldesi sırasında ATP harcanmadığından hücre önemli bir enerji tasarrufu elde etmektedir. Açığa çıkan glikoz-1-fosfat, fosfoglukomutaz enziminin etkisiyle doğrudan glikoz-6-fosfata dönüştürülebilmektedir. Başka bir deyişle bu tepkimede fosfat grubunun sadece şeker iskeleti üzerindeki konumu değişmekte ve bu aktarım molekülün ana glikoliz hattına katılmasını sağlamaktadır. Bunun sonucunda depodan gelen şeker birimi başlangıçtaki ilk ATP faturasını ödemeden glikolizin ikinci basamağına hazır halde bağlandığından, hücre içi glikojen deposundan gelen her glikoz birimi kan dolaşımından giren serbest glikoza kıyasla hücreye fazladan bir net ATP kazandırmaktadır.
Fruktoz, Galaktoz ve Mannoz
Süt şekeri olan laktozun sindiriminden gelen galaktoz, hücreye girdikten sonra dört adımlık özel bir hazırlık yoluyla glikolize bağlanmaktadır. Besinlerle alınan galaktozun glikolize hazırlanmasındaki ilk dönüşüm, galaktokinaz enziminin katalizlediği galaktoz-1-fosfat oluşumudur. Oluşan galaktoz-1-fosfat özel bir dönüşüm çevrimine girerek her turda bir glikoz-1-fosfat açığa çıkarmakta, böylece bu molekül de tıpkı glikojen yıkımında olduğu gibi fosfoglukomutaz tarafından glikoz-6-fosfata çevrilerek glikolize katılmaktadır. Bir diğer altı karbonlu monosakkarit olan mannoz ise ilk olarak heksokinaz aracılığıyla mannoz-6-fosfata fosforillenmekte, sonrasında fosfomannoizomeraz enziminin yürüttüğü tepkimeyle fruktoz-6-fosfata çevrilerek glikoliz yoluna girmektedir.
Meyvelerden veya sakkarozun sindiriminden gelen serbest fruktoz ise dokuya göre glikolize iki ayrı yoldan katılabilmektedir. İlk yolda serbest fruktoz, doğrudan heksokinaz enzimiyle fruktoz-6-fosfata fosforillenerek PFK-1 kontrol basamağının hemen üzerinden glikolize dahil olabilmektedir. İkinci yolda ise fruktokinaz enzimi fruktozun birinci karbonuna fosfat ekleyerek fruktoz-1-fosfat üretmekte, ardından fruktoz-1-fosfat aldolaz enzimi bu bileşiği keserek dihidroksiaseton fosfat (DHAP) ve gliseraldehit oluşturmaktadır. Açığa çıkan gliseraldehit, trioz kinaz enzimi tarafından fosforillenerek gliseraldehit-3-fosfat molekülüne dönüştürülmektedir.[3] Bunun sonucunda oluşan bu üç karbonlu ürünler PFK-1 kontrol noktasının altındaki basamağa bağlandığından, PFK-1 kapısı glikoz akışını frenlese dahi fruktokinaz rotasından gelen fruktoz karbonları denetimi aşarak glikolize girmeyi sürdürmektedir.
Yağların İki Ayrı Giriş Kapısı
Karbohidratların tüm çeşitleri glikolizin kendisine bağlanırken, yağların temel birimi olan trigliserit parçalandığında solunum hattına iki ayrı kapıdan girmektedir. Adipositlerden ya da besinlerden sağlanan bir trigliserit parçalandığında serbest kalan üç karbonlu gliserol sitoplazmada glikolizin ara basamağına girmekte, aynı yapıdan kopan üç uzun yağ asidi zinciri ise mitokondriye geçip beta oksidasyonla ikişer karbonlu asetil-CoA birimlerine bölünerek Krebs döngüsüne katılmaktadır. Yağların bu iki ayrı kapıdan girişi, hayvan hücrelerinin yağdan şeker üretme kapasitesini kesin bir sınırla belirlemektedir. Yani glikolize giren üç karbonlu gliserol glukoneogenez yoluyla yeni glikoza çevrilebilirken, yağ asitlerinden gelen asetil-CoA birimleri piruvatın oksidasyonu tek yönlü olduğu için glikoza dönüştürülememektedir.
Hayvanlar glioksilat döngüsü adı verilen özel yan yolu çalıştırmadıkları için asetil-CoA moleküllerinden net miktarda glikoz üretememektedir.[6] Krebs döngüsüne giren her iki karbonlu asetil birimine karşılık döngüde iki molekül CO₂ dışarı atılmakta, böylece glukoneogeneze aktarılacak fazladan bir oksaloasetat birikimi oluşmamaktadır. Buna karşılık bitkilerde ve bakterilerde glioksilat döngüsü bulunmaktadır. Söz konusu döngü karbondioksit çıkışı olan adımları devre dışı bırakarak iki karbonlu yağ yıkım ürünlerinden net oksaloasetat ve glikoz üretilmesine imkan tanımaktadır. Bu sayede çimlenen tohumlar henüz yaprak açıp fotosentez yapamadıkları toprak altı evrede glioksilat döngüsünü kullanarak depolanmış yağlardan glikoz yapabilirken, insan hücrelerinde yağların sadece küçük gliserol kısmı şekere dönüşebilmekte ve yağ asitleri sadece enerji veya keton cismi üretiminde kullanılmaktadır.
Gliserolün Glikolize Katılması
Yağ yıkımından gelen üç karbonlu gliserol, karbon sayısı ve yapısı bakımından glikolizin ortasındaki üç karbonlu şeker fosfatlara oldukça benzemektedir. Bu sayede gliserol, sitoplazmada kolayca dihidroksiaseton fosfata (DHAP) dönüştürülerek glikoliz yoluna doğrudan girebilmektedir. Dönüşüm iki ardışık enzimle gerçekleşmektedir. İlk adımda gliserol bir kinaz enzimi yardımıyla fosforillenip gliserol-3-fosfata çevrilmekte, ardından gliserol-3-fosfat dehidrojenaz enzimi bu molekülü tersinir bir tepkimeyle DHAP'a dönüştürmektedir.
Gliserol-3-fosfatın DHAP molekülüne dönüştüğü bu basamak bir yükseltgenme tepkimesidir, dolayısıyla koparılan elektronlar NAD⁺ koenzimine aktarılarak NADH üretilmektedir. Ortaya çıkan DHAP, hücrede enerji gereksinimi olduğunda glikolizin hasat adımlarını izleyerek piruvata dönüşmekte, açlık durumunda ise karaciğerde glukoneogenez hattında yukarı yönlü ilerleyerek yeni glikoz sentezine girmektedir. Benzer şekilde hücrenin yağ depolayacağı koşullarda da DHAP aynı enzim aracılığıyla gliserol-3-fosfata indirgenip yeni trigliseritlerin ana iskeletini kurmaktadır. Yani üç karbonlu bu küçük kavşak, karbohidrat metabolizması ile yağ metabolizmasını sitoplazmada doğrudan birbirine bağlamaktadır.
Beta Oksidasyon
Yağların asıl enerji yükünü taşıyan uzun yağ asidi zincirlerinin hücrede nasıl parçalandığı, yirminci yüzyılın başında yapılan klasik bir deneyle aydınlatılmıştır. Beta oksidasyonun keşfi, konuya ilişkin klasik deneylerini 1904'te yayımlayan Georg Franz Knoop'a atfedilmektedir.[9] Knoop, uç kısmına fenil grubu bağlanmış tek ve çift karbon sayılı yağ asitlerini (omega-fenilvalerik asit ve omega-fenilbütirik asit gibi bileşikleri) köpeklere yedirdikten sonra hayvanların idrarlarını incelemiş, böylelikle bıraktıkları son ürünleri karşılaştırarak yağ asidi metabolizmasının iki karbonlu parçaların art arda uzaklaştırılmasıyla ilerlediği sonucunu çıkarmıştır. Kesim işlemi karboksil ucundan sayıldığında ikinci karbon olan beta karbonu üzerinden gerçekleşmekte, dolayısıyla yola beta oksidasyon adı verilmektedir.
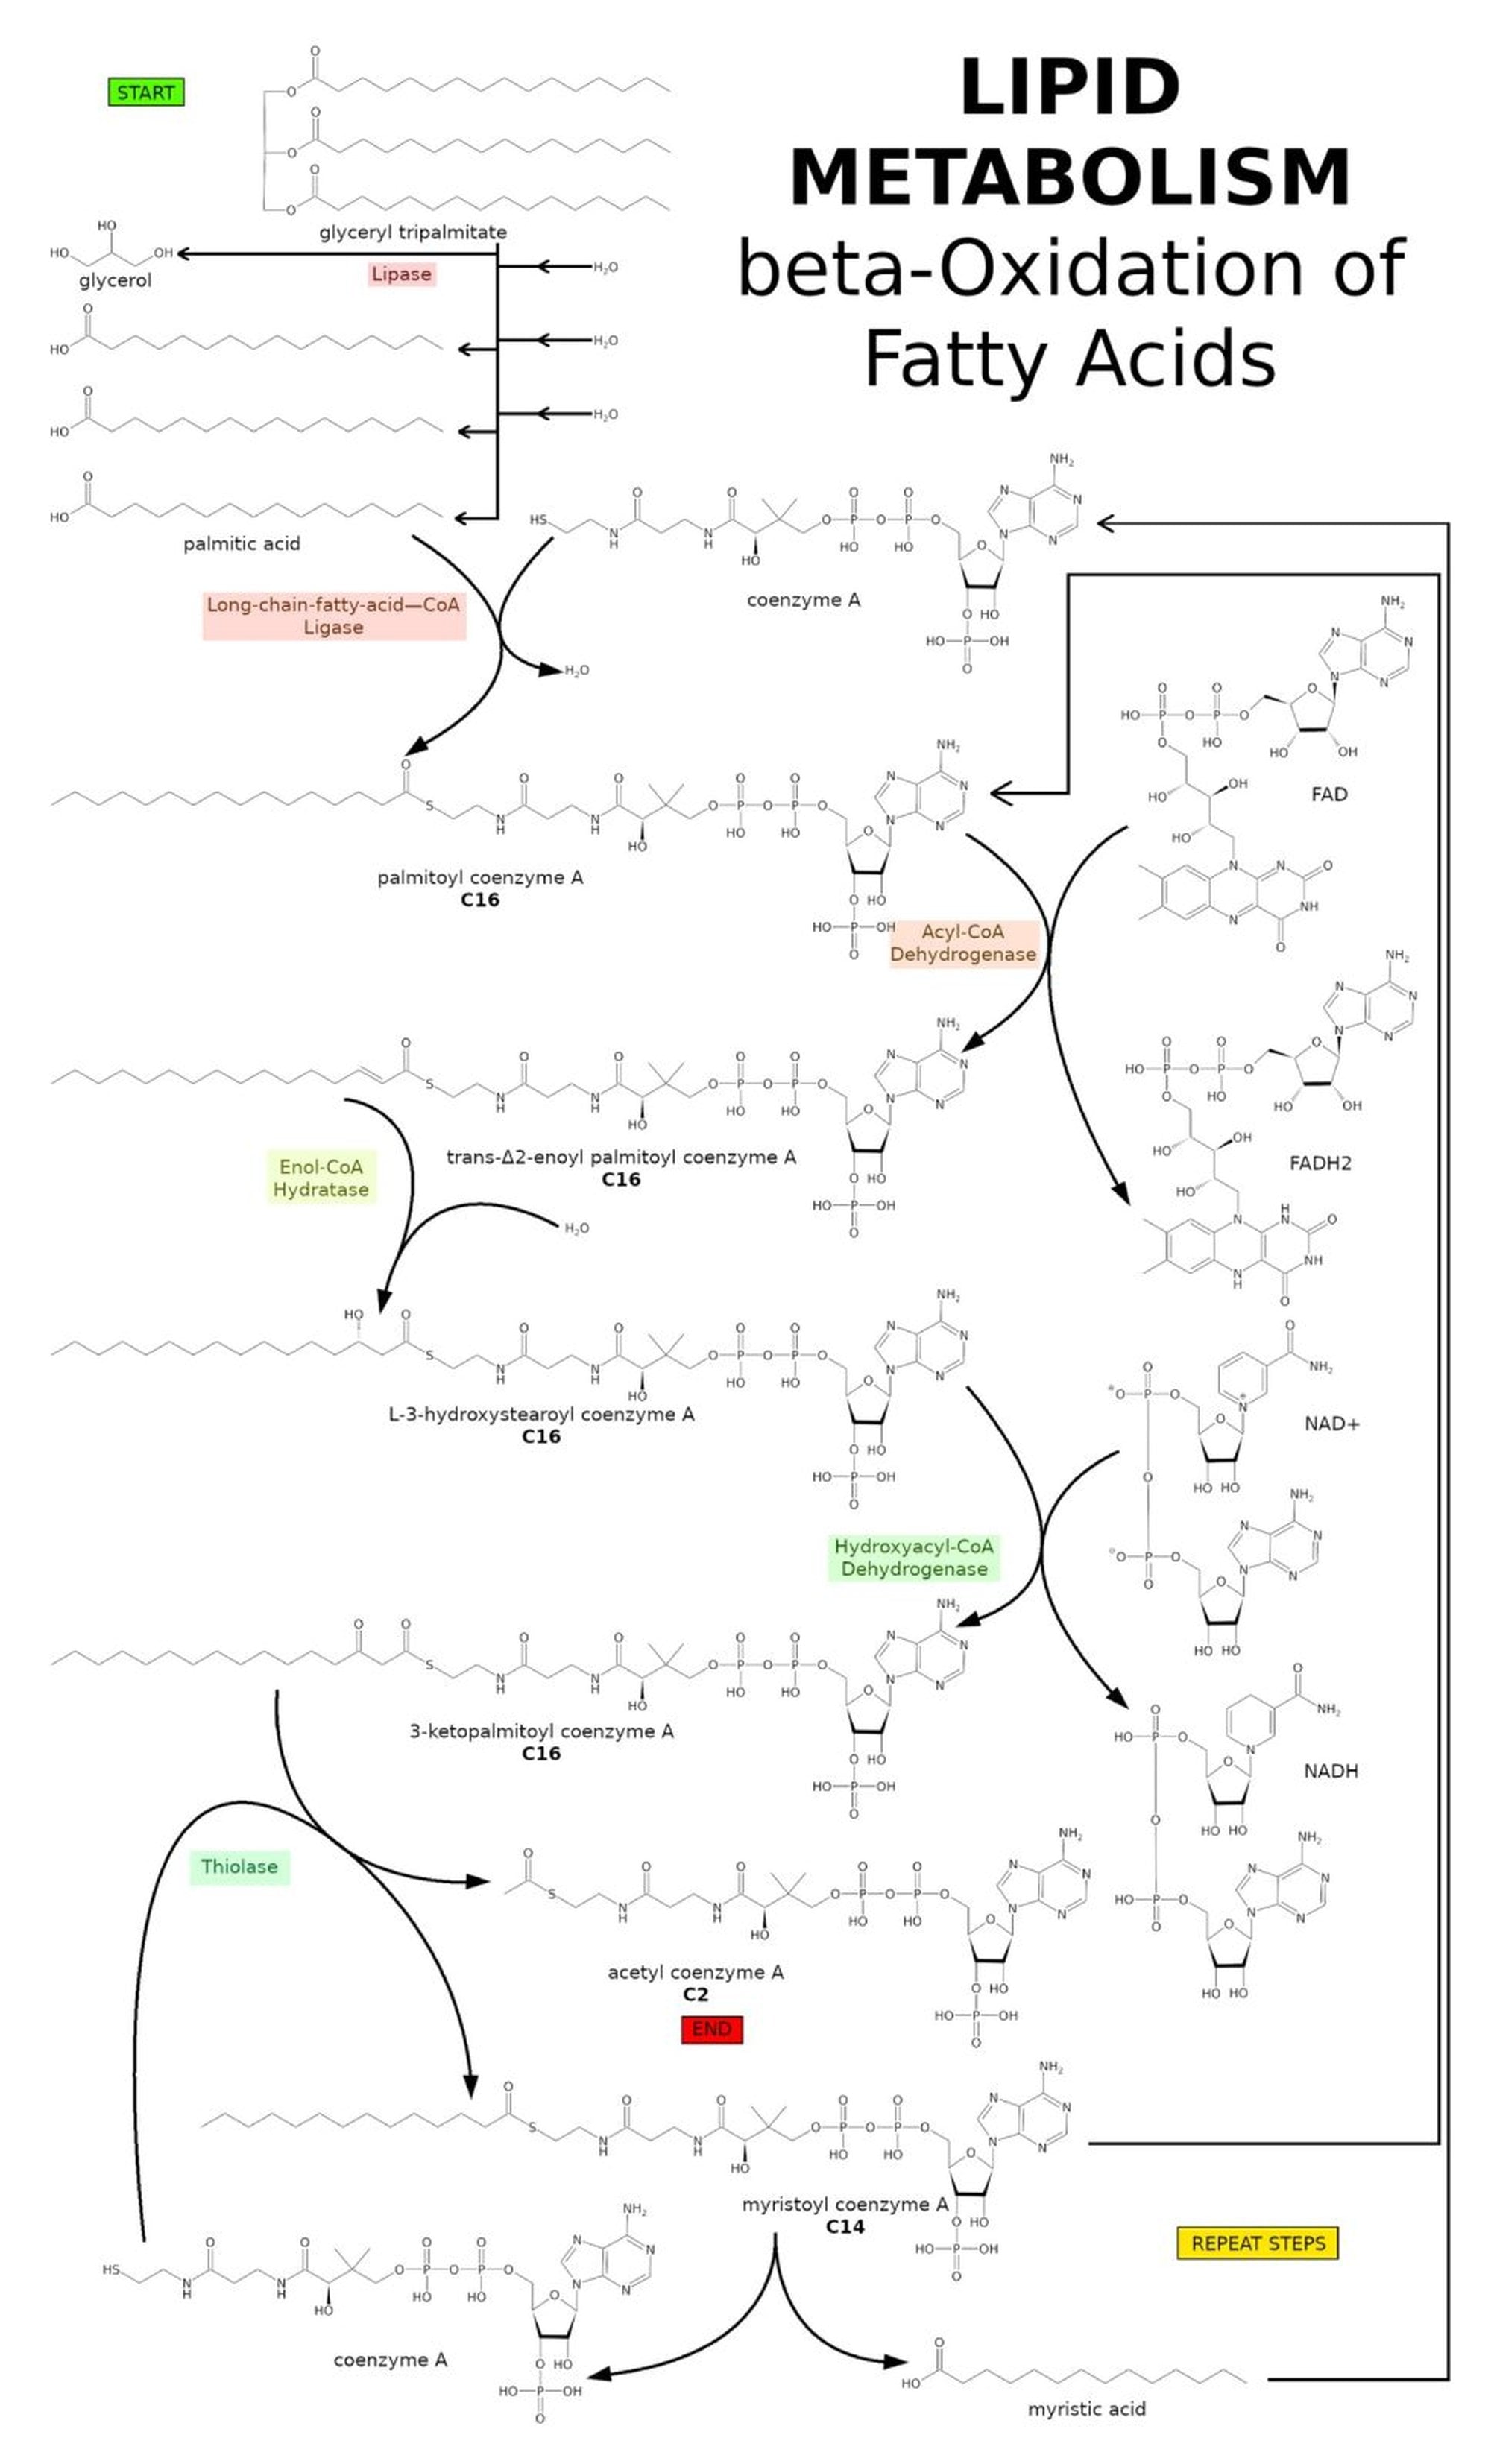
Kanda serum albüminine bağlı olarak hücreye ulaşan bir yağ asidinin bu kesim işlemine girebilmesi için önce sitoplazmada etkinleştirilmesi gerekmektedir. Serbest yağ asidi doğrudan tepkimeye girememektedir, çünkü karboksil ucu yeterince reaktif değildir. Bu etkinleştirme basamağında yağ asidi koenzim A'ya bağlanarak mitokondriyal yağ asidi oksidasyonunun gerçek substratı olan asil-CoA oluşturulmaktadır. Hatta bu bağlanma sırasında harcanan ATP molekülü ADP'ye değil, iki fosfat kaybederek AMP'ye dönüştüğünden tek bir yağ asidinin etkinleştirilmesi hücrede 2 ATP molekülüne eşdeğer bir enerji maliyeti yaratmaktadır. Bunun yanında sitoplazmada etkinleştirilen uzun zincirli asil-CoA molekülleri mitokondri iç zarından doğrudan geçemediğinden karnitin mekiği (CPT1 ve CPT2 enzimleri) görev almakta, yani dış zardaki CPT1 asil grubunu karnitine bağlayıp içeri aktarırken iç zardaki CPT2 bu grubu yeniden koenzim A'ya devrederek mitokondri matriksine bırakmaktadır.
Böylece mitokondri matriksine geçen asil-CoA, burada beta oksidasyon döngüsüne girerek her turda ikişer karbon koparılmasıyla asetil-CoA birimlerine ayrılmaktadır. Her kesim turu dört basamaktır ve her turda hem FADH₂ hem de NADH üretilmektedir. Önce asil-CoA esteri dehidrojenasyona uğrayarak trans-2-enoil-CoA oluştururken elektronlar FAD'ye aktarılarak FADH₂ üretilmekte, ikinci işlemde enoil-CoA hidrataz enzimi çift bağa su ekleyerek hidratasyon gerçekleştirmekte ve üçüncü tepkimede 3-hidroksiasil-CoA dehidrojenaz enzimiyle ikinci bir yükseltgenme yapılarak bir NADH elde edilmektedir. Dördüncü ve son adımda yapıdan iki karbonlu bir asetil-CoA ayrılarak Krebs döngüsüne iletilirken, geride kalan iki karbon kısalmış asil-CoA bir sonraki kesim çevrimine katılmakta ve bu süreç tüm yağ asidi zinciri ikişer karbonluk asetil-CoA parçalarına ayrılıncaya dek sürmektedir.
Tek Sayılı ve Doymamış Zincirler
Doğadaki yağ asitlerinin çoğu çift sayıda karbon içerse de, tek sayıda karbon içeren yağ asitleri de solunum hattında eksiksiz biçimde değerlendirilmektedir. Tek karbon sayılı bir yağ asidi beta oksidasyonda ikişer karbonluk asetil-CoA parçaları halinde kesildiğinde, en son turda iki karbonlu bir parça yerine üç karbonlu bir ara ürün olan propiyonil-CoA oluşmaktadır.[4] Üç karbonlu propiyonil-CoA, Krebs döngüsüne doğrudan giremediği için özel bir enzim dizisiyle dört karbonlu süksinil-CoA molekülüne dönüştürülmektedir.
Propiyonil-CoA yolundaki bu dönüşümde önce yapıya bir karboksil grubu eklenmektedir. Bu yoldaki son yeniden düzenlenme adımı, katalitik döngüsünde B12 koenziminden yararlanan metilmalonil-CoA mutaz enzimi tarafından yürütülmektedir. Bunun sonucunda oluşan süksinil-CoA dört karbonlu bir ara ürün olarak doğrudan Krebs döngüsünde metabolize edilebilmekte ve döngüde oksaloasetata dönüşebildiği için çift karbonlu yağ asitlerinin aksine bu son üç karbonluk parça glukoneogeneze de katılabilmektedir. Aynı biçimde oleik asit gibi yapısında çift bağ taşıyan doymamış yağ asitlerinin yıkımı da temel beta oksidasyon enzimlerinin yanı sıra ek yardımcı enzimlerle yürütülmektedir. Bunlar arasında yer alan izomeraz enzimi çift bağın konumunu yeniden ayarlamakta, böylelikle gerek tek karbon sayılı gerekse doymamış yağ asitleri kayba uğramadan enerji üretiminde değerlendirilmektedir.
Proteinlerin Katabolizması
Karbohidratlar ve yağlar hücrenin birincil yakıt depolarıyken, proteinlerin öncelikli görevi enerji saklamak değildir. Hatta vücutta özel protein deposu bulunmamaktadır, çünkü her protein aktif bir işlev üstlenmektedir. Bu nedenle yiyeceklerden sağlanan ya da hücrede işlev süresini dolduran proteinler yıkıldığında serbest kalan amino asitler ilk olarak yeni proteinlerin yapımına yönlendirilmektedir. İnsan vücudunda üretilemeyen esansiyel amino asitlerin ise beslenme yoluyla dışarıdan karşılanması zorunludur. Bununla birlikte uzayan açlık koşullarında veya hücreye ihtiyaçtan fazla protein girdiğinde, açığa çıkan amino asitler katabolik yollara aktarılarak yakıt olarak değerlendirilebilmektedir.
Öte yandan amino asitlerin yıkım süreci, glikoliz ya da beta oksidasyon örneklerinde olduğu gibi tek bir düz hat halinde ilerlememektedir. Proteinleri oluşturan 20 farklı amino asidin her biri kendine özgü bir yan zincir taşımaktadır, bu yüzden bu amino asitlerin bazı dönüşüm basamakları birbiriyle örtüşürken bazı yıkım yolları birbirinden oldukça farklı ilerlemektedir. Örneğin kimi amino asitler tek bir enzim adımıyla doğrudan solunum hattındaki tanıdık bir ara ürüne dönüşürken, kimi amino asitler halkalı veya dallı yan zincirlerini açmak için çok basamaklı özel enzim dizilerinden geçtikten sonra ortak yola bağlanabilmektedir.
Azotun Ayrılması ve Üre Döngüsü
Bir amino asidin hücresel solunum tepkimelerine katılabilmesi için ilk şart, yapısındaki azot atomunun karbon gövdeden ayrılmasıdır. Amino asitlerin yıkımı sırasında bütün moleküller transaminasyon, deaminasyon veya her ikisinin birlikte çalışmasıyla azotlarından kurtulmak zorundadır, aksi halde karbon gövde solunum döngüsüne girememektedir. Transaminasyon tepkimesinde bir amino asidin amino grubu alınarak bir keto aside, çoğunlukla da beş karbonlu alfa-ketoglutarata aktarılmakta, böylece azot atomu glutamata devredilirken geriye azotsuz bir keto asit kalmaktadır. Kas dokusunda azot miktarı arttığında ise glikoliz ürünü piruvat transaminasyon tepkimesiyle alanine çevrilip kan dolaşımıyla karaciğer hücrelerine (hepatositlere) taşınmakta, böylece karaciğerdeki bu glikoz-alanin döngüsünde alaninin amino grubu alfa-ketoglutarata devredilerek tekrar piruvat ve glutamat elde edilmektedir.
Azotun başka bir moleküle devredilmek yerine yapıdan tamamen koparılması ise deaminasyon işlemiyle amino grubunun doğrudan amonyak (NH₃) olarak uzaklaştırılmasıyla sağlanmaktadır. Dokularda biriken fazla amonyak son derece toksiktir ve kanda yükseldiğinde hiperamonyemi adı verilen tehlikeli tabloya yol açabilmektedir. Dolayısıyla zehirlenmeyi önlemek için karaciğerde işleyen üre döngüsünde amonyak, bikarbonat ve aspartattan gelen ikinci bir amino grubu kullanılarak çok daha zararsız olan üreye dönüştürülmektedir.[5] Ayrıca suda rahatlıkla çözünebilen bu bileşiğin her bir molekülü yapısında iki azot atomu barındırmaktadır. Üretilen bu ürenin büyük bölümü karaciğerden kana salınmakta, sonuçta böbrekte idrara katılarak vücuttan güvenli biçimde atılmaktadır.
Glikojenik ve Ketojenik Karbon İskeletleri
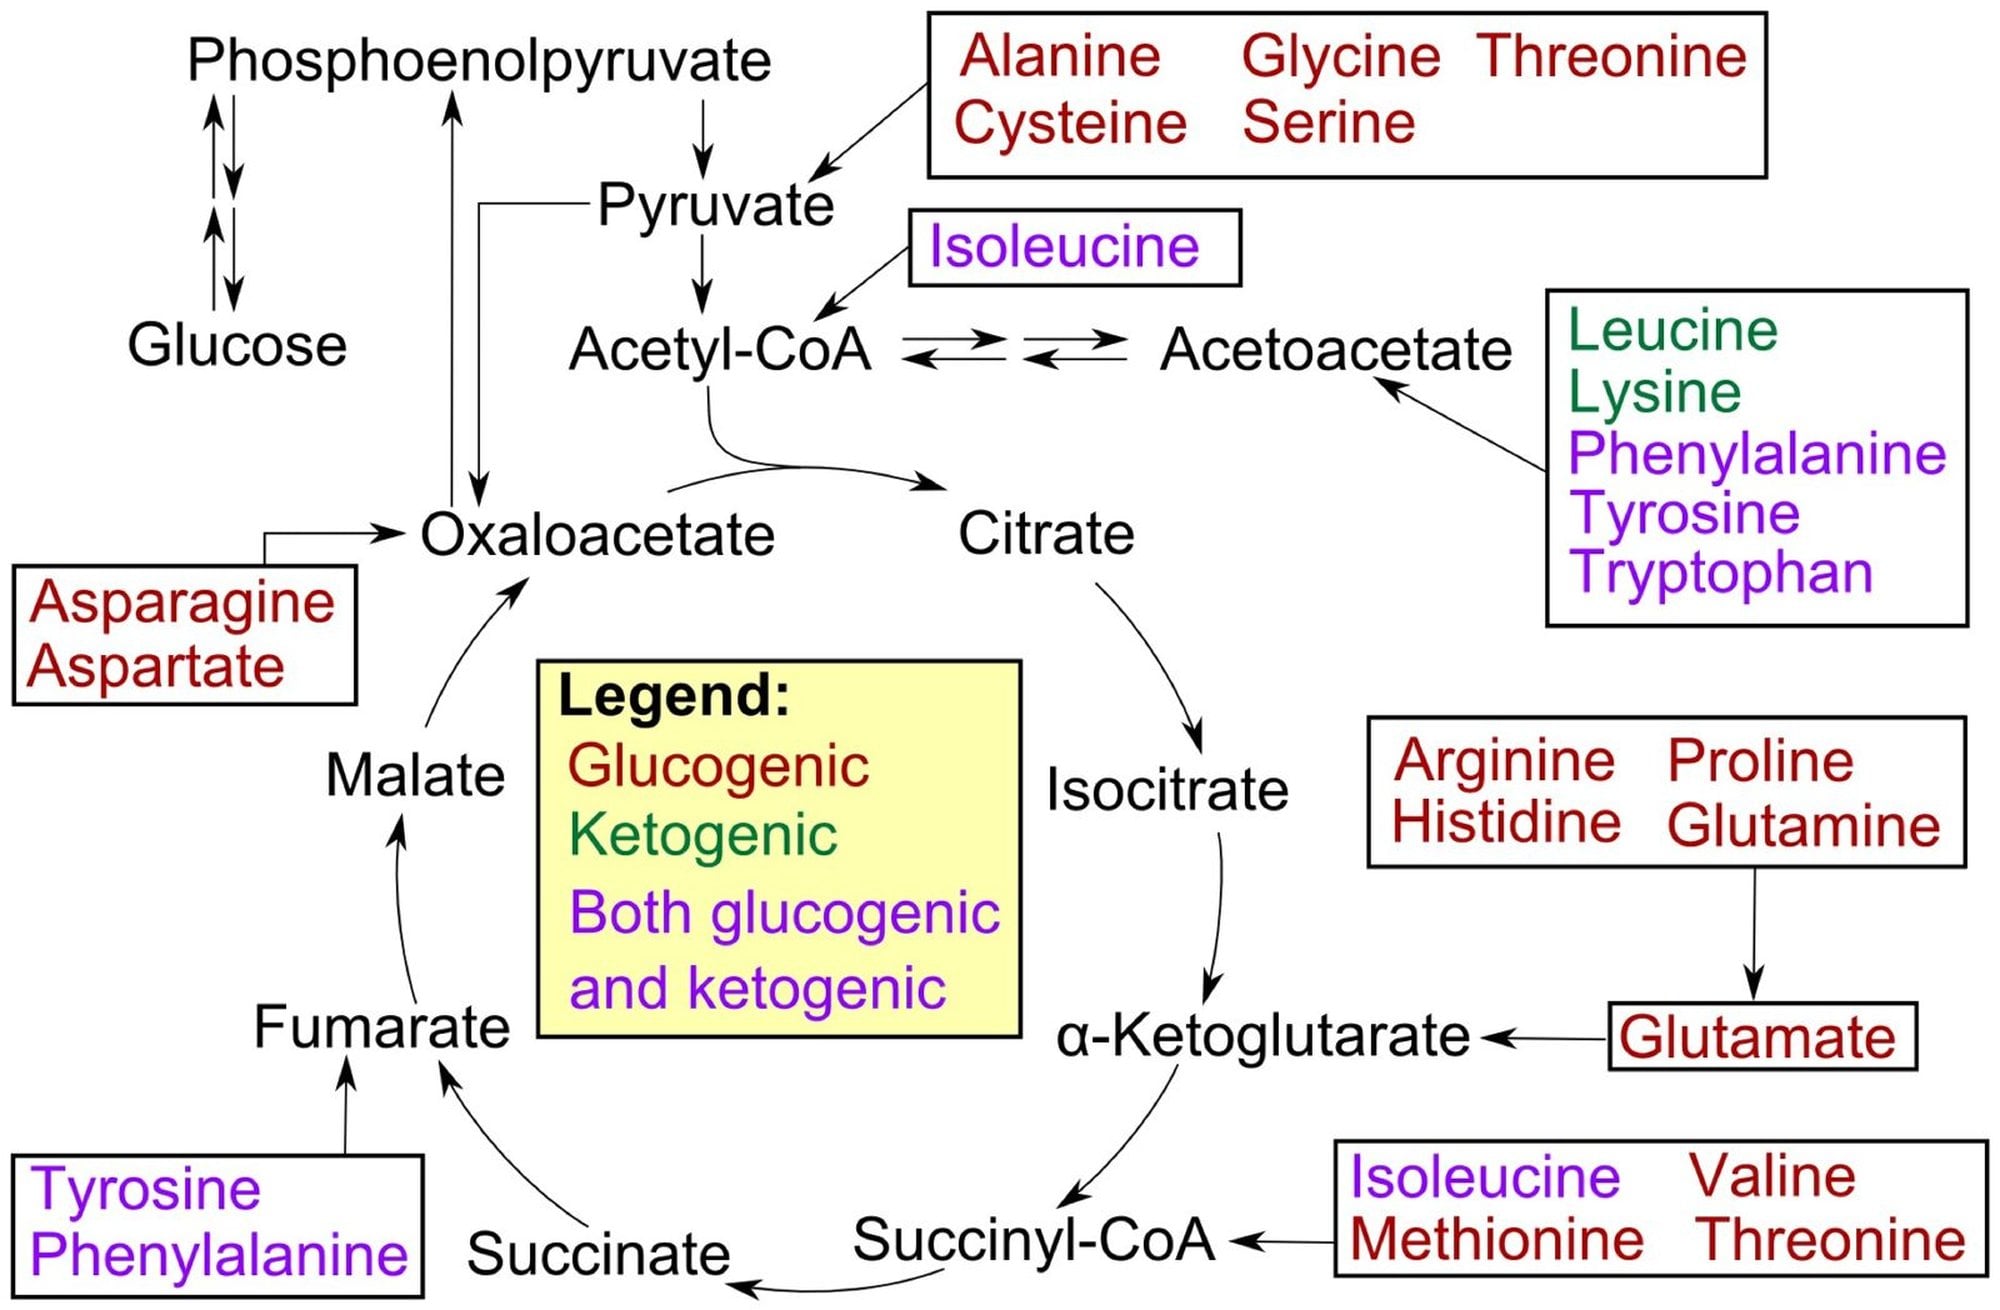
Amino asitlerin azot içeren grubu deaminasyon veya transaminasyonla uzaklaştırıldıktan sonra geriye keto asit veya karbon iskeleti adı verilen azotsuz gövde kalmaktadır. Solunum hattına bağlanan parça bu iskelettir, yani enerji bu karbon bağlarından elde edilmektedir. Yirmi farklı amino asidin karbon iskeletleri, sahip oldukları karbon sayısına ve kimyasal yapılarına göre solunum yoluna piruvat, asetil-CoA, asetoasetil-CoA veya doğrudan Krebs döngüsünün ara ürünleri üzerinden giriş yapmaktadır. Bu karbon iskeletleri biyokimyasal açıdan, bağlandıkları basamağın hücrede yeni glikoz sentezine olanak tanıyıp tanımadığına göre iki gruba ayrılmaktadır. Parçalandığında piruvat ya da Krebs döngüsü ara ürünlerini oluşturan amino asitler oksaloasetat aracılığıyla glukoneogeneze katılabildiğinden glikojenik sınıfında değerlendirilmektedir.
Yıkımında sadece iki karbonlu asetil-CoA veya dört karbonlu asetoasetat (veya asetoasetil-CoA) ara ürünlerini veren amino asitler ise ketojenik olarak sınıflandırılmaktadır. Piruvatın oksidasyonu tek yönlü olduğundan ve asetil-CoA sadece oksaloasetatla birleşerek sitrat oluşumuna katıldığından, saf ketojenik amino asitler glukoneogenezde kullanılamamakta, bunun yerine ya Krebs döngüsünde yakılmakta ya da karaciğerde keton cisimlerine dönüştürülmektedir. Buna karşılık glikojenik gruptaki yapı taşları arasında beş karbonlu glutamat ile dört karbonlu aspartat öne çıkmaktadır. Döngü ara ürünlerine bağlanan bu moleküllerden glutamat tersinir biçimde alfa-ketoglutarata çevrilirken, aspartatın karbon gövdesi doğrudan oksaloasetat oluşturarak proteinlerin yakıt olarak kullanıldığı koşullarda glukoneogenez için önemli bir ara ürün sunmaktadır.
Dallı zincirli amino asitler olan valin, lösin ve izolösin ise aynı yapısal aileden gelmelerine karşın solunum hattına üç farklı karakterde bağlanmaktadır. Valin, çok basamaklı yıkım süreci sonunda üç karbonlu propiyonil-CoA ara ürününü vermekte, böylece süksinil-CoA üzerinden döngüye tamamen glikojenik olarak katılmaktadır. Lösin ise çok basamaklı parçalanma dizisinin sonunda sadece bir keton cismi olan asetoasetat ile asetil-CoA üretmekte ve glikojenik herhangi bir ara ürüne dönüşmediğinden saf ketojenik özellik göstermektedir. Buna karşın izolösin hem iki karbonlu asetil-CoA hem de üç karbonlu propiyonil-CoA verdiği için, aromatik bir amino asit olan tirozin ise beş basamaklı yıkımla hem asetoasetat hem de fumarat oluşturduğu için hem ketojenik hem glikojenik özellik taşımaktadır. Böylelikle yirmi amino asidin tamamına ait karbon gövdeleri, hiçbiri dışarıda kalmaksızın solunum hattının uygun kavşaklarına yerleşmektedir.
Hangi Besin Ne Kadar Enerji Verir?
Üç besin grubunun solunum hattına hangi kapılardan girdiğini gördükten sonra, bu kapılardan geçen yakıtların hücreye ne kadar enerji bıraktığını iki farklı ölçekte karşılaştırabiliriz. Beslenme biliminde bir besinin gramı başına açığa çıkan enerjiyi ölçen kilokalori hesabı kullanılırken, hücre biyokimyasında tek bir yapı taşı molekülünün tam yükseltgenmesiyle üretilen net ATP sayısı esas alınmaktadır (vücudun günlük toplam enerji harcamasını ve bazal dengeyi ise ayrı bir konu olan metabolizma yazımızda ele alıyoruz). Her iki ölçekte de yağların karbohidratlara ve proteinlere göre çok daha yüksek enerji vermesinin temelinde elektron kimyası bulunmaktadır.
Bir besin molekülünün yükseltgenme sırasında ne kadar enerji vereceği, başlangıçta ne kadar indirgenmiş durumda olduğuna bağlıdır. Yağ asitleri, yapılarında oksijen oranı yüksek olan karbohidratlara göre çok daha indirgenmiş bir kimyasal biçimde bulunmaktadır. Karbohidratlarda neredeyse her karbon atomuna bir oksijen bağlıyken, yağ asidi zincirleri baştan sona karbon ve hidrojen bağlarıyla dolu olduğundan bir gram yağ asidi yükseltgendiğinde elektron taşıyıcılarına çok daha fazla elektron aktarılmaktadır. Söz konusu yüksek elektron yoğunluğu, yağ asitlerinin karbohidratlardaki 4 kcal değerine karşılık gram başına 9 kcal enerji sağlamasını açıklamaktadır.
Gram Başına Kilokalori
Yiyeceklerden elde edilen enerji kilokalori birimi üzerinden ifade edilmektedir. Günlük kullanımda ise bu birim kısaca kalori olarak adlandırılmaktadır. Fiziksel tanımıyla bir kilokalori (kcal), tam 1 kilogram suyun sıcaklığını 1 derece Celsius artırmak için gereken enerji miktarıdır.[1] Bir kilokalori 1.000 küçük kaloridir. İnsan vücudu besinleri laboratuvar ortamındaki bir bomba kalorimetresi gibi bütünüyle yakmadığından, ambalaj etiketlerindeki enerji miktarları ham yanma ısısı üzerinden değil, her makro besin grubuna standart bir katsayı atayan genel Atwater sistemiyle belirlenmektedir.
Bu katsayılar belirlenirken sindirim, emilim ve proteinlerdeki azotun üre döngüsü üzerinden idrarla üre olarak atımındaki enerji kayıpları için düzeltme yapılmaktadır.[11] Proteinler laboratuvarda tamamen yakıldığında daha yüksek ısı vermekte, oysa insan vücudu azotu yakamayıp üre olarak idrarla attığı için proteinin fizyolojik enerji verimi karbohidratla aynı düzeye inmektedir. Yapılan bu hesaplama düzeltmelerinin ardından besin enerjisi belirlenirken 1 gram yağ 9 kalori, 1 gram karbohidrat 4 kalori ve 1 gram protein 4 kalori kabul edilmektedir. Yağa ait katsayının diğer grupların iki katını aşması, yağ asitlerinin karbohidratlara kıyasla kimyasal bakımdan daha indirgenmiş durumda bulunmasından kaynaklanmaktadır. Gerçek bir besin üzerinde bu katsayılar uygulandığında, ağırlıkça daha az olan yağın toplam enerjide nasıl baskın hale geldiği açıkça görülmektedir.
Evrim Ağacı ürünlerinden haberdar mısınız?
Çözümlü örnek 2: Bir çöreğin toplam enerjisi ve besin gruplarının enerji payları nasıl hesaplanır?
Verilenler: Yapısında yağ, karbohidrat ve protein bulunan bir çörek ile yağ için , karbohidrat için ve protein için olan Atwater dönüşüm katsayıları.[12]
İstenen: Çöreğin toplam kalori değeri () ve bu toplam enerjinin yüzde kaçının yağdan, karbohidrattan ve proteinden geldiği.
1. adım: Çörekteki yağ kütlesi gram başına enerji katsayısıyla çarpılarak yağdan gelen kalori miktarı bulunmaktadır:[12]
2. adım: Çörekteki karbohidrat kütlesi kendi enerji katsayısıyla çarpılarak karbohidratların sağladığı kalori miktarı hesaplanmaktadır:
3. adım: Çörekte bulunan protein kütlesi gram başına enerji katsayısıyla çarpılarak proteinden gelen kalori katkısı belirlenmektedir:
4. adım: Üç temel besin grubundan gelen kalori miktarları birbiriyle toplanarak çöreğin toplam enerjisi elde edilmektedir:
5. adım: Yağın verdiği kalori miktarı toplam kaloriye bölünüp yüz ile çarpılarak enerjinin yağdan gelen yüzde payı hesaplanmaktadır:
6. adım: Aynı oranlama işlemi karbohidrat ve protein kalorileri için de uygulanarak diğer iki besin grubunun yüzde payları bulunmaktadır:
Sonuç: Çöreğin toplam enerji değeri kaloridir ve çörekte kütlece yağın yaklaşık iki katı kadar karbohidrat bulunmasına rağmen bu enerjinin 'i yağdan, 'ı karbohidrattan ve 'si proteinden sağlanmaktadır.
Bir Yağ Asidinin ATP Hesabı
Molekül ölçeğine indiğimizde, bir yağ asidinin neden bu kadar yüksek enerji verdiği ATP muhasebesiyle ortaya çıkmaktadır. Elektron taşıma sisteminde indirgenmiş taşıyıcılardan ATP sentaz yoluyla elde edilen enerji hesaplanırken güncel biyokimya yaklaşımında NADH başına , FADH₂ başına ise karşılığı esas alınmaktadır. Kimi eski kaynaklarda yer alan ve oranları ise bugün daha az benimsenmektedir. Bir molekülün toplam ATP verimi her zaman seçilen bu dönüşüm katsayılarına bağlıdır. Nitekim glikolizde altı karbonlu bir glikoz sadece 2 net ATP ve 2 NADH verirken, 18 karbonlu tek bir yağ asidi mitokondride tam 8 beta oksidasyon çevriminden geçmektedir.
On sekiz karbonlu zinciri ikişer karbonluk dokuz parçaya ayırmak için sekiz kesim işlemi yeterlidir. Son turdaki dört karbonlu zincir doğrudan iki asetil-CoA birimine ayrıldığından, 8 kesim çevriminin sonunda toplam 9 asetil-CoA, 8 NADH ve 8 FADH₂ üretilmektedir. Ancak molekülden sağlanan enerji kazancı bu aşamayla sınırlı kalmamaktadır. Oluşan 9 asetil-CoA da Krebs döngüsüne girdiğinde her bir asetil-CoA başına 3 NADH, 1 FADH₂ ve 1 GTP üretildiği için tabloya 27 NADH, 9 FADH₂ ve 9 GTP daha eklenmekte, böylece tek bir yağ asidi molekülü elektron taşıma sistemine toplam 35 NADH ile 17 FADH₂ teslim etmektedir. Başlangıçtaki etkinleştirme basamağında ATP'nin AMP'ye dönüşmesiyle harcanan 2 ATP eşdeğeri maliyet düşüldüğünde hücrenin elde ettiği net kazanç ortaya çıkmaktadır.
Çözümlü örnek 3: 18 karbonlu bir yağ asidinin tam yükseltgenmesinden kaç net ATP elde edilir?
Verilenler: Tam beta oksidasyonu süren bir yağ asidi, beta oksidasyondan elde edilen , ve , bu 'nın Krebs döngüsünde yükseltgenmesinden gelen , ve , taşıyıcı başına ile katsayıları ve yağ asidinin etkinleştirilmesindeki eşdeğeri maliyet.[8]
İstenen: 18 karbonlu yağ asidinin tam yükseltgenmesi sonucunda hücrenin elde ettiği net ATP miktarı ().
1. adım: Beta oksidasyon ve Krebs döngüsünden gelen toplam molekülü, elektron taşıma sistemindeki katsayısıyla çarpılmaktadır:
2. adım: Beta oksidasyondan gelen ile döngüden gelen 'nin toplamı olan molekülü, katsayısıyla çarpılmaktadır:
3. adım: Taşıyıcılardan elde edilen ATP değerlerine, döngüde üretilen 'nin ATP karşılığı olan eklenerek brüt toplam bulunmaktadır:
4. adım: Yağ asidinin başlangıçta asil-CoA'ya etkinleştirilmesi sırasında ATP'nin AMP'ye dönüşmesiyle harcanan eşdeğeri gider toplamdan düşülmektedir:
Sonuç: 18 karbonlu tek bir yağ asidinin tam yükseltgenmesi brüt üretmekte, başlangıçtaki etkinleştirme gideri çıkarıldığında hücreye kazandırmaktadır.
Yakıt Seçimi, İstisnalar ve Yanılgılar
Hücresel solunum şemaları genellikle en üstte glikozla başladığı için, insan hücrelerinin sadece glikozu enerji kaynağı olarak kullandığını düşünmek sıklıkla karşılaşılan bir kavram yanılgısıdır.[14] Oysa insan vücudundaki farklı dokular içerdikleri organellere ve enzimlere göre karbohidratları, yağ asitlerini, keton cisimlerini ve amino asitleri farklı oranlarda kullanmakta, bu doku özelleşmesinin en uç örneğini kanımızda oksijen taşıyan alyuvarlar oluşturmaktadır. Olgun insan alyuvarlarında mitokondri bulunmamaktadır.[10] Mitokondrisi olmayan bir hücrenin piruvatın oksidasyonunu, Krebs döngüsünü, oksidatif fosforilasyonu veya yağ asidi beta oksidasyonunu gerçekleştirmesi imkansızdır. Dolayısıyla olgun alyuvarlar enerji gereksinimini bütünüyle sitoplazmadaki glikoliz üzerinden karşılamakta ve tepkime dizisi sonunda açığa çıkan piruvatı mitokondriye aktarmak yerine laktata çevirmektedir.
Diğer dokularda ise mitokondri bulunmasına karşın yakıt girişini ve çıkışını belirleyen özel kurallar işlemektedir. Örneğin beynin kesintisiz enerji ihtiyacı olağan beslenme düzeninde glikozdan, açlık sürecinde ise artan ölçüde keton cisimlerinden karşılanmaktadır. Karaciğerin yağ asitleri ile ketojenik amino asitlerden sentezleyip kana verdiği bu suda çözünür keton cisimleri, açlık sırasında beyin tarafından yakıt olarak kullanılmaktadır.[10] Benzer şekilde glikozun kullanımı konusunda iskelet kası ile karaciğer arasında da belirgin bir iş bölümü vardır. İskelet kası, kan dolaşımından çektiği glikozu heksokinaz aracılığıyla glikoz-6-fosfata çevirip hücre içinde tuttuktan sonra sadece kendi enerji ihtiyacı doğrultusunda tüketebilmektedir. Kas dokusu, karaciğerin aksine glikoz-6-fosfataz enzimi bulundurmadığından aldığı glikozu serbest glikoz olarak tekrar kana verememektedir.
Vücudun hangi koşullarda şekerleri, hangi koşullarda yağları öne çıkardığı ise beslenme durumuna ve fiziksel etkinliğe göre değişmektedir. Açlık sırasında dışarıdan glikoz gelişinin sınırlanması yağ asidi yükseltgenmesinin önemini hızla artırmakta, bu sayede sınırlı glikoz rezervleri beyin ve alyuvarlar için korunurken karaciğer, kalp ve iskelet kası gibi yüksek enerjili organlarda yağ asidi yükseltgenmesi enerji dengesini sürdüren kilit bir metabolik yol olmaktadır. Öte yandan egzersizde kullanılan yakıtın seçimi doğrudan egzersizin şiddetine ve süresine bağlıdır. Mitokondriyal yağ asidi yükseltgenmesindeki kalıtsal enzim bozuklukları ise açlıkta yağ depolarının kullanımını engellemekte ve hipoketotik hipoglisemiden iskelet ve kalp kası hastalıklarına (miyopatilere) kadar uzanan ciddi belirtiler verebilmektedir.[9] Kısacası sağlıklı bir metabolizma, yakıt kapılarını dokular arasında esnekçe değiştirebilme yeteneğine dayanmaktadır.
Sonuç
Besinlerin solunuma katılımı, karbohidratların glikolize, gliserolün DHAP üzerinden glikolizin ara basamağına, yağ asitlerinin beta oksidasyonla asetil-CoA üzerinden Krebs döngüsüne, amino asitlerin ise azotlarını bıraktıktan sonra karbon iskeletlerine göre piruvata, asetil-CoA'ya veya döngü ara ürünlerine bağlanmasıyla gerçekleşmektedir. Böylece bütün bu giriş kapıları sonunda elektronlarını aynı elektron taşıma sistemine teslim etmekte ve süreç oksijenin elektronlarla birleşerek H₂O oluşturmasıyla tamamlanmaktadır.[7]
Ortaya çıkan bu biyokimyasal çerçeve, gıda etiketlerinde yer almayan kritik bir gerçeğe de işaret etmektedir. Atwater sistemiyle hesaplanan bir kilokalori değeri, besinin hangi kapıdan gireceğini ve hücrede hangi yan ürünleri bırakacağını söylememektedir.[11] Oysa karbohidratlar ve yağlar tam yükseltgendiğinde geride sadece CO₂ ve H₂O bırakırken, proteinlerden aynı kaloriyi elde etmek isteyen bir hücre önce toksik amonyağı üre döngüsüyle üreye çevirmek ve böbrekler üzerinden atmak zorundadır.[5] Dolayısıyla kağıt üzerinde eşit kalorili görünen iki farklı besin, kullandıkları enzim kapıları, glikoza dönüşebilme sınırları ve bıraktıkları azotlu atıklar bakımından hücre için eşdeğer değildir. Solunum basamaklarının kendi içindeki moleküler tepkimeleri için 24103 ve 9197 numaralı yazılarımıza, vücudun bütünsel enerji dengesi için ise metabolizma yazımıza göz atabilirsiniz.
- Muhteşem!3
- Tebrikler!1
- Mmm... Çok sapyoseksüel!1
- Merak Uyandırıcı!1
- Bilim Budur!0
- Güldürdü0
- İnanılmaz0
- Umut Verici!0
- Üzücü!0
- Grrr... *@$#0
- İğrenç!0
- Korkutucu!0
Bilimsel bir hata mı gördün?
Evrim Ağacı'na her ay sadece 1 kahve ısmarlayarak destek olmak ister misin?
Şu iki siteden biriyle hemen destek olabilirsin:
kreosus.com/evrimagaci | patreon.com/evrimagaci
Çıktı Bilgisi: Bu sayfa, Evrim Ağacı yazdırma aracıyla 20.11.2026 20:20:31 tarihinde oluşturuldu. Evrim Ağacı'ndaki içerikleri birden fazla editör sürekli gözden geçiriyor, güncelliyor ve geliştiriyor. Bu çıktıdan sonraki güncellemeleri görmek ve içeriğin en güncel hâlini okumak için şu adrese git: evrimagaci.org/s/14157
İçerik Kullanım İzinleri: Evrim Ağacı'ndaki yazılı içerikler orijinallerine hiçbir şekilde dokunulmadığı sürece izin alınmaksızın paylaşılabilir, kopyalanabilir, yapıştırılabilir, çoğaltılabilir, basılabilir, dağıtılabilir, yayılabilir, alıntılanabilir. Ancak bu içeriklerin hiçbiri izin alınmaksızın değiştirilemez ve değiştirilmiş hâlleri Evrim Ağacı'na aitmiş gibi sunulamaz. Benzer şekilde, içeriklerin hiçbiri, söz konusu içeriğin açıkça belirtilmiş yazarlarından ve Evrim Ağacı'ndan başkasına aitmiş gibi sunulamaz.