Lipit Nedir? Yağlar, Yağ Asitleri ve Fosfolipitler Nelerdir?
Suda Çözünmeyen Moleküller Hücre Sınırlarını Nasıl Kuruyor?


- Özgün
- Biyokimya
Bu Makalede Neler Öğreneceksin?
Bu bölümü yapay zekâ hazırlar.- Lipitler, suda çözünmeyen veya az çözünen geniş bir biyomolekül grubudur; yağların yanı sıra hücre zarı bileşenleri, mumlar, steroitler ve A, D, E, K vitaminlerini kapsar.
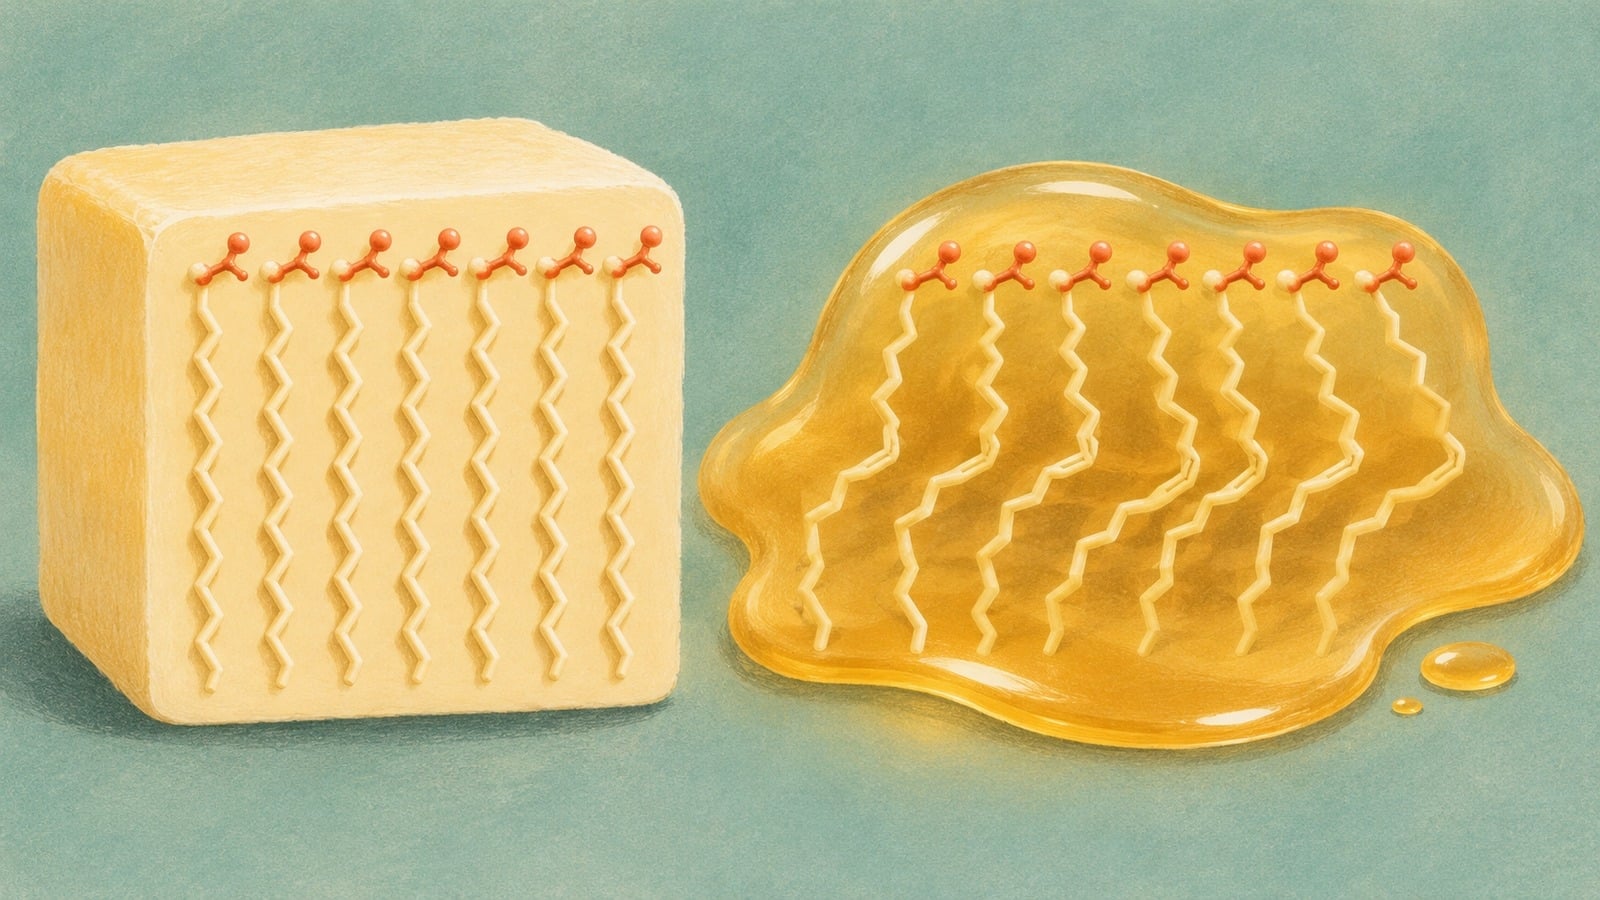
- Yağ asitlerindeki çift bağların sayısı ve cis ya da trans biçimi, moleküllerin paketlenmesini ve erime sıcaklığını etkileyerek yağların oda sıcaklığında katı veya sıvı olmasını belirler.
- Trigliseritler su tutmadan yoğun enerji depolar; fosfolipitler çift katman oluşturarak hücre zarlarını kurar, mumlar koruyucu örtü sağlar ve bazı lipitler sinyal iletiminde görev alır.
Lipitler (İng: "lipids"), canlılarda bulunan ve ortak fiziksel özelliği suda çözünmemek olan hidrofobik veya amfifilik organik biyomoleküllerdir.[1] Eter ya da kloroform gibi polar olmayan çözücülerde ise kolayca çözünmektedirler. Bu geniş kimyasal grup mutfakta tanıdığımız katı ve sıvı yağlarla sınırlı kalmamaktadır, çünkü bitki yüzeylerindeki mumlar, hücre zarlarını oluşturan fosfolipitler, steroitler (İng: "steroids"), terpenler ve A, D, E ile K vitaminleri de bu ailenin üyeleridir. Canlı sistemlerde enerji depolama, zar mimarisini kurma, hücresel sinyal iletimi ve hormonal düzenleme gibi çok farklı görevler üstlenmektedirler.
Günlük dilde "yağ" ve "lipit" sözcüklerini çoğu zaman birbirinin yerine kullanıyoruz. Oysa yağlar, bu büyük biyomolekül ailesinin sadece tek bir alt sınıfıdır. Hatta bu alt sınıfın enerji yoğunluğu çarpıcı düzeydedir, çünkü su tutmadan sıkıca paketlenebilen bir gram yağ, bir gram karbohidratın iki katından fazla enerji barındırmaktadır.[10] Üç karbonlu küçük bir alkol iskeletine bağlanan hidrokarbon zincirindeki tek bir çift bağın uzaydaki yönelimi bile maddenin oda sıcaklığında katı mı yoksa sıvı mı kalacağını doğrudan belirlemektedir.
Bu kimyasal çeşitlilik ilk bakışta şaşırtıcı görünebilir. Nitekim düz zincirli bir yağ asidi ile dört halkalı bir kolesterol molekülü birbirine yapıca hiç benzememektedir, ancak her iki bileşik de suyla karşılaştığında benzer biçimde sudan kaçınmaktadır. Dolayısıyla canlılardaki sınır yapıların kuruluşundan iç organların korunmasına, sinir uyarılarının hızlandırılmasından akciğer keseciklerinin açık tutulmasına kadar uzanan pek çok biyolojik süreç doğrudan bu moleküllerin suyla kurduğu fiziksel ilişkiye dayanmaktadır.
Videonun Sayfası: İlk Hücre Nasıl Oluştu? | Sorun Var #2
Lipit Nedir?
Canlı yapısında karşılaştığımız yağ asitleri, trigliseritler, fosfolipitler ve steroitler kimyasal kurulum bakımından diğer büyük organik molekül gruplarından ayrılmaktadır. Bu sınıftaki moleküllerin hiçbiri polimer değildir.[12] Yani yüzlerce özdeş yapı taşının uç uca eklenmesiyle uzayan dev zincirler oluşturmamaktadırlar, ancak önemli bir bölümü daha küçük kimyasal bileşenlerin belirli bağlarla birleştirilmesiyle modüler biçimde inşa edilmektedir. Örneğin tek bir gliserol molekülüne yağ asitlerinin ya da bir fosfat grubunun eklenmesiyle sonlu ve kapalı bir molekül çatısı ortaya çıkmaktadır.
Tüm bu farklı yapılar ayırt edici bir ölçütle tek bir çatı altında toplanmaktadır. Bu ölçüt suda gösterilen düşük çözünürlüktür.[12] Su molekülleri kendi aralarında güçlü kutupsal etkileşimler kurduğundan polar olmayan hidrokarbon bölgelerini dışlamaktadır, dolayısıyla suyla karışmayan bu biyomoleküller ancak eter veya kloroform gibi polar olmayan organik çözücülerde çözünebilmektedir. İşte bu fiziksel davranış, halkalı steroitlerle uzun zincirli mumları bir araya getirmektedir. Böylece bu iki yapı aynı kimyasal üst grupta buluşmaktadır.
Çözünürlük davranışını yöneten temel etken molekül içi yük dağılımıdır. Kimyada hidrofobik kavramı suyu sevmeyen, yani polar olmayan yapıları tanımlamaktadır. Karşıt uçtaki hidrofilik terimi ise su molekülleriyle etkileşebilen polar bölgeleri anlatmaktadır, oysa her lipit molekülü baştan sona polar olmayan bir gövdeden oluşmamaktadır. Amfifilik adı verilen moleküller, aynı yapı içinde hem suyu seven polar (hidrofilik) bir bileşen hem de yağı seven polar olmayan bir bileşen taşımaktadır.
İki zıt kimyasal eğilimin tek bir molekülde buluşması biyolojik açıdan belirleyicidir. Tamamen hidrofobik olan lipitler sulu hücre ortamından uzaklaşarak damlacıklar halinde bir araya toplanmaktadır, ancak amfifilik lipitler polar uçlarını suya çevirip polar olmayan kuyruklarını birbirine yaslayarak düzenli yüzey katmanları kurabilmektedir. Bu sayede sulu sitoplazma ile hücre dışı sıvı arasında kendiliğinden kararlı sınırlar oluşturulabilmektedir.
Kavram kargaşasının en sık ortaya çıktığı yer ise bütün lipitlerin yağ sanılmasıdır. Beslenmede karşılaştığımız katı ve sıvı yağlar gündelik yaşamda en görünür örnekler olduğu için bu eşitleme yaygınlaşmıştır, fakat lipit ile yağ tam eş anlamlı terimler değildir. Yağlar, gliserol molekülünün yağ asitleriyle kurduğu triesterlerden oluşan özel bir lipit sınıfıdır. Öte yandan bitki yapraklarındaki mumlar, zar yapısındaki fosfolipitler, steroitler, terpenler ve yağda çözünen vitaminler olan A, D, E ile K vitaminleri yağ sınıfına girmeden lipit üst grubunda yer almaktadır.
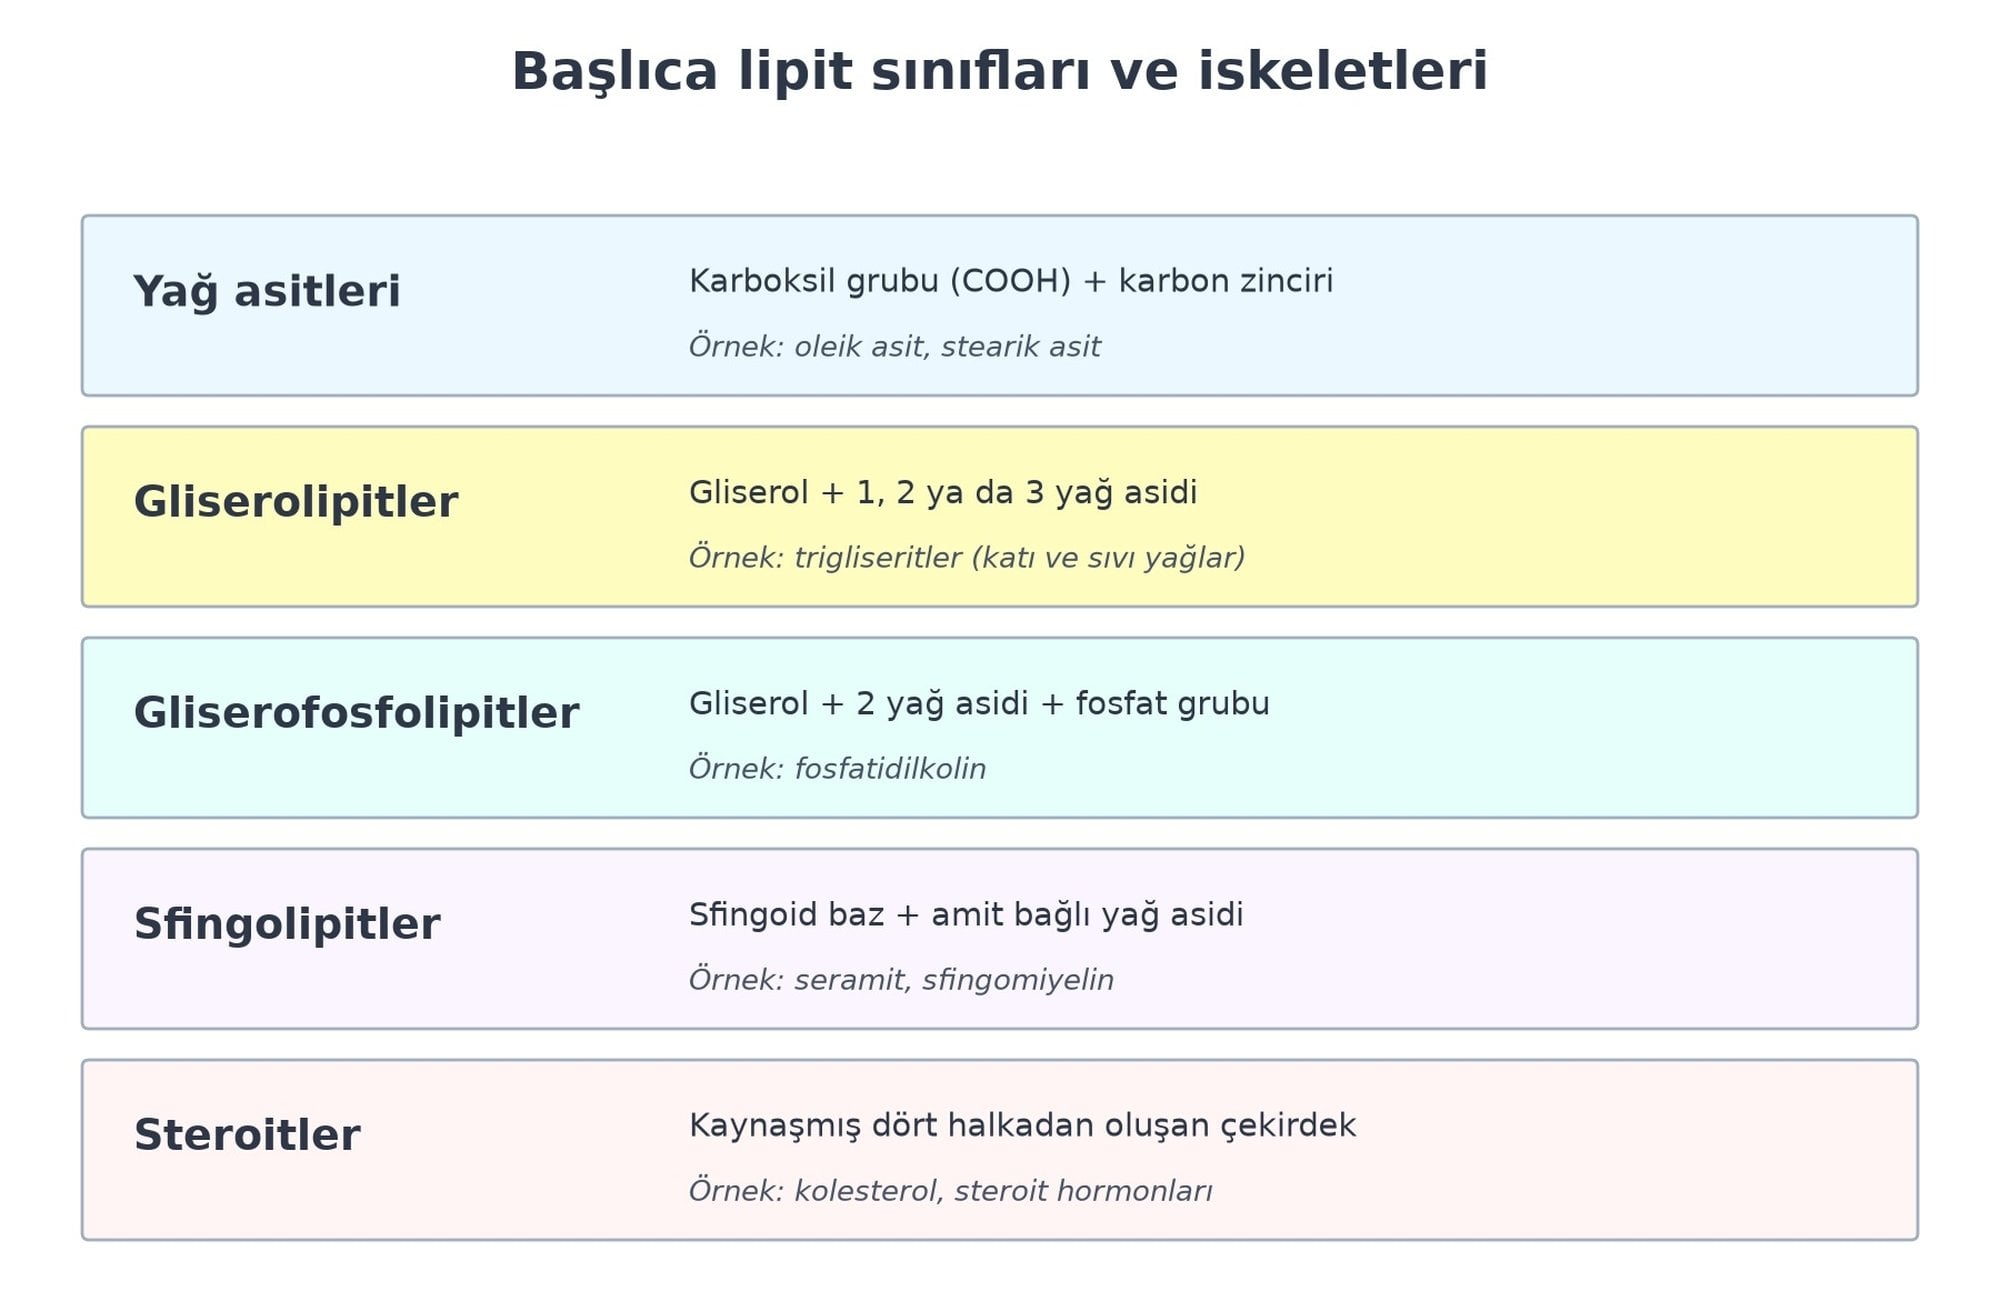
Biyokimyasal sınıflandırmada bu geniş aile, taşıdığı ana iskelete göre ayrı kategorilere bölünmektedir. Bu ayrımda bağlı fonksiyonel gruplar da belirleyicidir. Örneğin yağ asidi türevleri (yağ açilleri), gliserolipitler, gliserofosfolipitler ve sfingolipitler birbirinden ayrı birer lipit kategorisidir, hatta halkalı yapıdaki steroller de kendine özgü ayrı bir alt grup oluşturmaktadır. Bu mimari çeşitlilik canlılardaki görev dağılımına doğrudan yansımaktadır, çünkü bazı lipit çeşitleri dokularda yoğun enerji depolarken bazıları hücre zarlarının yapısal bileşeni olarak işlev görmektedir. Ayrıca hücreler arası sinyal iletiminde de özelleşmiş lipit grupları görev almaktadır. Bu lipitler hormonal etkinliklerin yürütülmesinde de rol oynamaktadır.
Yağ Asitlerinin Yapısı ve Çeşitleri
Modüler lipit sınıflarının çoğunda ortak yapı taşı olan zincirlerin keşfi on dokuzuncu yüzyıldaki sabun çalışmalarına uzanmaktadır. Fransız kimyager Michel-Eugène Chevreul, hayvansal yağlardan üretilmiş sabunu asitle işleyerek asidik özellikler taşıyan kristal bir madde ayırmıştır.[11] Ayrıştırılan bu madde bir yağ asidi molekülüdür. Doğal yağ karışımlarındaki birbirine çok benzeyen karbon zincirlerini tek tek saf halde elde etmek ise titiz bir deneysel strateji gerektirmiştir, çünkü hayvansal kaynaklarda farklı uzunluktaki zincirler bir arada bulunmaktadır.
Chevreul bu karmaşık karışımı çözümlemek için maddelerin fiziksel özelliklerindeki küçük farklardan yararlanmıştır. Önce çeşitli çözücülerdeki kısmi çözünürlük farklarını kullanarak bileşenleri gruplara ayırmış, ardından tekrarlanan kristallendirme adımlarıyla her bir asidi kademeli biçimde saflaştırmıştır. Elde ettiği kristallerin gerçekten tek bir saf bileşik olup olmadığını sınamak amacıyla da erime noktası ölçümlerine başvurmuştur, dolayısıyla yağ kimyası ilk kez nicel ve tekrarlanabilir ölçütlere kavuşmuştur.
Moleküler mimarileri incelendiğinde yağ asitleri karboksilik asitlerdir. Bu asitler çoğunlukla dallanmamış bir alkil (hidrokarbon) zinciri taşımaktadır.[2] Doğadaki örneklerin büyük kısmında toplam karbon sayısı çifttir ve genellikle 8 ilâ 20 karbon arasında değişmektedir. Elbette çift karbon sayısına sahip olma durumu mutlak bir yasa değildir, aksine doğal biyolojik örneklerin çoğunluğunda gözlenen kapsayıcı bir genellemedir. Zincirin bir ucunda yer alan karboksilik asit grubu () hidrofilik özellik gösterirken geri kalan uzun hidrokarbon gövdesi hidrofobiktir, dolayısıyla serbest bir yağ asidi molekülü amfifilik yapıdadır.
Uzun bir karbon zinciri üzerindeki kimyasal bağların yerini karışıklığa yol açmadan belirtebilmek için standart bir sayım düzeni kullanılmaktadır. Yağ asitlerinde sistematik karbon numaralandırması her zaman karboksil () ucundan başlamaktadır. Karboksil grubundaki karbon atomu birinci karbon kabul edilmekte, sonrasında numaralandırma hidrokarbon kuyruğu boyunca karşı uçtaki metil grubuna doğru sırayla ilerlemektedir. Böylece zincir üzerindeki herhangi bir çift bağın konumu her araştırmacı tarafından aynı biçimde okunabilmektedir.
Doymuş ve Doymamış Yağ Asitleri
Karbon atomları arasında kurulan kovalent bağların türü, yağ asitlerini iki ana gruba ayırmaktadır. Alkil zincirindeki karbon-karbon bağlarının tamamı tekli sigma bağı () olan moleküllere doymuş yağ asidi denmektedir. Zincirinde en az bir adet karbon-karbon çift bağı () bulunan moleküller ise doymamış yağ asidi olarak adlandırılmaktadır.[2] Burada "doymuş" nitelemesi karbon iskeletinin bağlayabileceği en fazla sayıda hidrojen atomunu halihazırda taşıdığını anlatmaktadır, oysa çift bağ içeren zincirlerde komşu iki karbon atomu birer hidrojen eksik taşıyarak kendi aralarında ikinci bir bağ kurmaktadır.
Çift bağların sayısı doymamış grubu kendi içinde de iki alt sınıfa bölmektedir. Zincirinde sadece bir tane karbon-karbon çift bağı taşıyan oleik asit gibi bileşikler tekli doymamış yağ asidi sınıfında yer almaktadır, buna karşılık birden fazla karbon-karbon çift bağı taşıyan linoleik asit gibi bileşikler çoklu doymamış yağ asidi olarak tanımlanmaktadır. Dolayısıyla aynı karbon uzunluğuna sahip zincirler bile taşıdıkları çift bağ sayısına göre tamamen farklı kimyasal alt gruplara dağılmaktadır.
On sekiz ya da yirmi karbonlu uzun açık formülleri her defasında tek tek yazmak güç olduğundan biyokimyada iki sayıdan oluşan kısa bir gösterim kullanılmaktadır. İki nokta işaretiyle ayrılan bu yazım biçiminde soldaki sayı moleküldeki toplam karbon sayısını, sağdaki sayı ise zincirdeki karbon-karbon çift bağlarının toplam sayısını vermektedir. Örneğin çoklu doymamış bir molekül olan linoleik asit kısaca 18:2 biçiminde yazılmaktadır, yani molekül on sekiz karbon atomu ile iki adet çift bağ barındırmaktadır.
Çözümlü örnek 1: Stearik asidin 18:0 ve oleik asidin 18:1 kısa gösterimleri nasıl okunmaktadır?
Verilenler: Stearik aside ait 18:0 kısa gösterimi ile oleik aside ait 18:1 kısa gösterimi.
İstenen: Her iki molekülün toplam karbon atomu sayısı, karbon-karbon çift bağı sayısı ve ait olduğu doygunluk sınıfı.
1. adım: İki nokta işaretinin solundaki sayılar zincir uzunluğunu ifade ettiğinden her iki yağ asidinin toplam karbon sayısı doğrudan yazılmaktadır:
2. adım: İki nokta işaretinin sağındaki sayılar doymamışlık derecesini verdiğinden her iki zincirdeki karbon-karbon çift bağı sayısı belirlenmektedir:
Sonuç: Stearik asit (18:0) on sekiz karbonlu ve sıfır çift bağlı bir doymuş yağ asididir, oleik asit (18:1) ise on sekiz karbonlu ve bir çift bağlı bir tekli doymamış yağ asididir.
Çift bağların sayısı molekülün biçimini değiştirmektedir. Bu bağların uzaydaki geometrik dizilişi de molekülün üç boyutlu biçimini farklılaştırmaktadır. Doğal doymamış yağ asitlerindeki çift bağlar çoğunlukla cis düzenindedir. Tekli bağların etrafında karbon zinciri serbestçe dönebilirken çift bağ düzlemsel ve bükülmez bir kilit oluşturmaktadır, dolayısıyla hidrojen atomlarının çift bağın aynı tarafında kaldığı cis düzeni hidrokarbon zincirinde belirgin bir kıvrım meydana getirmektedir. Oluşan bu kalıcı kıvrım, komşu moleküllerin birbirleriyle geniş bir temas yüzeyi kuracak şekilde yan yana sıkıca paketlenmesini zorlaştırmaktadır.
Ancak bütün doymamış yağ asitleri kıvrımlı bir yapı sergilememektedir. Hidrojen atomlarının çift bağın zıt taraflarına yerleştiği trans çift bağı taşıyan bazı doymamış yağ asitleri, tıpkı doymuş yağ asitleri gibi doğrusal ve silindirik bir biçim alabilmektedir. Yani bir zincirde çift bağ bulunması tek başına bükülmüş bir geometri garantisi vermemektedir, çünkü uzaysal bükülmeyi asıl tayin eden unsur çift bağın cis ya da trans yönelimidir.
Moleküllerin yan yana ne ölçüde sıkı istiflenebildiği, maddenin katı durumdan sıvı duruma geçiş sıcaklığına doğrudan yansımaktadır. Karşılaştırılabilir büyüklükteki yağ asitleri incelendiğinde doymuş olanların erime noktaları doymamış olanlardan daha yüksektir. Çünkü doğrusal ve silindirik zincirler geniş temas yüzeyleri boyunca birbirine paralel dizilerek daha güçlü moleküller arası çekim etkileşimleri kurmaktadır, oysa tek bir cis kıvrımı bile bu düzenli istiflenmeyi bozarak erime sıcaklığını düşürmektedir. Aynı karbon sayısında çift bağın cis yerine trans düzenine geçmesi ise doğrusal biçimi büyük ölçüde geri kazandırdığından erime noktasını belirgin biçimde yükseltmektedir.
Çözümlü örnek 2: On sekiz karbonlu stearik asit, oleik asit ve elaidik asidin erime noktaları neden farklıdır?
Verilenler: Doymuş yapısındaki stearik asidin 69 °C olan erime noktası, cis çift bağlı yapısındaki oleik asidin 13 °C olan erime noktası ve oleik asidin doğrusal biçimli trans izomeri elaidik asidin 45 °C olan erime noktası.[8]
İstenen: Eşit karbon sayısına sahip bu üç bileşiğin erime noktaları arasındaki sıcaklık farklarının hesaplanması ve yapısal nedeninin açıklanması.
1. adım: Tamamen tekli bağlardan oluşan doğrusal stearik asit ile tek cis çift bağı taşıyan kıvrımlı oleik asidin erime noktaları arasındaki fark çıkarılarak bulunmaktadır:
2. adım: Doğrusal biçimli trans izomer elaidik asit ile kıvrımlı biçimli cis izomer oleik asidin erime noktaları arasındaki fark hesaplanmaktadır:
Sonuç: Zincirdeki cis kıvrımı sıkı paketlenmeyi engellediği için oleik asit, doymuş stearik asitten 56 °C daha düşük sıcaklıkta erimektedir. Doğrusal şekilli trans izomer elaidik asit ise cis izomeri oleik asitten 32 °C daha yüksek sıcaklıkta (45 °C'de) erimekte, fakat taşıdığı çift bağ nedeniyle stearik asidin 69 °C olan erime noktasına ulaşamamaktadır.
Esansiyel Yağ Asitleri ve Omega Gösterimi
Yirminci yüzyılın ilk yarısında beslenme deneyleri yürütülmüştür. Bu deneylerle yağ asitlerinin sadece kalorilik yakıtlar olmadığı kanıtlanmıştır. George Burr ve Mildred Burr, 1929 yılında diyetlerinde yağ asidi bulunmayan sıçanlarda özel bir eksiklik hastalığı geliştiğini bildirerek yağ asitlerinin besinsel açıdan zorunlu besin öğeleri olduğunu göstermiştir.[11] Bu bulgu beslenme fizyolojisinde yeni bir dönemi başlatmıştır, çünkü karbohidrat ve proteinlerin yeterli verildiği durumlarda bile belirli yağ asitlerinin eksikliği organizmada fizyolojik bozukluklara yol açmaktadır.
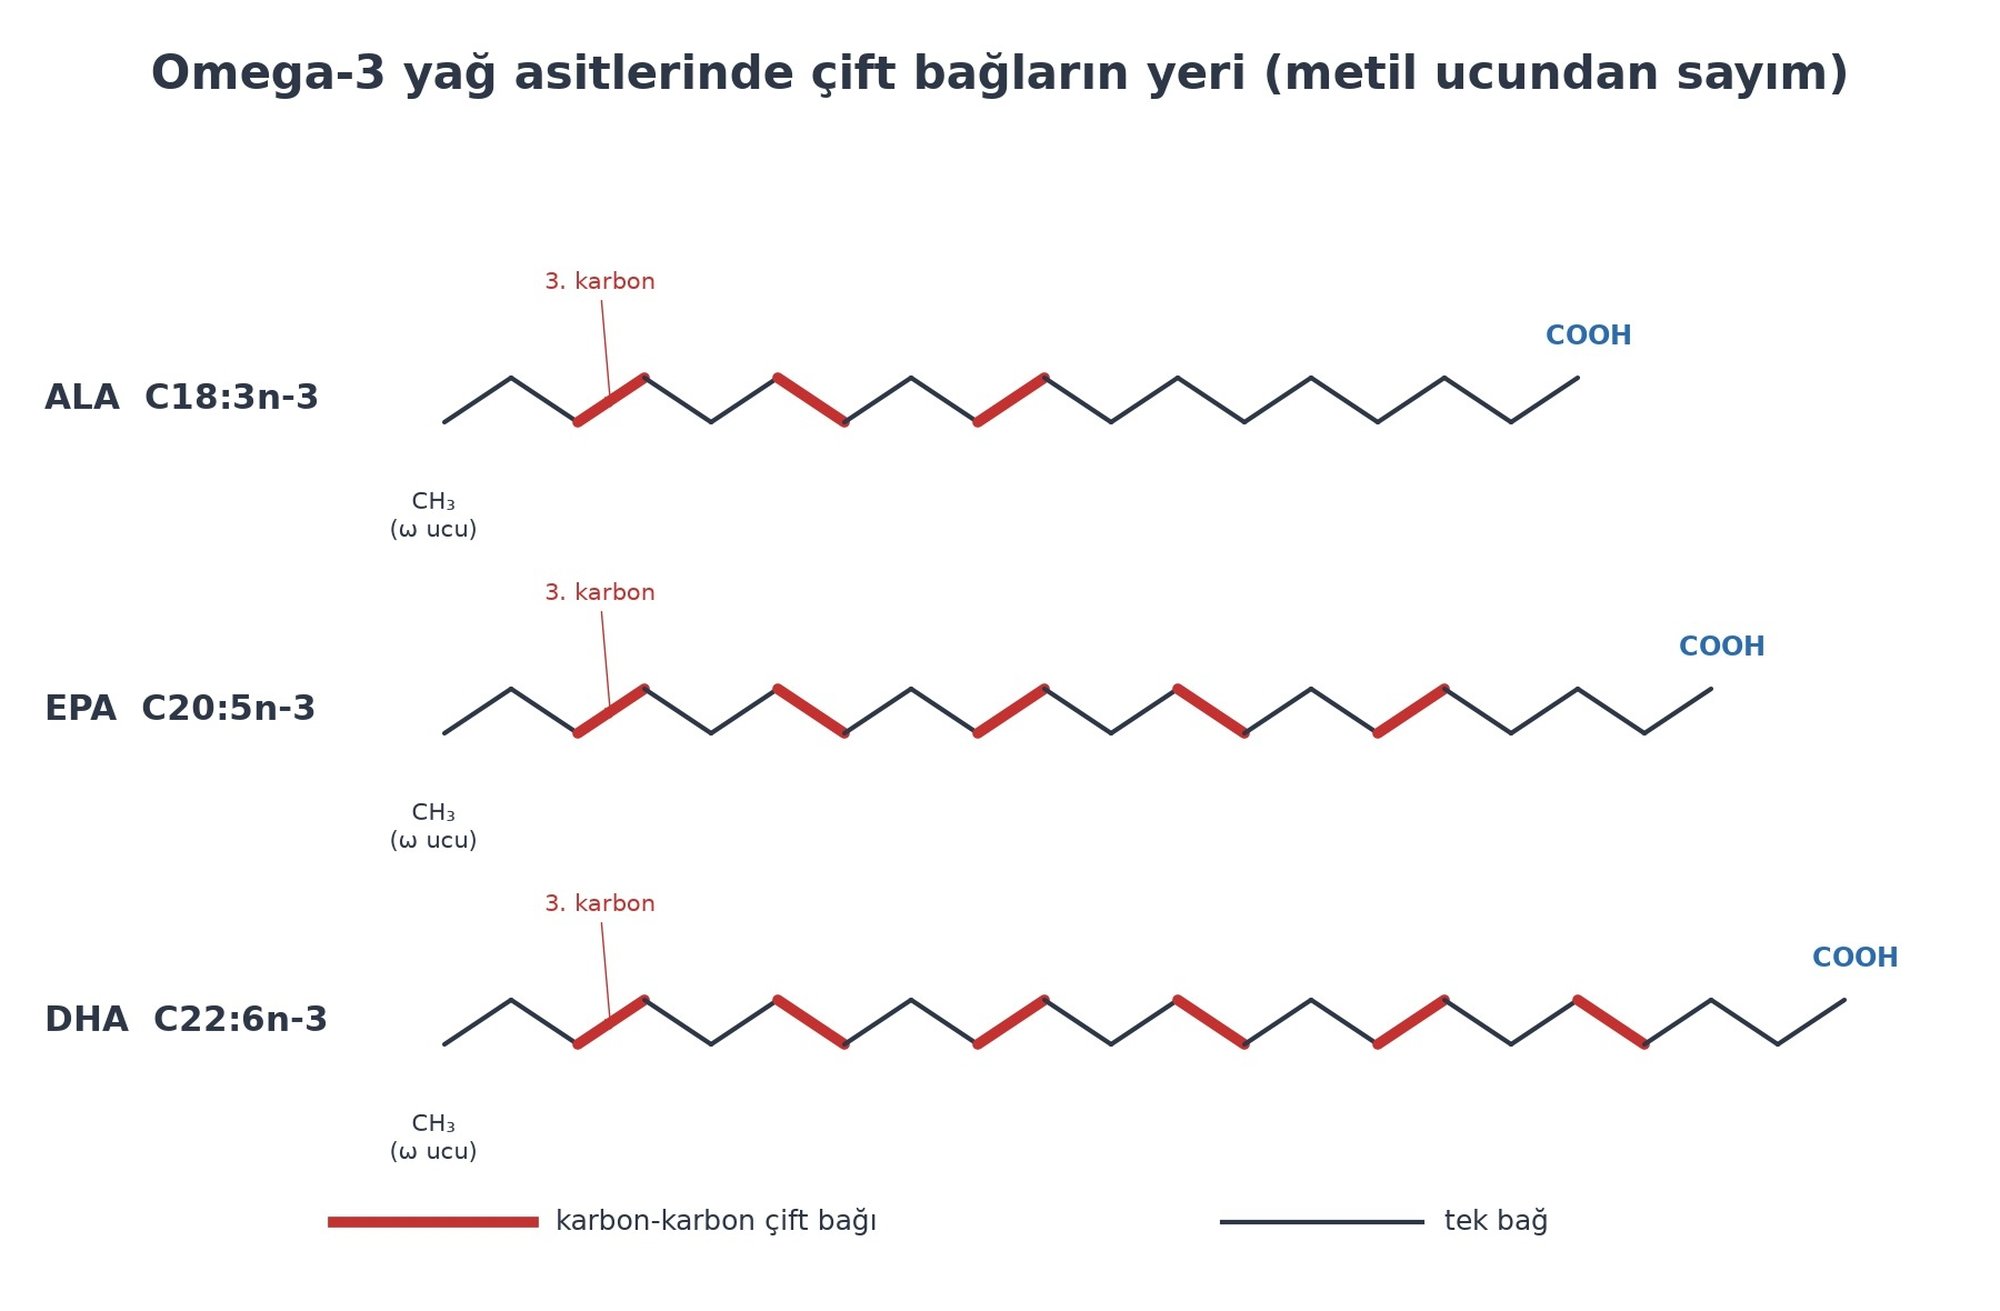
Beslenme biliminde çoklu doymamış zincirler sınıflandırılırken sistematik kimya adlandırmasındaki karboksil ucu yerine zincirin karşı ucundaki metil grubundan sayım yapılmaktadır. Omega-3 yağ asitlerinde metil ucundan üçüncü karbon konumunda bir karbon-karbon çift bağı bulunmaktadır. Benzer şekilde omega-6 yağ asitlerinde ilgili çift bağ metil ucundan altı karbon uzaklıkta yer almaktadır, dolayısıyla zincirin karboksil ucuna yeni karbon birimleri eklense dahi molekülün metil ucuna göre tanımlanan omega ailesi değişmemektedir.
Çözümlü örnek 3: Alfa-linolenik asidin C18:3n-3 gösterimi hangi yapısal bilgileri vermektedir?
Verilenler: Alfa-linolenik asit (ALA) için kullanılan C18:3n-3 kısa gösterimi.
İstenen: Molekülün toplam karbon atomu sayısı, karbon-karbon çift bağı sayısı ve metil ucuna göre ait olduğu omega sınıfı.
1. adım: İki nokta işaretinin solundaki C18 ifadesi hidrokarbon iskeletinin büyüklüğünü belirttiğinden toplam karbon atomu sayısı okunmaktadır:
2. adım: İki nokta işaretinin sağındaki rakam zincirdeki doymamış bağ adedini verdiğinden toplam çift bağ sayısı saptanmaktadır:
3. adım: Gösterimin sonundaki n-3 eki metil ucundan ilk çift bağa kadar olan karbon sırasını gösterdiğinden omega konumu yazılmaktadır:
Sonuç: C18:3n-3 gösterimi, alfa-linolenik asidin 18 karbonlu, 3 çift bağlı ve ilk çift bağı metil ucundan üçüncü karbonda başlayan bir omega-3 yağ asidi olduğunu ifade etmektedir.
İnsan vücudu ihtiyaç duyduğu her konumdaki çift bağı kendi enzimleriyle sentezleyememektedir. Bu nedenle on sekiz karbonlu alfa-linolenik asit (ALA) ile on sekiz karbonlu bir omega-6 üyesi olan linoleik asit insanlar açısından esansiyel yağ asitleri (İng: "essential fatty acids") sayılmaktadır.[9] Yani bu iki temel molekülün besinlerle dışarıdan alınması zorunludur, örneğin keten tohumu, soya ve kanola gibi bitkisel sıvı yağlar beslenmede başlıca ALA kaynakları arasında yer almaktadır.
Omega-3 ailesinin biyolojik açıdan öne çıkan daha uzun zincirli üyeleri ise yirmi karbonlu ve beş çift bağlı C20:5n-3 ile gösterilen eikozapentaenoik asit (EPA) ve yirmi iki karbonlu, altı çift bağlı C22:6n-3 ile gösterilen dokosahekzaenoik asit (DHA) molekülleridir. Soğuk su balıkları ve deniz ürünleri zengin EPA ile DHA kaynakları olarak tanınsa da bu iki molekülün doğadaki ilk üreticisi balıklar değildir. Deniz besin zincirinin en alt basamağında yer alan mikroalgler EPA ve DHA moleküllerini sentezlemekte, sonrasında bu yağ asitleri besin ağı boyunca küçük canlılardan balıklara geçerek dokularda birikmektedir.
Bitkisel besinlerle alınan ALA insan vücudunda, başlıca karaciğerde yürüyen enzimatik adımlarla önce EPA molekülüne ve ardından DHA molekülüne dönüştürülebilmektedir. Fakat bu dönüşüm kapasitesi oldukça sınırlıdır. Hücrelerdeki omega-3 ve omega-6 yağ asitleri metabolik enerji sağlamanın yanı sıra yerel sinyal molekülleri olarak görev yapan eikozanoidler için öncül yapı taşı oluşturmaktadır. Popüler beslenme yazılarında bu iki yağ asidi ailesinin tüketim oranına ilişkin sıklıkla kesin rakamlar ileri sürülmektedir, ne var ki eldeki bilimsel verilerde herkes için geçerli ideal bir omega-6/omega-3 oranı, böyle bir optimum değer gerçekten varsa bile henüz tanımlanmamıştır.
Trigliseritler, Yağlar ve Mumlar
Sabunların asitle parçalanmasıyla serbest yağ asitlerinin elde edilmesinden sonra on dokuzuncu yüzyıl kimyagerleri bu sürecin tersini laboratuvarda kurmaya yönelmiştir. Marcellin Berthelot, 1854 yılında gliserol ve yağ asitlerini bir araya getirerek yağların yapay olarak sentezlenmesi üzerine çalışmıştır. Böylece doğal yağların gizemli birer yaşamsal öz olmadığı, belirli alkol ve karboksilik asit birimlerinin birleşmesiyle kurulan tanımlı organik bileşikler olduğu deneysel biçimde doğrulanmıştır.
Kimyasal adlandırmada propan-1,2,3-triol ya da 1,2,3-trihidroksipropan olarak da bilinen gliserol, her bir karbonunda bir hidroksil () grubu taşıyan üç karbonlu bir alkoldür. Gliserol iskeleti bir, iki veya üç yağ asidiyle birleşmektedir. Ortaya çıkan moleküller gliserolipit sınıfını oluşturmaktadır. Bu birleşme sırasında alkolün hidroksil grubu ile yağ asidinin karboksil grubu arasında gerçekleşen dehidrasyon tepkimesinde bir su (H₂O) molekülü ayrılmakta ve kovalent bir ester bağı kurulmaktadır.[3]
Gliserol molekülündeki üç hidroksil grubunun tamamının üç ayrı yağ asidiyle esterleşmesiyle triesterler oluşmaktadır. Bu triesterlere trigliserit adı verilmektedir. Kurulan her ester bağı ortamdan bir su molekülü uzaklaştırdığı için tek bir trigliserit molekülünün sentezi sırasında toplam üç ester bağı oluşurken üç adet H₂O molekülü açığa çıkmaktadır. Üstelik karboksil uçları ester bağına katıldığı ve gliserolün polar hidroksil grupları kapandığı için ortaya çıkan trigliserit molekülü serbest yağ asitlerine kıyasla bütünüyle polar olmayan, hidrofobik bir karakter kazanmaktadır.
Bir trigliserit molekülündeki üç kuyruğun tamamı aynı yağ asidi türünden meydana gelebilir. Örneğin üç stearik asit molekülünün tek bir gliserolle yaptığı triester olan tristearin ya da üç palmitik asit içeren tripalmitin bu tek tip dizilime örnektir, ancak doğada karşılaşılan trigliseritler sıklıkla iki veya üç farklı yağ asidi türünün aynı gliserol iskeletine bağlandığı karma esterler halindedir. İskelete bağlanan bu hidrokarbon zincirlerinin karbon uzunluğu ile doymuşluk profili, oluşan trigliserit molekülünün erime sıcaklığını ve kıvamını doğrudan şekillendirmektedir.
Katı ve Sıvı Yağların Özellikleri
Hayvanlar ve bitkiler uzun vadeli metabolik enerjiyi depolamak amacıyla trigliserit moleküllerini kullanmaktadır. İngilizce kimya terminolojisinde oda sıcaklığında katı veya yarı katı durumda bulunan trigliserit karışımları "fats" (katı yağlar), oda sıcaklığında sıvı durumda kalanlar ise "oils" (sıvı yağlar) başlığı altında sınıflandırılmaktadır. Aradaki bu fiziksel hal farkı yeni bir fonksiyonel gruptan kaynaklanmamaktadır, çünkü her iki grup da aynı triester omurgasını paylaşırken sıvı yağlarda cis çift bağlı doymamış zincirlerin oranı daha yüksek kalmaktadır.
Gündelik yaşamda hayvansal yağların her zaman katı, bitkisel yağların ise her zaman sıvı olduğu yönünde yaygın bir genelleme yapılmaktadır. Oysa hayvansal köken mutlaka katı yağ anlamına gelmemektedir. Nitekim balıklardan elde edilen trigliseritler de büyük ölçüde sıvı yağ yapısındadır, çünkü soğuk su ortamında yaşayan canlıların dokularındaki yüksek doymamış yağ asidi oranı lipit depolarının düşük sıcaklıklarda dahi katılaşmadan işlev görmesine olanak tanımaktadır.
Canlıların büyük enerji yedeklerini glikojen gibi karbohidratlar yerine trigliserit formunda tutmasının iki temel biyokimyasal nedeni vardır. Birincisi, trigliseritlerdeki karbon atomları glikojene kıyasla kimyasal bakımdan çok daha indirgenmiş durumdadır, dolayısıyla hücresel oksidasyona uğradıklarında birim kütle başına çok daha yüksek miktarda enerji açığa çıkarmaktadırlar. İkincisi ise polar olmayan bu moleküllerin hidrofilik karbohidratlar gibi çevrelerinde su molekülleri tutmadan birbirlerine son derece sıkı biçimde yanaşarak depolanabilmesidir. Sonuçta bir gram yağın içerdiği enerji, bir gram karbohidratın enerjisinin iki katından fazladır.
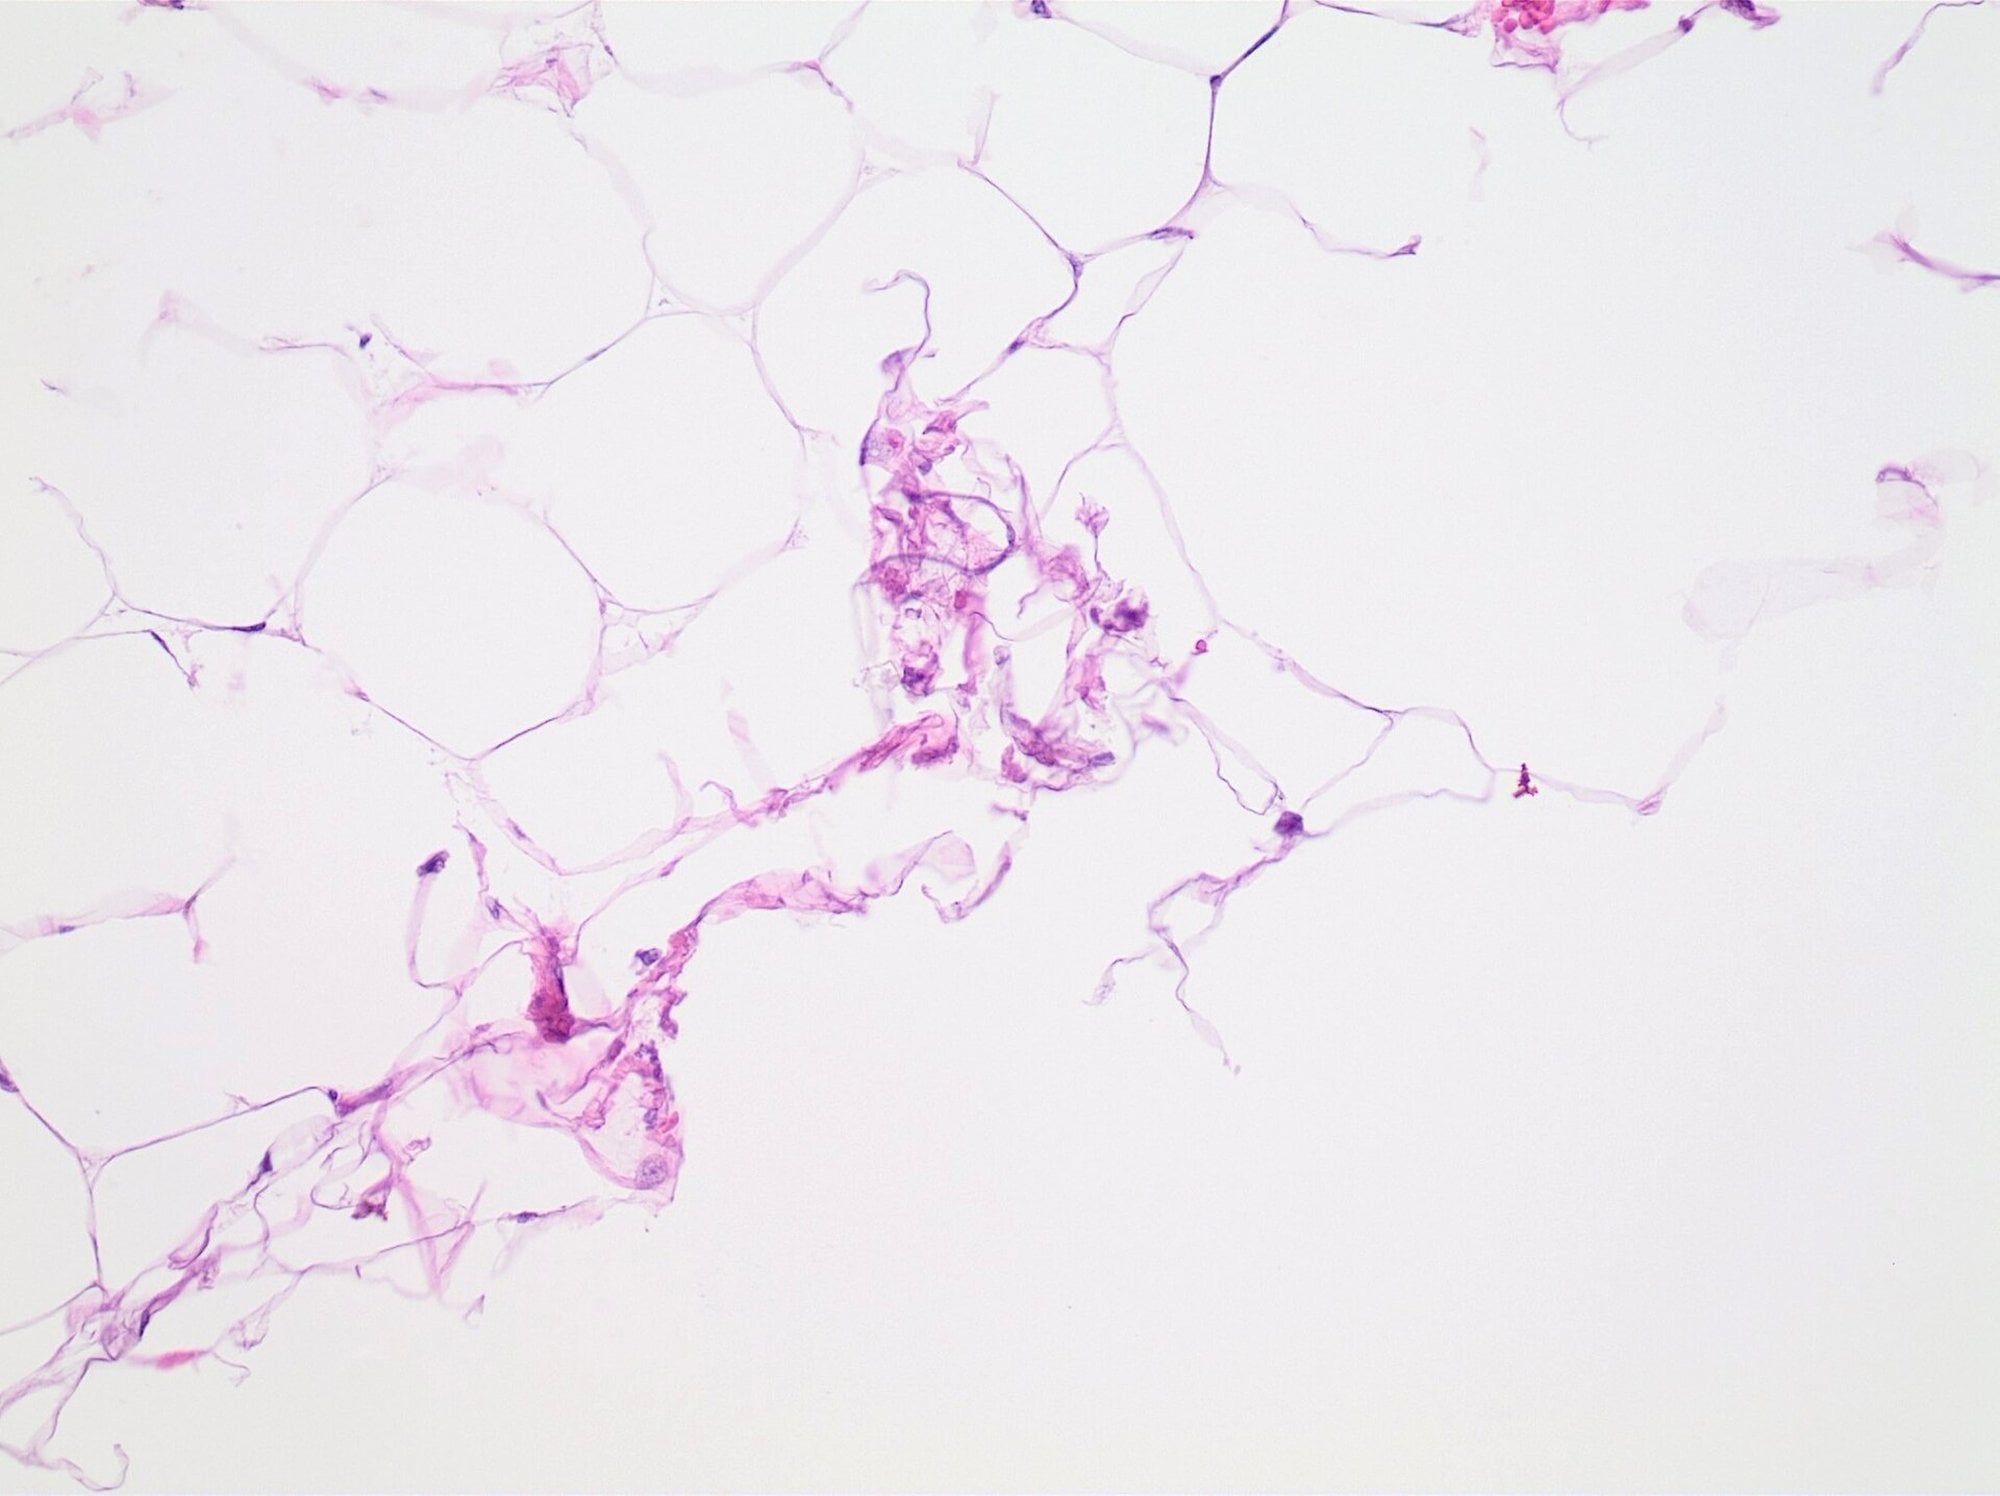
Hayvan vücudunda bu yoğun yakıt güvenli biçimde saklanmaktadır. Bu iş için özelleşmiş hücresel birimler görev yapmaktadır. Yağ hücreleri, trigliserit depolamak üzere özelleşmiş yapılardır. Su bağlamadan sıkıca istiflenen yağ damlacıkları bu hücrelerin içinde dar bir hacme sığmaktadır, böylece hareketli hayvanlar fazladan su ağırlığı taşımak zorunda kalmadan yüksek kapasiteli bir enerji yedeklemesini dokularında muhafaza edebilmektedir.
Hidroliz, Sabunlaşma ve Hidrojenasyon Tepkimeleri
Trigliseritlerin ester bağlarının koparılarak yeniden başlangıç bileşenlerine ayrılması, kurulum tepkimesinin tam tersi yönde su katılmasıyla yürümektedir. Su girişiyle gerçekleşen bu kimyasal ayrışma hidroliz adını almaktadır. Örneğin üç palmitik asit zinciri taşıyan bir tripalmitin molekülü tam hidrolize uğradığında üç su molekülü harcanarak bir gliserol molekülüne ve üç serbest palmitik asit molekülüne ayrılmaktadır, yani dehidrasyonla kurulan üç ester bağı tek tek açılmaktadır.
Aynı parçalanma tepkimesi asit ya da enzim yerine güçlü bir baz varlığında yürütüldüğünde ise sabunlaşma meydana gelmektedir.[3] Baz destekli bu hidroliz tepkimesi sonucunda gliserol ile birlikte serbest asitler yerine yağ asitlerinin sabun niteliğindeki iyonik tuzları üretilmektedir. Tarih boyunca hayvansal iç yağların veya bitkisel yağların kül suyu gibi bazik maddelerle kaynatılarak sabuna dönüştürülmesi doğrudan bu kimyasal ester kırma tepkimesine dayanmaktadır.
Evrim Ağacı ürünlerinden haberdar mısınız?
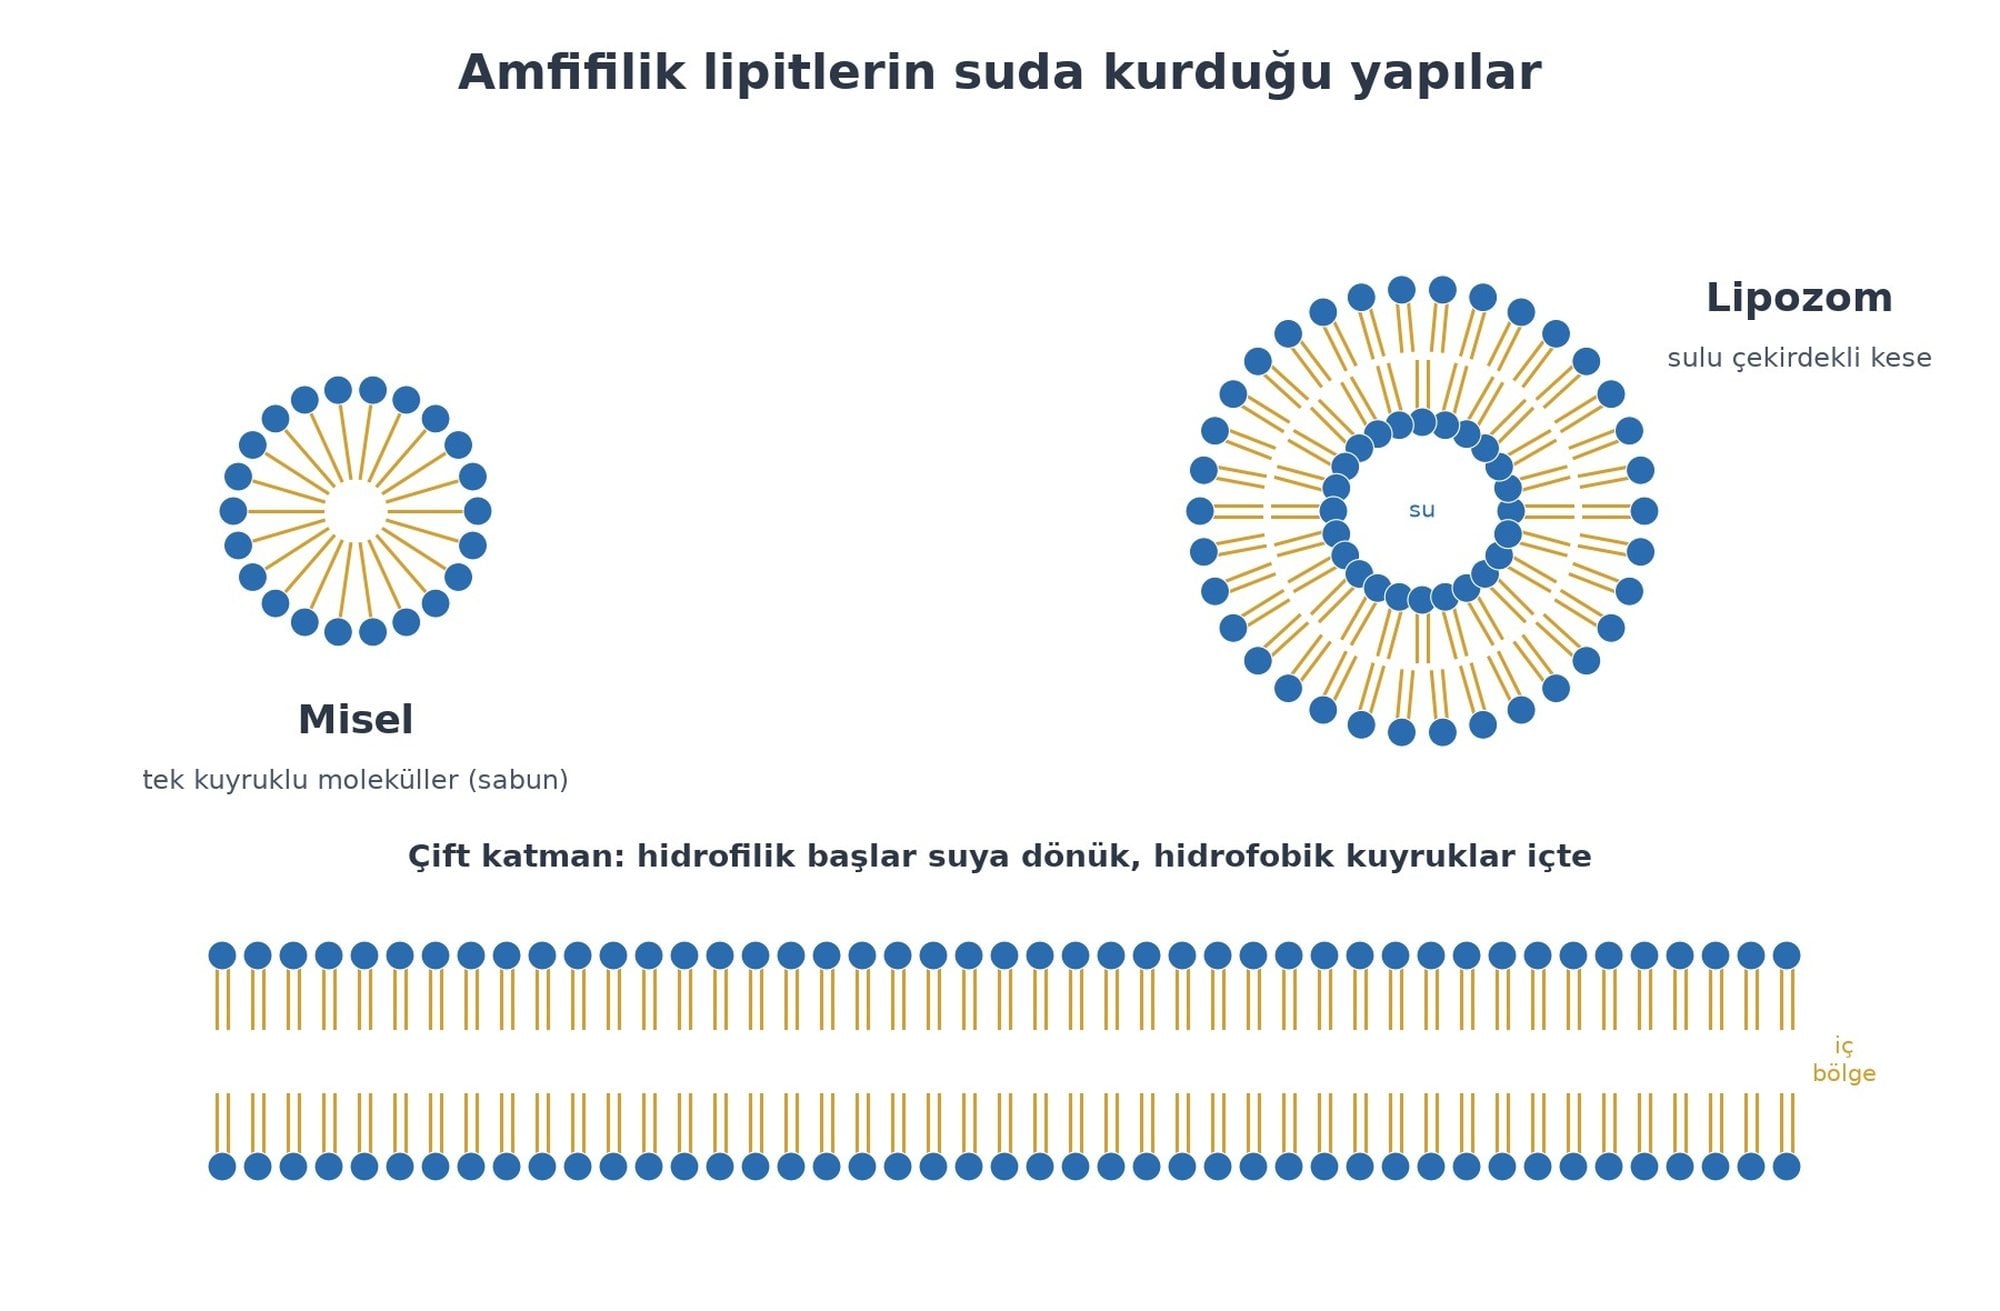
Üretilen sabunun suyla karışmayan yağlı kirleri yüzeylerden nasıl söküp uzaklaştırdığı, amfifilik sabun iyonlarının sulu ortamdaki kümeleşme biçimiyle açıklanmaktadır. Tek hidrokarbon kuyruklu sabun molekülleri yıkama suyunun içinde misel (İng: "micelle") adı verilen mikroskobik küresel yapılar oluşturmaktadır. Bu kürelerin iç merkezinde polar olmayan hidrokarbon zincirleri sudan kaçarak bir araya toplanırken yüklü karboksilat başları dışarıdaki su molekülleriyle temas etmektedir, dolayısıyla sabun miselleri gres gibi polar olmayan maddeleri hidrofobik çekirdeklerinin içine hapsedip yıkama suyuyla birlikte akıp gitmelerini sağlamaktadır.
Trigliseritlerin endüstride ve laboratuvarda verdiği bir diğer önemli tepkime olan hidrojenasyon ise gliserol ester bağlarını değil doğrudan zincirlerdeki karbon-karbon çift bağlarını hedef almaktadır. Sıvı bitkisel yağlardaki doymamış yağ asidi kuyruklarının hidrojen katılarak doymuş duruma dönüştürülmesi zincirlerin doğrusal paketlenmesini kolaylaştırdığı için trigliseritlerin erime noktasını yükseltebilir. Ancak işlem bütün çift bağlar doyurulmadan yarıda kesildiğinde kısmi hidrojenasyon gerçekleşmektedir, hatta bu kısmi işlem sırasında zincirlerde kalan bazı doğal cis çift bağları biçim değiştirerek doğrusal trans çift bağlarına dönüşebilir.
Mumların Yapısı ve Koruyucu Örtüsü
Yağ asitleriyle ester bağı kuran alkol bileşeni bütün lipit sınıflarında üç karbonlu gliserol olmak zorunda değildir. Uzun zincirli yağ asitleri ile yine uzun zincirli ve sadece tek bir hidroksil grubu taşıyan (monohidrik) alkollerin oluşturduğu esterlere mumlar adı verilmektedir. Trigliseritlerde üç yağ asidi kısa bir gliserol gövdesinde toplanırken mumlarda tek bir ester bağının her iki yanında da upuzun hidrokarbon kuyrukları uzanmaktadır.
Bu iki yanlı uzun alkil yapısı molekülün fiziksel davranışını keskin biçimde belirlemektedir. Yapıda su molekülleriyle hidrojen bağı kurabilecek serbest bir polar baş kalmadığı için mumlar son derece güçlü biçimde hidrofobik özellik göstermektedir, üstelik uzun doğrusal zincirlerin yan yana sıkıca dizilmesi oda sıcaklığında sağlam ve su geçirmez bir katman yaratmaktadır. Dolayısıyla mumlar enerji depolamaktan ziyade dış ortamla temas eden yüzeyleri yalıtmakta kullanılmaktadır.
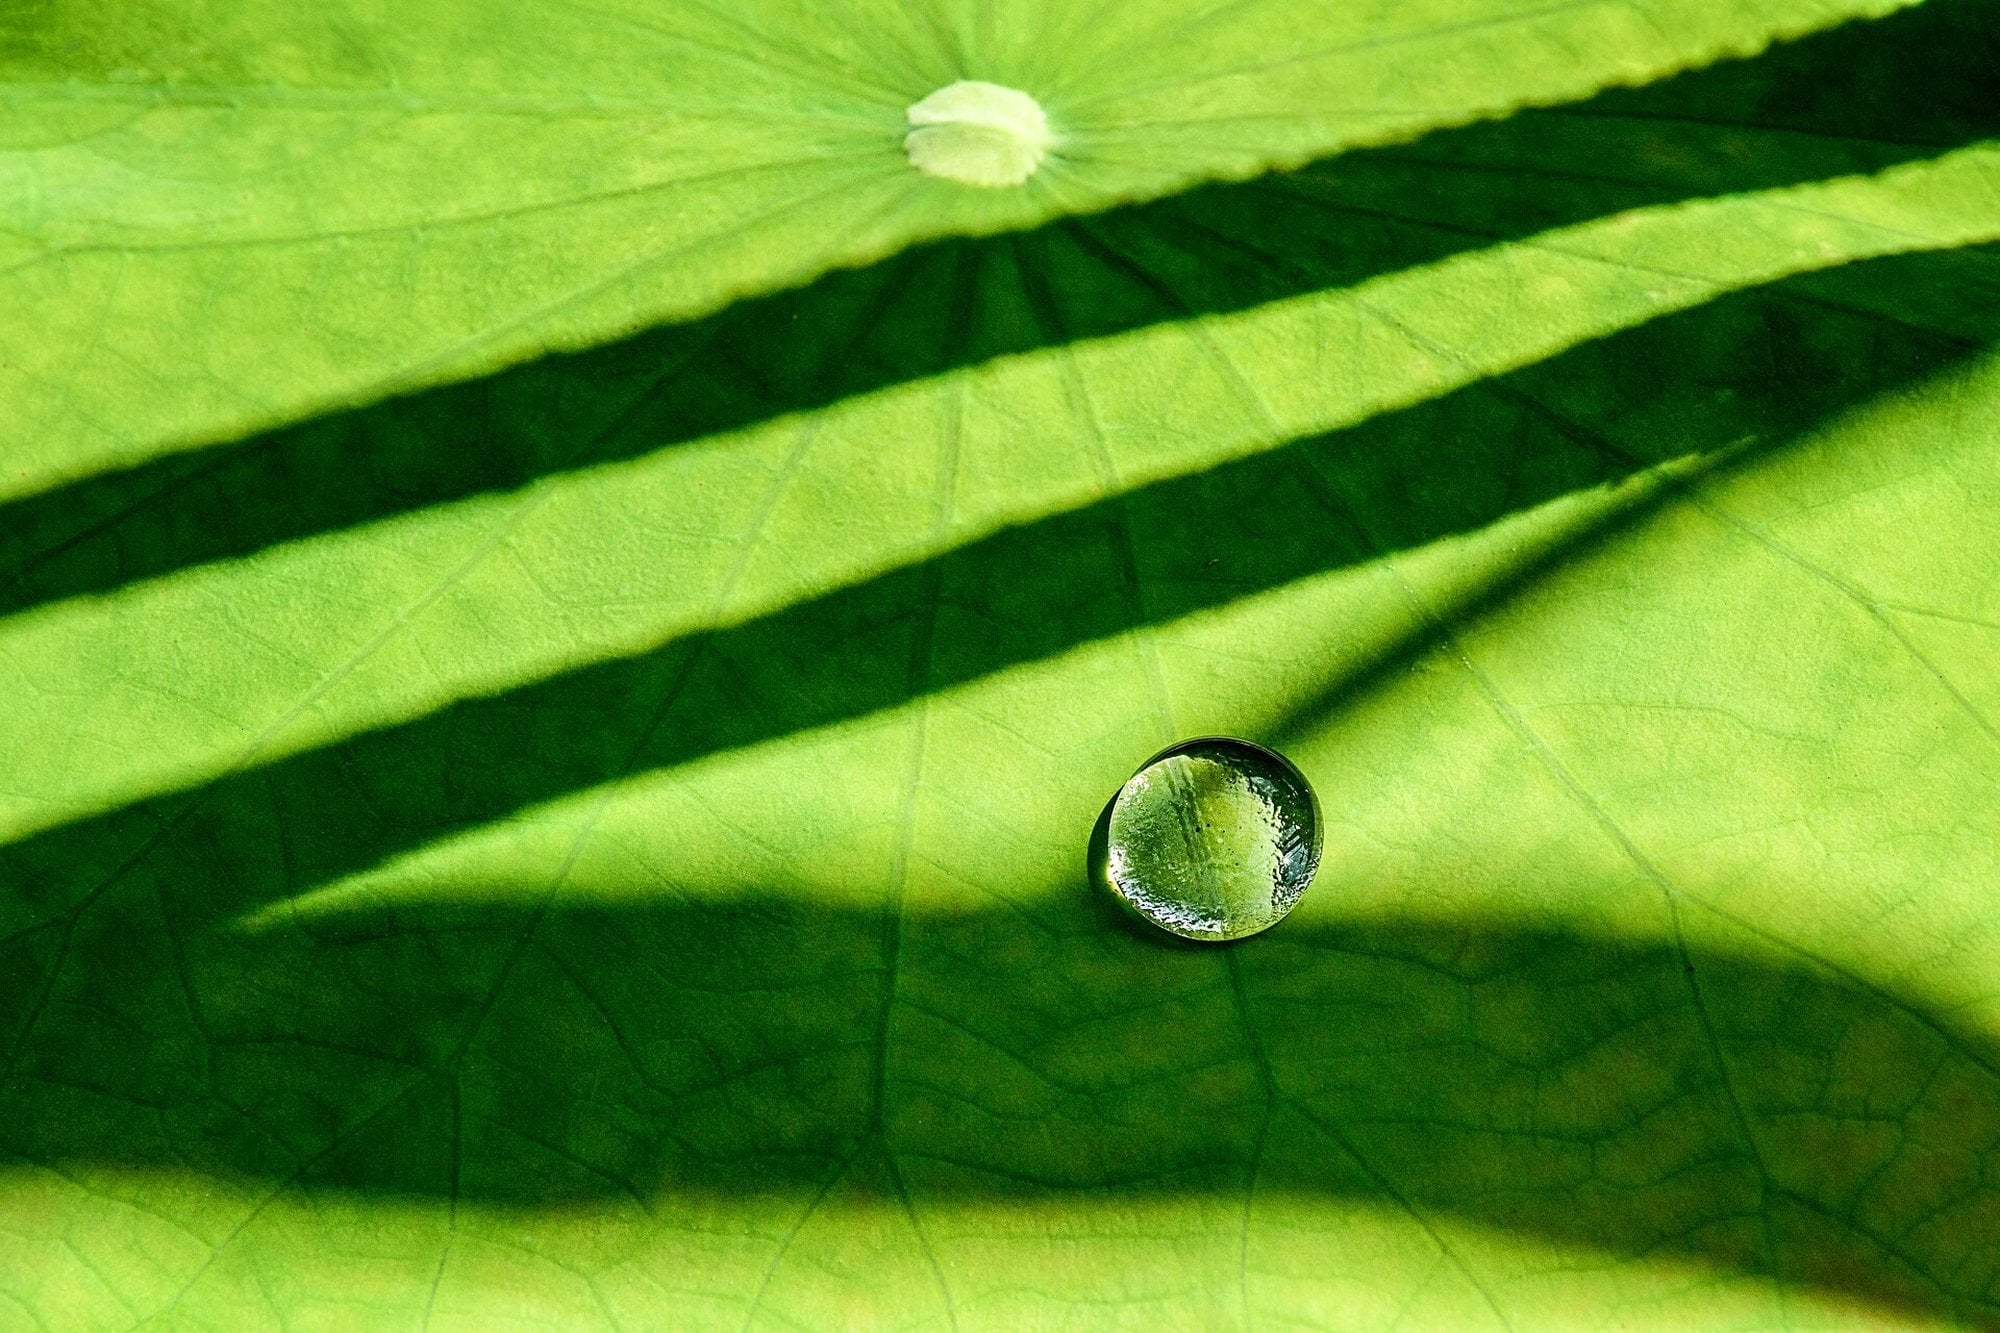
Suyu iten bu kimyasal kalkan özellikle kara bitkilerinin yaşamında belirleyici bir koruma sağlamaktadır. Pek çok bitkinin yaprak ve meyvelerinin dış yüzeyinde ince mumsu örtüler yer almaktadır, örneğin elma kabuğundaki ya da geniş yapraklardaki parlak su tutmaz tabaka bu esterlerden oluşmaktadır. Söz konusu mumsu kaplamalar bitki dokularını kurak havada aşırı su kaybına (dehidrasyona) karşı korumaya katkı sağlayabilir, ayrıca küçük avcılara ve dış etkenlere karşı koruyucu bir fiziksel engel işlevi de görebilir.
Fosfolipitler, Sfingolipitler ve Steroitler
Canlı yapıların hücresel sınırlarını çizen fosfolipit molekülleri, enerjetik depolama yapan trigliseritlerden farklı olarak tek bir hidrofilik baş bölgesi ile iki adet hidrofobik yağ asidi kuyruğunu bir arada bulundurmaktadır. Amfifilik özellikteki bu moleküllerin polar olmayan iki kuyruğu ile polar baş kısmını birlikte taşıması, moleküle konik olmaktan çok genel olarak silindirimsi bir geometri kazandırmaktadır. Tek kuyruklu sabunların aksine iki alkil zinciri taşıyan bu silindirimsi fosfolipitlerde, küresel misel oluşumu sıkışıklık nedeniyle enerjetik açıdan elverişsiz kalmaktadır.[8]
Misel kurmak yerine canlıların sulu ortamında yan yana dizilen bu silindirimsi moleküller kendiliğinden çift katman oluşturmaktadır. Oluşan çift katmanlı dizilimde yağ asitlerinin hidrofobik kuyrukları suyla temas etmeyecek biçimde katmanın iç merkezine doğru birbirine bakmaktadır, buna karşılık hidrofilik özellikteki polar baş kısımları hem iç hem de dış tarafta doğrudan suyla temas eden yüzeyleri meydana getirmektedir. Böylece harici bir kalıba gerek kalmadan sulu iki bölgeyi birbirinden ayıran kararlı bir sınır perdesi kurulmaktadır.
Sulu ortamda bulunan düzlemsel fosfolipit çift katmanlarının açık kenarları da suyla karşılaşmamak için kendi üzerine kapanma eğilimi göstermektedir. Bu kapanma sonucunda lipozom adı verilen küresel yapılar ortaya çıkmaktadır. Bu yapılar laboratuvar ya da hücre ortamında oluşabilmektedir. Lipozomlar, sulu bir iç çekirdeğin bir veya daha fazla kapalı fosfolipit katmanıyla çepeçevre sarıldığı mikroskobik keseciklerdir, dolayısıyla içlerindeki sulu boşlukta suda çözünen maddeleri dış ortamdan yalıtarak taşıyabilmektedirler.
Gliserofosfolipitlerin Kimyasal Mimarisi
Zar yapısına katılan fosfolipitlerin en yaygın grubunu gliserofosfolipit ailesi oluşturmaktadır. Bu moleküller kimyasal bakımdan yine üç karbonlu gliserolün üçlü esterleridir, ancak üçüncü konumdaki grup trigliseritlerden tamamen farklıdır. Gliserol omurgasındaki birinci ve ikinci ester bağı iki ayrı yağ asidi zinciriyle kurulurken üçüncü ester bağı üçüncü bir yağ asidi yerine bir fosfat grubu ile yapılmaktadır.[4]
Bu özgün bağlanma düzeni molekülün iki kutuplu mimarisini doğrudan açıklamaktadır. İlk iki karbona bağlanan yağ asitlerinin uzun hidrokarbon zincirleri yan yana uzanan iki hidrofobik kuyruğu oluştururken üçüncü karbondaki yüklü fosfatlı uç molekülün suyu seven polar başını meydana getirmektedir. Dolayısıyla gliserol omurgasındaki tek bir ester konumunun yağ asidinden fosfata çevrilmesi, suyla karışmayan bir depo yağını zar kuran yapısal bir moleküle dönüştürmektedir.
Üçüncü konumdaki fosfat grubu yalın kalabileceği gibi ikinci bir ester bağı aracılığıyla küçük organik moleküllere de bağlanabilir. Kolin, etanolamin, serin veya inositol bu küçük polar baş gruplarına örnektir. Fosfata bağlanan bu ek molekülün kimliği gliserofosfolipit molekülünün ait olduğu alt sınıfı tayin etmektedir, örneğin fosfat grubunun kolin ile esterleştiği gliserofosfolipitler fosfatidilkolin olarak adlandırılmakta ve biyolojik zarlarda yaygın biçimde bulunmaktadır.
Sfingolipitler, Seramit ve Miyelin Kılıf
Fosfat grubu taşıyan bütün zar lipitleri gliserol omurgasına dayanmamaktadır. Zar yapısında yer alan bir diğer büyük aile olan sfingolipit sınıfının temelinde gliserol alkolü yerine sfingoid bir baz yer almaktadır. Sfingoid bazlar, sfingozin gibi uzun zincirli alifatik aminoalkolleri kapsayan bir kimyasal gruptur.[5] Yani bu omurga molekülünün kendisi zaten uzun bir hidrokarbon kuyruğu ile hem amino hem de hidroksil grupları barındırmaktadır.
Sfingolipitlerin inşasında yağ asidinin iskelete bağlanma biçimi de gliserolipitlerden ayrılmaktadır. Sfingoid omurgadaki amino grubuna bir yağ asidinin ester bağı yerine amit bağı (İng: "amide bond") ile bağlanması sonucunda seramit adı verilen iki kuyruklu temel ara yapı oluşmaktadır. Ardından seramit molekülünün birincil alkol grubuna bir fosforilkolin veya fosforiletanolamin grubu bağlandığında sfingomiyelin ortaya çıkmaktadır, dolayısıyla sfingomiyelinler fosfat içeren zar lipitlerinin hepsinin gliserol temelli olmadığını kanıtlayan doğrudan bir örnektir.
Sfingomiyelin molekülleri omurgalı sinir sisteminin yapısal bütünlüğünde kritik bir görev üstlenmektedir. Bu lipitler, sinir hücrelerinin uzantılarını çepeçevre saran koruyucu bir örtü olan miyelin kılıfın (İng: "myelin sheath") beyaz maddesinde bol miktarda bulunmaktadır.[5] Elektriksel yalıtım sağlayan miyelin kılıf hem sinir uyarılarının iletim hızını belirgin ölçüde artırmakta hem de hassas sinir hücrelerinin fiziksel ve kimyasal açıdan korunmasına temel bir katkı sunmaktadır.
Steroit Halkaları ve Kolesterol Türevleri
Uzun hidrokarbon kuyruklarından oluşan yağ asitleri, trigliseritler ve fosfolipitlerin aksine steroit ailesi bambaşka bir karbon iskeletine sahiptir. Steroitlerin çekirdek yapısı birbirine kaynaşmış dört halkadan meydana gelmektedir.[6] Belirli bir uzaysal düzende birleşen bu dört halkanın üçü A, B ve C harfleriyle gösterilen altılı karbon halkalarından, dördüncüsü ise D harfiyle gösterilen beşli karbon halkasından oluşmaktadır.
Söz konusu dört halkalı gonan iskeletinin üçüncü karbon konumundaki hidrojen atomunun yerine bir alkol () grubunun geçmesiyle türeyen organik alt sınıfa sterol adı verilmektedir. Esnek alkil zincirlerinin tersine kaynaşmış bu dörtlü halka sistemi oldukça sert ve düzlemsel bir gövde yaratmaktadır, dolayısıyla steroller bulundukları biyolojik yapılara mekanik kararlılık kazandırmaktadır. Hayvan dokularında en bol bulunan sterol molekülü ise kolesterol bileşiğidir.
Kolesterol molekülü, üçüncü konumundaki tek hidroksil () grubuyla küçük bir polar baş, kolestan halkalı gövdesi ve buna bağlı hidrokarbon uzantısıyla da hacimli bir hidrofobik kuyruk taşıdığı için tıpkı fosfolipitler ve sfingolipitler gibi amfifilik yapıdadır. Bu özelliği sayesinde hayvan hücre zarlarının çift katmanına doğrudan yerleşerek yapısal bir zar bileşeni olarak görev almaktadır. Ayrıca vücutta yaşamsal öneme sahip pek çok düzenleyici biyomolekülün sentezinde başlangıç maddesi, yani kimyasal öncül olarak kullanılmaktadır:
Steroit hormonları: Böbreküstü bezlerinden salgılanan kortizol ve aldosteron gibi kortikosteroitler ile üreme fizyolojisini yöneten progesteron, östrojenler ve testosteron gibi eşey hormonları kolesterolden türetilmektedir. Safra asitleri: Sindirim kanalında suyla karışmayan büyük yağ damlalarını daha küçük damlacıklara ayırarak emülsifiye eden safra tuzlarının sentezinde kolesterol doğrudan öncül görev yapmaktadır. * D vitamini: Yağda çözünen bir vitamin olan D vitamini insan ve hayvan vücudunda kolesterol türevlerinden sentezlenmektedir.
Çift Katmanlı Hücre Zarı
Gliserofosfolipitlerin sulu ortamda kurduğu çift katman, dış sınırı çizen hücre zarı yapısının yanı sıra hücre çekirdeğini çevreleyen zarların ve çeşitli hücre içi organel zarlarının da ana yapısal bileşenidir. Ne var ki bu zar yapısı katı, donmuş ve hareketsiz bir duvar değildir. Çift katmanı oluşturan lipit molekülleri sahip oldukları ısıl enerji nedeniyle sürekli hareketli, yani dinamik bir durumdadır.
Bu hareketlilik çift katmanın iki yönünde çok farklı hızlarda gerçekleşmektedir. Bir fosfolipit molekülü çift katmanın kendi bulunduğu yarısında (yaprakçığında) komşularıyla yer değiştirerek yanal doğrultuda rahatça kayabilmektedir, ancak suyu seven polar baş kısmının tamamen polar olmayan hidrofobik iç merkezden geçerek karşı yarıya göç etmesini engelleyen yüksek bir enerji bariyeri bulunmaktadır. Dolayısıyla zarın iç ve dış yaprakçıkları yanal olarak akışkan kalmaktadır. Öte yandan katmanlar arası asimetri de korunabilmektedir.
Zar düzlemindeki bu dinamik hareketlilik, biyolojik zarların akışkanlık (İng: "fluidity") özelliğiyle doğrudan ilişkilidir. Akışkanlık derecesini ayarlayan başlıca kimyasal etken ise fosfolipit kuyruklarında yer alan yağ asitlerinin doygunluk durumudur, çünkü tamamen doymuş düz zincirler birbirine sıkıca yaslanarak zarı daha sıkı hale getirmektedir. Buna karşılık kuyruk kısımlarına cis çift bağları nedeniyle kıvrım taşıyan doymamış yağ asitlerinin eklenmesi komşu moleküllerin paketlenmesini gevşetmekte, böylece daha yüksek akışkanlık gösteren bir çift katman yapısı ortaya çıkmaktadır.
Hücre Zarı Modellerinin Tarihsel Gelişimi
Hücre sınırının iki molekül kalınlığında yağsı bir tabaka olduğu düşüncesi yirminci yüzyılın ilk çeyreğinde yürütülen yaratıcı bir nicel deneyle doğmuştur. Evert Gorter ve François Grendel, 1925 yılında yayımladıkları çalışmada insan, tavşan, köpek, kobay, koyun ve keçi kanından aldıkları alyuvarları incelemiştir.[13] Araştırmacılar belirli sayıdaki alyuvardan organik çözücüyle çıkardıkları lipitlerin su yüzeyinde tek sıra halinde yayıldığında kapladığı alanı, incelenen hücrelerin hesaplanan toplam dış yüzey alanıyla karşılaştırmış ve 2:1 oranını bulmuştur.[15] Bu çarpıcı orana dayanarak alyuvarların iki molekül kalınlığında yağsı bir tabakayla kaplı olduğu varsayımını ileri sürmüşlerdir.[13]
Aslında bu öncü deneyde birbirini şans eseri dengeleyen iki ciddi yöntemsel sınır bulunmaktaydı. Birincisi, o günkü ekstraksiyon tekniği kan örneklerindeki alyuvar lipitlerinin tamamını hücrelerden söküp ayıramıyordu, yani ölçülen lipit alanı gerçekte var olandan daha küçüktü. İkincisi ise alyuvar yüzeyini hesaplamak için kullandıkları matematiksel denklem, gerçek hücre yüzey alanını olduğundan daha küçük tahmin ediyordu.
Eksik lipit çıkarımı ile düşük yüzey alanı hesabı ters yönlerde hata üreterek birbirini sıfırladığı için Gorter ve Grendel doğru olan 2:1 oranına ulaşabilmiştir. Dahası 1925 yılındaki bu erken çift katman varsayımı, zar düzleminin içinde lipitlerden başka hiçbir kimyasal bileşene yer ayırmıyordu, dolayısıyla zarların iyonları ve besinleri nasıl seçici biçimde taşıdığını açıklamakta yetersiz kalmaktaydı.
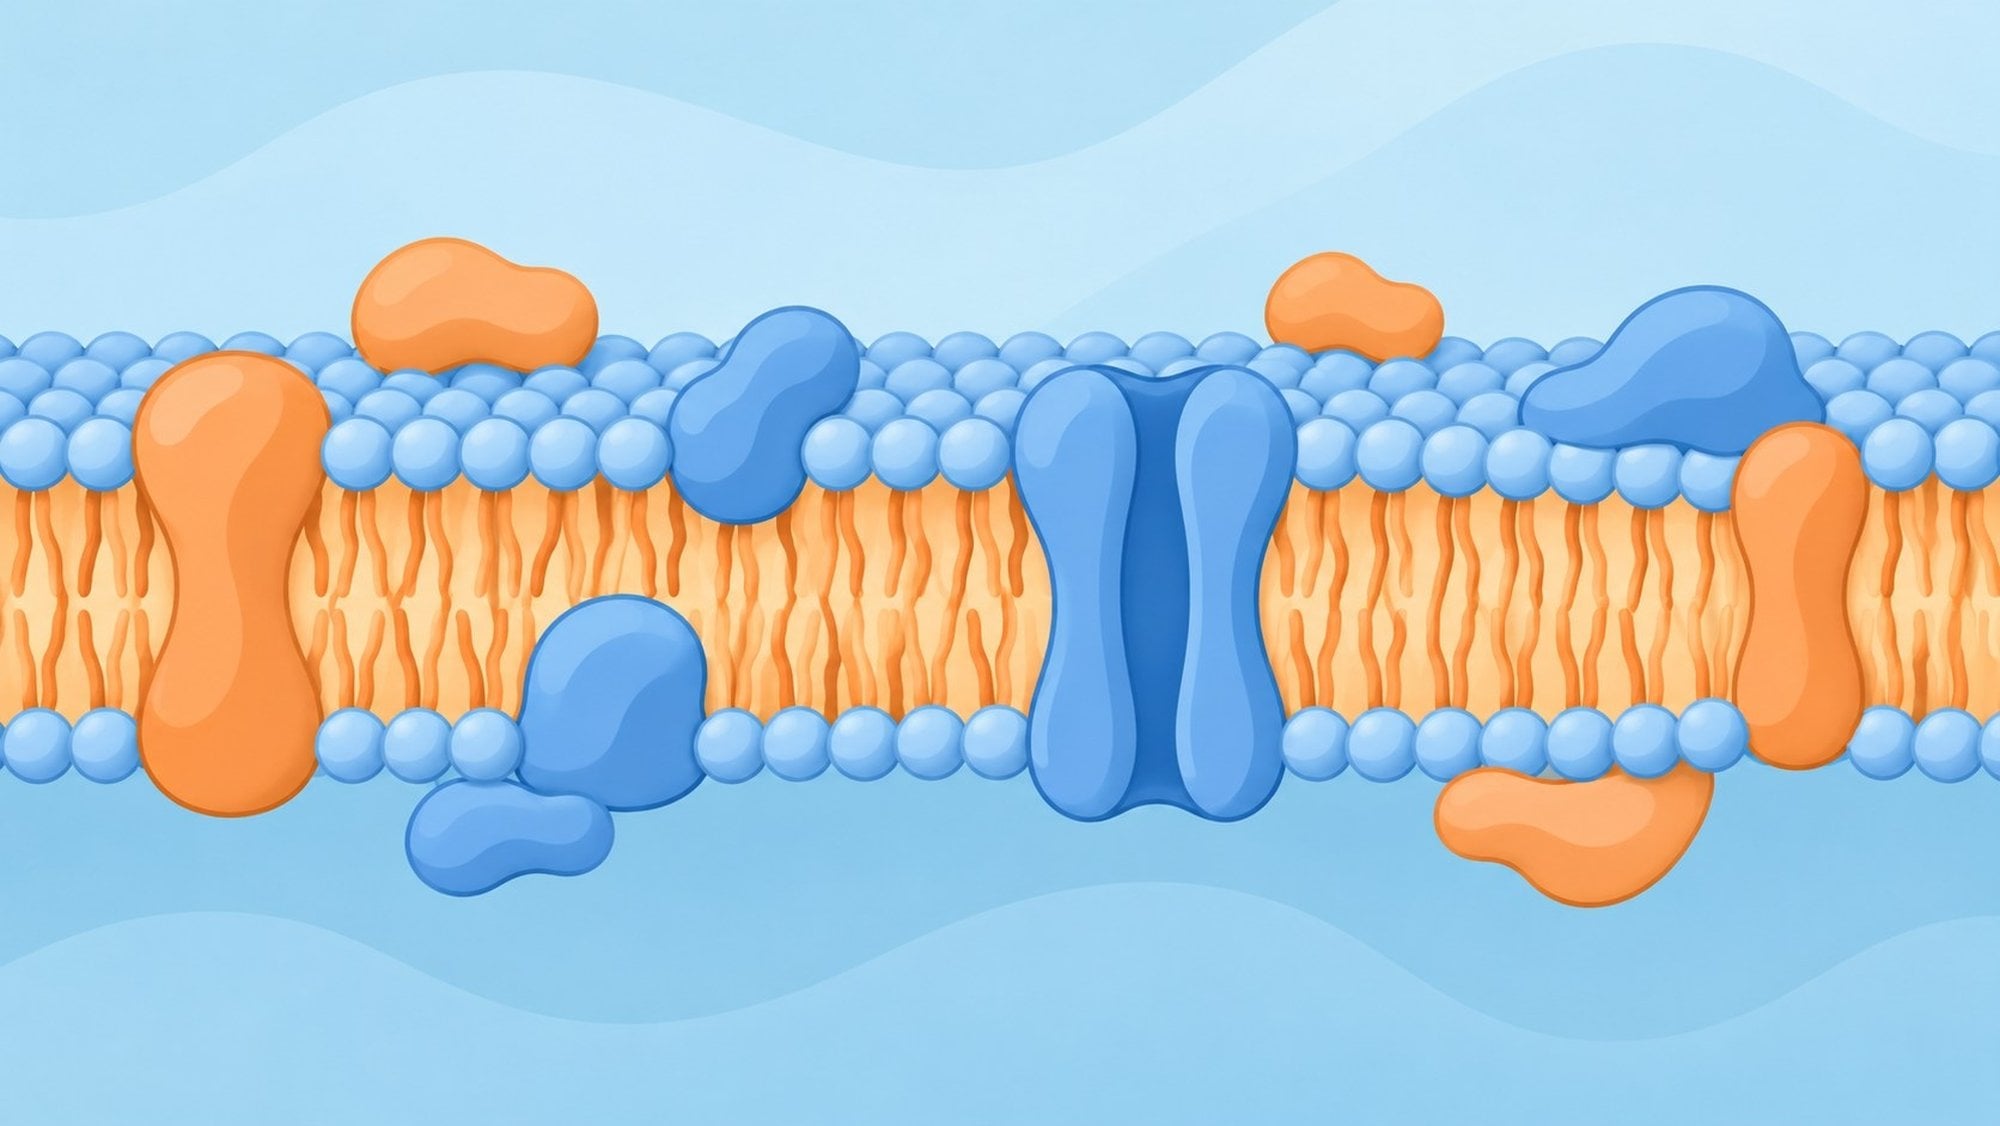
Zar düzlemindeki proteinlere ilişkin çağdaş çerçeve yaklaşık yarım yüzyıl sonra kurulmuştur. Bu çerçeve proteinlerin yerleşimini ve hareketini açıklamıştır. Seymour Jonathan Singer ve Garth L. Nicolson, 1972 yılında yayımladıkları klasik makalede akıcı mozaik modeli kavramını ortaya koymuştur.[14] Bu modelde hücre zarı, belirli biçimde yönlenmiş küresel proteinler ile lipitlerin oluşturduğu iki boyutlu bir çözelti olarak ele alınmaktadır.[14] Çok sayıda protein çift katmana kısmen veya boydan boya gömülü durumdadır, çünkü bu proteinlerin hidrofobik yüzey bölgeleri zar lipitlerinin hidrofobik kuyruklarıyla doğrudan etkileşerek katman içinde kararlı biçimde tutunmaktadır.[15]
Seçici Geçirgenlik ve Zar Taşınımı
İçine işlevsel proteinlerin dağıldığı bir lipit çift katmanı olan hücre zarı, sitoplazmayı kapsayan hücre içini hücre dışı boşluktan ayırmaktadır. Zarın hücre dışına bakan lipit katmanına kısa karbohidrat oligomerlerinin kovalent olarak bağlanmasıyla oluşan glikolipit ve proteinlere bağlanmasıyla oluşan glikoprotein molekülleri ise hücrelerin birbirini tanımasına katkı sağlamaktadır.[7] Örneğin dokulardaki hücrelerin komşularını ayırt etmesi ve bağışıklık yanıtlarında yabancı yüzeylerin saptanması zar dışındaki bu şeker uzantılı kimlik işaretlerine dayanmaktadır.
Sınır görevini üstlenen hücre zarı, farklı iyonların ve organik moleküllerin giriş çıkışına karşı seçici geçirgen özellik göstermektedir. Çünkü çift katmanın iç merkezindeki polar olmayan hidrofobik bölge, elektrik yüklü iyonların ve polar maddelerin hücre içine veya dışına serbestçe geçmesine karşı güçlü bir fiziksel bariyer oluşturmaktadır. Bu seçici bariyerin kontrollü biçimde aşılmasında taşınacak maddenin kimyasal yapısına ve iki yandaki derişim farkına göre üç temel taşıma yolu işlemektedir:
Basit difüzyon: Oksijen (O₂), karbondioksit (CO₂), üre ve su gibi küçük moleküller, hücresel enerji harcanmaksızın yüksek derişimli bölgeden düşük derişimli bölgeye doğru zar üzerinden doğrudan geçebilmektedir. Kolaylaştırılmış taşıma: Çift katmana gömülü integral zar proteinlerinin oluşturduğu seçici kanallar, belirli polar maddelerin veya iyonların basit difüzyona kıyasla çok daha hızlı biçimde yüksek derişimden düşük derişime geçmesini sağlayabilmektedir. * Aktif taşıma: Maddelerin derişim gradyanına (farkına) karşı, yani düşük derişimli ortamdan yüksek derişimli ortama doğru pompalanması gerektiğinde taşıma süreci adenozin trifosfat (ATP) biçiminde metabolik enerji harcanarak yürütülmektedir.[7]
Lipitlerin Vücuttaki Fizyolojik Görevleri
Mikroskobik ölçekte hücre ve organel sınırlarını kuran lipitler, doku ve organ ölçeğinde de bütün organizmanın fiziksel dengesini koruyan yaşamsal görevler üstlenmektedir. Özelleşmiş yağ hücrelerinin deri altında bir araya gelmesiyle oluşan deri altı (subkutan) yağ dokusu, vücudu dış ortamın aşırı sıcaklık değişimlerine karşı yalıtan kesintisiz bir örtü gibi çalışmaktadır. Böylece soğuk havalarda vücut ısısının dışarıya hızla kaybedilmesi önlenmekte ve organizmanın iç sıcaklığının dar sınırlar içinde tutulmasına katkı sağlanmaktadır.
Isı yalıtımının yanında iç boşluklardaki yağ birikimleri mekanik bir yastıklama görevi de görmektedir. Karın ve göğüs boşluğundaki organların çevresini saran viseral yağ dokusu esnek bir koruyucu katman oluşturmaktadır, örneğin kalp, böbrekler ve karaciğer gibi hayati organlar sarsıntılara ve fiziksel darbelere karşı bu viseral yağ yastığı tarafından korunmaktadır. Dolayısıyla vücuttaki yağ dokusunun bütünüyle işlevsiz bir ağırlık gibi görülmesi fizyolojik gerçeklerle bağdaşmamaktadır.
Üstelik yağ dokusu sadece enerji saklayan ve organları yastıklayan pasif bir depo değildir, aynı zamanda kana kimyasal haberciler veren etkin bir endokrin doku gibi davranmaktadır. Nitekim yağ dokusu, merkezi sinir sistemiyle iletişim kurarak leptin hormonunu salgılamaktadır. Bu hormon vücutta iştahı düzenlemektedir.[10] Bu hormonal geri bildirim sayesinde dokularda depolanan trigliserit miktarı ile organizmanın besin alımı ve enerji dengesi arasında doğrudan düzenleyici bir bağ kurulmaktadır.
Sindirim, Lipoproteinler ve Vitamin Emilimi
Besinlerle alınan suyla karışmaz lipitlerin sulu sindirim kanalında enzimler tarafından işlenebilmesi için önce fiziksel olarak çok küçük parçalara ayrılması gerekmektedir. Karaciğerde kolesterolden üretilip ince bağırsağa gönderilen safra tuzları, mideden gelen büyük yağ damlalarını çok daha küçük damlacıklara dönüştürerek emülsifiye etmektedir. Bu emülsifikasyon işlemi yağ kütlesinin suyla temas eden toplam yüzey alanını genişlettiği için sindirim enzimlerinin trigliseritlerdeki ester bağlarına erişmesini kolaylaştırmaktadır.
Yüzey alanı genişleyen besinsel trigliseritlerin bağırsak lümenindeki hidrolizi sonucunda monogliseritler ve serbest yağ asitleri ortaya çıkmaktadır. Suda tek başına çözünemeyen bu hidroliz ürünleri, bağırsak mukozasından emilim aşamasında safra tuzu içeren misellerin yapısına katılmaktadır. Böylece hidrofobik parçalanma ürünleri ince bağırsağın sulu ortamını aşarak emici epitel hücrelerinin yüzeyine kadar taşınabilmektedir.
Bağırsak duvarından emildikten sonra yeniden düzenlenen lipitlerin büyük bölümü su olan kan dolaşımında serbest damlalar halinde taşınamamaktadır. Bu engeli aşmak için lipitler proteinlerle çevrili özel taşıyıcı paketlere yerleştirilmektedir, yani dolaşımdaki lipoprotein parçacıkları lipitleri kan boyunca taşıyarak oksidasyonla enerji üretimi, metabolik kullanım veya yağ dokusunda depolanma amacıyla çeşitli organlara ulaştırmaktadır. Ayrıca besinsel yağların varlığı A, D, E ve K vitaminlerinden oluşan yağda çözünen vitaminlerin biyoyararlanımını doğrudan belirlemektedir, çünkü bu dört vitamin yağ içeren besinlerle birlikte tüketildiklerinde sindirim kanalından en verimli biçimde emilmektedir.
Akciğer Sürfaktanı ve Solunum Mekaniği
Amfifilik lipitlerin su yüzeyleriyle kurduğu fiziksel etkileşim, besin sindirimi ve kan taşınımının ötesinde solunum mekaniğinde de her solukta yaşamsal bir rol oynamaktadır. Akciğerlerde gaz alışverişinin gerçekleştiği mikroskobik hava kesecikleri olan alveollerin iç yüzeyi ince bir su tabakasıyla kaplıdır, ancak su moleküllerinin birbirini güçlü biçimde çekmesi bu nemli yüzeyde kesecikleri büzülmeye zorlayan yüksek bir yüzey gerilimi doğurmaktadır. Alveol keseciklerinin birleşme noktalarında yerleşmiş olan tip 2 alveol hücrelerinin başlıca görevi işte bu gerilimi dengeleyen sürfaktan maddesini üretmektir. Akciğer sürfaktanı, kütlesinin %90 kadarı lipit ve kalan %10 kadarı protein olan özelleşmiş bir lipoprotein kompleksidir.[16]
Sürfaktan karışımındaki %90 oranındaki lipit kütlesinin büyük çoğunluğu fosfolipitlerden meydana gelmektedir. Sürfaktan fosfolipitleri özellikle fosfatidilkolin sınıfından oluşmaktadır. Bu karmaşık yapının yüzey gerilimini düşürücü fiziksel özelliğinden sorumlu ana lipit türü ise iki doymuş palmitik asit zinciri taşıyan dipalmitoilfosfatidilkolin (kısaca DPPC) molekülüdür. Hava ile sıvı ara yüzeyine dizilen bu amfifilik moleküller su moleküllerinin kendi aralarındaki çekim kuvvetini kırarak alveol duvarındaki büzücü gerilimi aşağı çekmektedir.
Bu yüzey etkisi soluk alıp verme döngüsünün her iki evresinde de solunumu ayakta tutmaktadır. Sürfaktan tabakası soluk alma sırasında yüzey gerilimini azaltarak akciğerlerin daha az kas gücüyle genişlemesini sağlamakta, soluk verme işleminin sonunda ise hava keseciklerinin kendi üzerine tamamen kapanıp çökmesini önlemektedir. Akciğer gelişimi tamamlanmadan dünyaya gelen prematüre bebeklerde tip 2 hücreler henüz yeterli miktarda sürfaktan üretemeyebilmektedir, dolayısıyla prematüre bebeklerde görülen bebek solunum sıkıntısı sendromunun ve buna bağlı erken dönem yaşam kayıplarının temel nedeni doğrudan akciğerlerdeki sürfaktan yetersizliğidir.
Sonuç
Lipitler, suda çözünmeme ortak özelliğinde birleşen ancak yağ asitleri, trigliseritler, fosfolipitler, sfingolipitler ve steroitler gibi birbirinden çok farklı kimyasal yapılara ve görevlere ayrılan organik biyomoleküllerdir.[1] Günlük dilde bütün bu molekülleri tek bir "yağ" etiketi altında toplamak, yalnız enerji deposu olan trigliseritleri görünür kılıp canlılığı ayakta tutan yapısal ve düzenleyici lipitleri gözden kaçırmaktadır. Oysa gliserofosfolipitlerin kurduğu çift katman olmadan hücre sınırları çizilememekte, tip 2 alveol hücrelerinin ürettiği fosfolipit ağırlıklı akciğer sürfaktanı olmadan soluk verme sonunda alveoller çökmekte ve besinsel yağlar olmadan A, D, E ile K vitaminlerinin emilimi zorlaşmaktadır.[4], [16]
Bu kimyasal çeşitlilik, beslenme tartışmalarındaki aşırı basitleştirilmiş yargıların neden yetersiz kaldığını da göstermektedir. Örneğin kolesterol bir yandan kalp ve damar tartışmalarında sıkça anılırken diğer yandan hayvan hücre zarlarının yapısal bileşeni ve steroit hormonlarının, safra asitlerinin ve D vitamininin zorunlu öncülüdür.[6] Benzer şekilde kısmi hidrojenasyonla oluşan trans çift bağlı yağ asitleri doğrusal yapılarıyla erime noktasını yükseltirken, alfa-linolenik asit ve linoleik asit insan vücudunda sentezlenemediği için dışarıdan alınması gereken esansiyel yağ asitleridir. Üstelik eikozanoid sinyal moleküllerinin öncülü olan omega-6 ve omega-3 yağ asitleri arasında herkes için geçerli ideal bir oranın varlığı dahi bilimsel olarak henüz tanımlanmamıştır.[9]
- Muhteşem!0
- Tebrikler!0
- Bilim Budur!0
- Mmm... Çok sapyoseksüel!0
- Güldürdü0
- İnanılmaz0
- Umut Verici!0
- Merak Uyandırıcı!0
- Üzücü!0
- Grrr... *@$#0
- İğrenç!0
- Korkutucu!0
Bilimsel bir hata mı gördün?
Evrim Ağacı'na her ay sadece 1 kahve ısmarlayarak destek olmak ister misin?
Şu iki siteden biriyle hemen destek olabilirsin:
kreosus.com/evrimagaci | patreon.com/evrimagaci
Çıktı Bilgisi: Bu sayfa, Evrim Ağacı yazdırma aracıyla 20.11.2026 16:39:01 tarihinde oluşturuldu. Evrim Ağacı'ndaki içerikleri birden fazla editör sürekli gözden geçiriyor, güncelliyor ve geliştiriyor. Bu çıktıdan sonraki güncellemeleri görmek ve içeriğin en güncel hâlini okumak için şu adrese git: evrimagaci.org/s/24196
İçerik Kullanım İzinleri: Evrim Ağacı'ndaki yazılı içerikler orijinallerine hiçbir şekilde dokunulmadığı sürece izin alınmaksızın paylaşılabilir, kopyalanabilir, yapıştırılabilir, çoğaltılabilir, basılabilir, dağıtılabilir, yayılabilir, alıntılanabilir. Ancak bu içeriklerin hiçbiri izin alınmaksızın değiştirilemez ve değiştirilmiş hâlleri Evrim Ağacı'na aitmiş gibi sunulamaz. Benzer şekilde, içeriklerin hiçbiri, söz konusu içeriğin açıkça belirtilmiş yazarlarından ve Evrim Ağacı'ndan başkasına aitmiş gibi sunulamaz.