Hücresel Solunum Nedir? Glikoliz, Krebs Döngüsü ve Elektron Taşıma Zinciri Nasıl İşler?
Bir Glikoz Molekülünden Kaç ATP Elde Edilir?


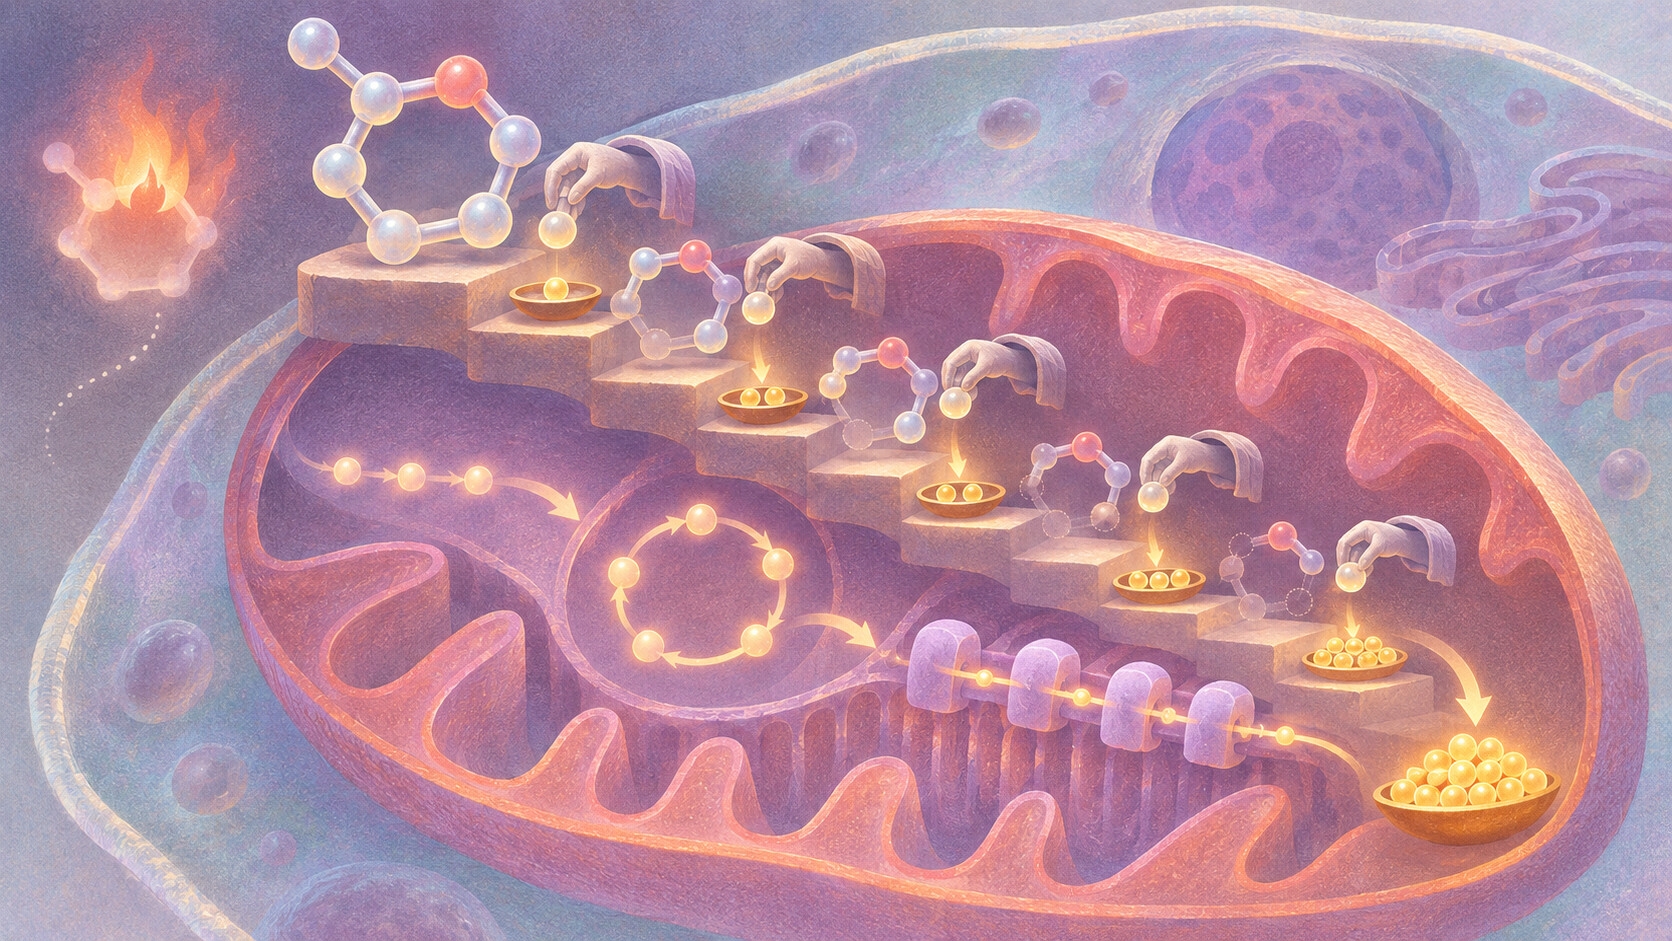
Hücresel solunum, glikozun kimyasal bağlarında depolanan enerjiyi bütün canlıların kullanabileceği bir biçime dönüştüren metabolik yolaklar bütünüdür.[1] Fotosentez yapan üretici canlılar, güneşten gelen ışık enerjisini yakalayarak glikoz moleküllerinin kimyasal bağlarında depolanan kimyasal enerjiye dönüştürmektedir. Ancak hücrelerin bu depolanmış enerjiyi açığa çıkarıp yaşamsal işlerde kullanabilmesi, glikozun basamak basamak yıkıldığı biyokimyasal tepkimeler dizisiyle gerçekleşmektedir. Yani glikoz tek hamlede değil, adım adım parçalanmaktadır.
Günlük dilde solunum denildiğinde akla çoğu zaman akciğerlere hava çekip vermek ya da sadece hayvanların oksijen tüketmesi gelmektedir. Oysa bir meşe ağacının yaprak hücreleri de daldaki bir sincabın kas hücreleri de organik moleküllerden enerji elde etmek için hücresel solunum yapmaktadır. Bitkiler de bu süreçten muaf değildir. Üstelik yeryüzündeki erken yaşam biçimleri, çevrelerinden enerji elde etmek için oksijensiz metabolizmadan yararlanmıştır. Öte yandan bir glikoz molekülünden her koşulda tek ve sabit bir sayıda enerji molekülü çıktığı düşüncesi, bir heksoz başına potansiyel ATP veriminin evrensel bir biyolojik sabit olmadığı bulgusuyla çelişmektedir.[16] Bu yazımızda hücresel solunum tepkimelerini karbon atomlarının, elektronların ve fosfat gruplarının izini süren bilimsel bir model olarak ele alacağız.
Hücresel Solunum Nedir?
Hücresel solunum (İng: "cellular respiration"), glikoz molekülünün bağlarındaki kimyasal enerjiyi açığa çıkarıp tüm organizmaların iş yapmak üzere harcayabileceği ortak bir kimyasal biçime aktaran tepkime dizisidir.[1] Bir hücrenin sınırları içinde meydana gelen ve enerji kullanan ya da enerji açığa çıkaran kimyasal tepkimelerin tamamı metabolizma (İng: "metabolism") olarak adlandırılmaktadır.[2] Hücresel solunum ise bu ağın enerji hasadı yapan merkezidir.
Canlılar dünyasında enerjinin dolaşımı, üreticiler ile tüketiciler arasındaki kimyasal bağ kurma ve yıkma süreçlerine dayanmaktadır. Örneğin fotosentez gerçekleştiren üreticiler, ışık enerjisini kimyasal enerjiye çevirerek altı karbonlu glikoz molekülünün kovalent bağlarında depolamaktadır. Hücrenin pompa proteinlerini çalıştıran enerji, ATP hidrolizinden gelmektedir.[3] Bu nedenle enerjinin önce bir aracı moleküle aktarılması gerekmektedir. Dolayısıyla hem kendi besinini üreten bitkiler hem de bu besinleri tüketen hayvanlar, glikozdaki enerjiyi hücrenin doğrudan kullanabileceği küçük enerji paketlerine çevirmek üzere hücresel solunum yolaklarını işletmektedir.
Basamak Basamak Bir Yıkım: Metabolik Yolaklar
Glikozun hücre içinde parçalanması tek bir patlama halinde gerçekleşmemektedir. Aksine bu süreç bir metabolik yolak (İng: "metabolic pathway") düzeninde ilerlemektedir. Metabolik bir yolak, başlangıçtaki bir veya birkaç substrat molekülünü birbirine bağlı biyokimyasal tepkimeler dizisi boyunca adım adım dönüştüren bir hattır, yani başlangıç maddesi son ürüne ulaşana dek çok sayıda metabolik ara ürün (İng: "metabolic intermediates") üzerinden geçmektedir. Ayrıca bu yolağın her bir tepkime basamağını enzim (İng: "enzyme") adı verilen özelleşmiş bir protein katalizlemektedir.
Hücre metabolizmasını oluşturan bu çok basamaklı yolaklar, enerji akışının yönüne göre iki ana sınıfa ayrılmaktadır. Karmaşık molekülleri daha basit moleküllere parçalayan diziler katabolik yolak (İng: "catabolic pathway") adını almaktadır. Katabolik yolaklarda karmaşık moleküllerin bağlarında depolanan kimyasal enerji serbest bırakılmakta ve bir bölümü ATP'ye aktarılmaktadır. Buna karşılık basit başlangıç moleküllerinden karmaşık moleküller sentezleyen diziler anabolik yolak (İng: "anabolic pathway") olarak tanımlanmaktadır ve bu yolaklar, katabolik yolakların aksine enerji girdisi gerektirmektedir.
Hücresel solunum tepkimeleriyle ilgili bilimsel bir model kurulduğunda, glikoz yıkımı tipik bir katabolik yolak olarak temsil edilmektedir. Bu seçimin basit bir gerekçesi vardır. Çünkü altı karbonlu karmaşık bir şeker molekülü, enzimlerin denetiminde basamak basamak daha basit moleküllere ayrıştırılmaktadır. Katabolik yolaklarda açığa çıkan enerjinin bir bölümü ATP üretiminde kullanılabilmektedir. Üstelik her enzim basamağı hem bir önceki basamağın ürününü teslim almakta hem de bir sonraki basamağın girdisini hazırlamaktadır.
Toplam Denklem Neyi Gösterir, Neyi Gizler?
Karbonhidrat metabolizmasının merkezinde yer alan glikozun oksijen varlığında yıkımı, tek satırlık bir kimyasal eşitlikle özetlenebilmekte ve bu özet denklem C₆H₁₂O₆ + 6 O₂ → 6 CO₂ + 6 H₂O + enerji biçiminde yazılmaktadır. Eşitliğin sol tarafındaki C₆H₁₂O₆ bir molekül glikozu, 6 O₂ ise altı molekül oksijeni temsil etmektedir. Sağ tarafta ise yıkım sonucunda oluşan altı molekül karbondioksit (6 CO₂), altı molekül su (6 H₂O) ve süreç boyunca açığa çıkan enerji yer almaktadır.[2]
Bu özet denklem, sürece giren ve süreçten çıkan toplam atom sayılarını dengelemek açısından kullanışlı bir model sunmaktadır. Örneğin glikozdaki altı karbon atomunun tamamının süreç sonunda altı molekül karbondioksit içinde çıktığı bu eşitlikten hemen okunabilmektedir. Fakat aynı denklem önemli bir ayrıntıyı gizlemektedir. Tepkime gerçekte çok sayıda ara ürün üzerinden ilerlemektedir. Üstelik oksijenin hangi aşamada tepkimeye katıldığı, suyun hangi basamakta oluştuğu ve hangi enzimlerin görev aldığı da bu tek satırlık gösterimde görünmemektedir.
Enerjinin Taşıyıcıları: ATP, Elektron Taşıyıcıları ve Mitokondri
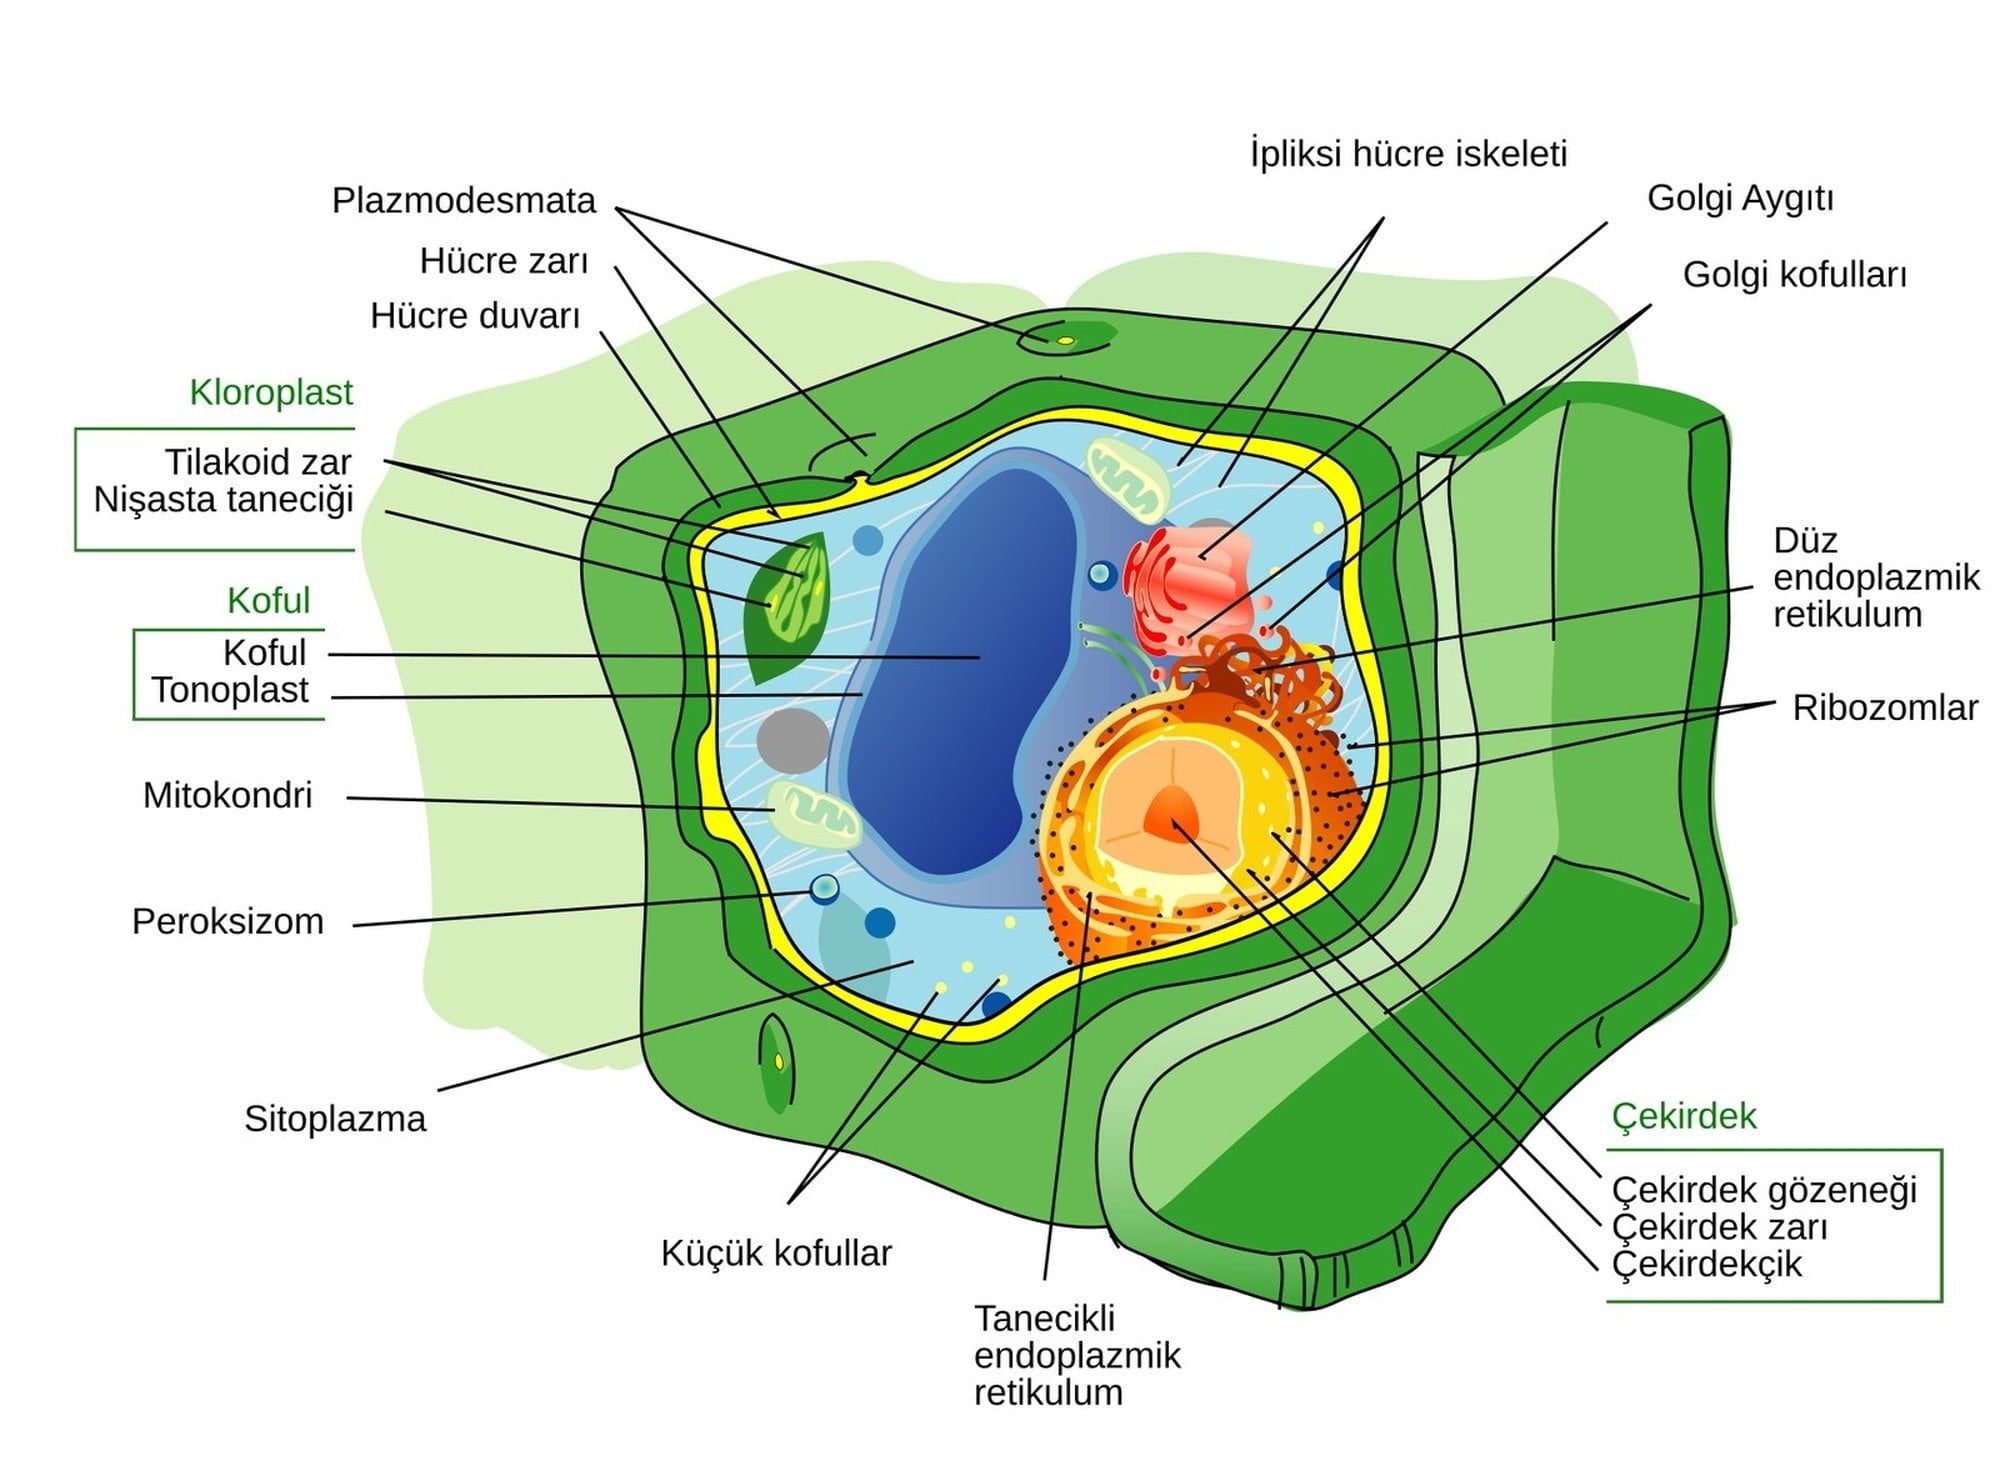
Glikozun yıkım basamaklarını izlemeden önce, açığa çıkan enerjinin hücre içinde hangi moleküllerle taşındığını ve hangi hücresel bölmelerde işlendiğini tanımlamak gerekmektedir. Glikoz yıkımı sırasında hücrenin temel enerji molekülü olan ATP iki farklı yöntemle yeniden üretilmektedir. Bunlardan ilki, fosfat grubunun bir ara üründen ADP'ye doğrudan aktarıldığı yöntemdir. İkincisi ise zar üzerindeki proton farkını kullanarak ATP üreten oksidatif fosforilasyon (İng: "oxidative phosphorylation") mekanizmasıdır.[4]
Oksidatif fosforilasyonun hücre içinde gerçekleştiği yer, canlının hücre tipine göre değişiklik göstermektedir. Zarla çevrili organelleri bulunan ökaryot hücrelerde bu süreç mitokondrinin iç zarında yürütülmektedir. Buna karşılık mitokondrisi bulunmayan prokaryot hücrelerde oksidatif fosforilasyon doğrudan hücre zarında (plazma zarında) gerçekleşmektedir. Yani süreç her iki hücre tipinde de bir zara bağlıdır. Bu nedenle aynı model hem ökaryotlara hem de prokaryotlara uygulanabilmektedir.[4]
ATP: Hücrenin Enerji Parası
Canlı hücrelerin enerji gerektiren süreçlerini yürütmek için kullandığı başlıca enerji sağlama molekülü adenozin trifosfat (İng: "adenosine triphosphate") veya kısaca ATP'dir. ATP molekülünün omurgasını adenozin (İng: "adenosine") adı verilen bir nükleozit oluşturmakta, bu nükleozit de azotlu bir baz olan adenin ile beş karbonlu bir şeker olan ribozun birleşiminden meydana gelmektedir. Bu birime üç fosfat grubu bağlanınca ATP yapısı tamamlanmaktadır.
ATP molekülünün enerji verici özelliği, sondaki fosfat bağının su katılarak koparıldığı hidroliz tepkimesine dayanmakta ve bu tepkime ATP + H₂O → ADP + Pᵢ + serbest enerji denklemiyle gösterilmektedir. Denklemde bir ATP molekülü bir su molekülü (H₂O) ile tepkimeye girdiğinde adenozin difosfat (ADP) ve bir inorganik fosfat grubu (Pᵢ) oluşmakta, aynı anda serbest enerji açığa çıkmaktadır. Çünkü hidroliz ürünleri olan ADP ve Pᵢ, başlangıç maddeleri olan ATP ve suya kıyasla önemli ölçüde daha düşük serbest enerjiye sahiptir. Açığa çıkan enerji bu farka eşittir. Öte yandan ADP ile inorganik fosfattan yeniden ATP sentezlenmesi serbest enerji girdisi gerektirmektedir.
Laboratuvarda standart koşullar altında bir mol ATP'nin ADP ve Pᵢ'ye hidrolizi için hesaplanan serbest enerji değişimi () −7,3 kcal/mol (−30,5 kJ/mol) düzeyindedir.[3] Ancak bu değer standart koşullara aittir. Canlı bir hücrenin içindeki gerçek derişim ve koşullar standart laboratuvar koşullarından farklıdır. Dolayısıyla hücre içi serbest enerji değişimi bu değerle karıştırılmamalıdır. Hücrede ATP hidrolizinin saldığı enerji, enerji gerektiren başka bir süreçle doğrudan eşleştirilmektedir. Bu düzene enerji eşleşmesi (İng: "energy coupling") adı verilmektedir. Bu eşleşme sırasında çoğunlukla bir fosfat grubu hedef moleküle bağlanmaktadır, yani hedef molekül fosforilasyon (İng: "phosphorylation") adı verilen bir süreçten geçmektedir. Örneğin hücre zarındaki sodyum-potasyum pompası (İng: "sodium-potassium pump") bir çevrim dönüp üç Na⁺ iyonunu hücre dışına atmak ve iki K⁺ iyonunu hücre içine almak için bir ATP molekülünü hidroliz etmektedir. Benzer şekilde kas kasılmasında kasılma proteinlerini hareket ettiren enerjiyi de ATP sağlamaktadır.
Elektron Taşıyıcıları ve Redoks Tepkimeleri
Hücresel solunumda enerji, elektronların hareketiyle de taşınmaktadır. Bir bileşikteki bir atomdan elektron koparılması tepkimesine yükseltgenme (İng: "oxidation") adı verilirken, koparılan bu elektronun başka bir bileşiğe eklenmesi indirgenme (İng: "reduction") tepkimesi olarak bilinmektedir. Bu iki tepkime her zaman birlikte yürümektedir. Elektron kaybı ve elektron kazancı birbirinden bağımsız gerçekleşememekte, bu nedenle bu tepkime çiftleri yükseltgenme-indirgenme tepkimeleri veya kısaca redoks tepkimeleri (İng: "redox reactions") olarak adlandırılmaktadır.
Biyokimyasal yolaklarda bir bileşikten koparılan yüksek enerjili elektronları bağlayıp diğer bileşiklere taşıyan özel moleküllere elektron taşıyıcıları (İng: "electron carriers") denilmektedir. Hücresel solunumun en önemli elektron taşıyıcılarından biri nikotinamid adenin dinükleotit (İng: "nicotinamide adenine dinucleotide"), kısaca NAD'dir. Bu taşıyıcının elektron almamış yükseltgenmiş biçimi NAD⁺ olarak yazılmakta ve bu molekül bir substrattan iki elektron ve bir proton (H⁺) kabul ettiğinde indirgenmiş biçimi olan NADH oluşmaktadır.
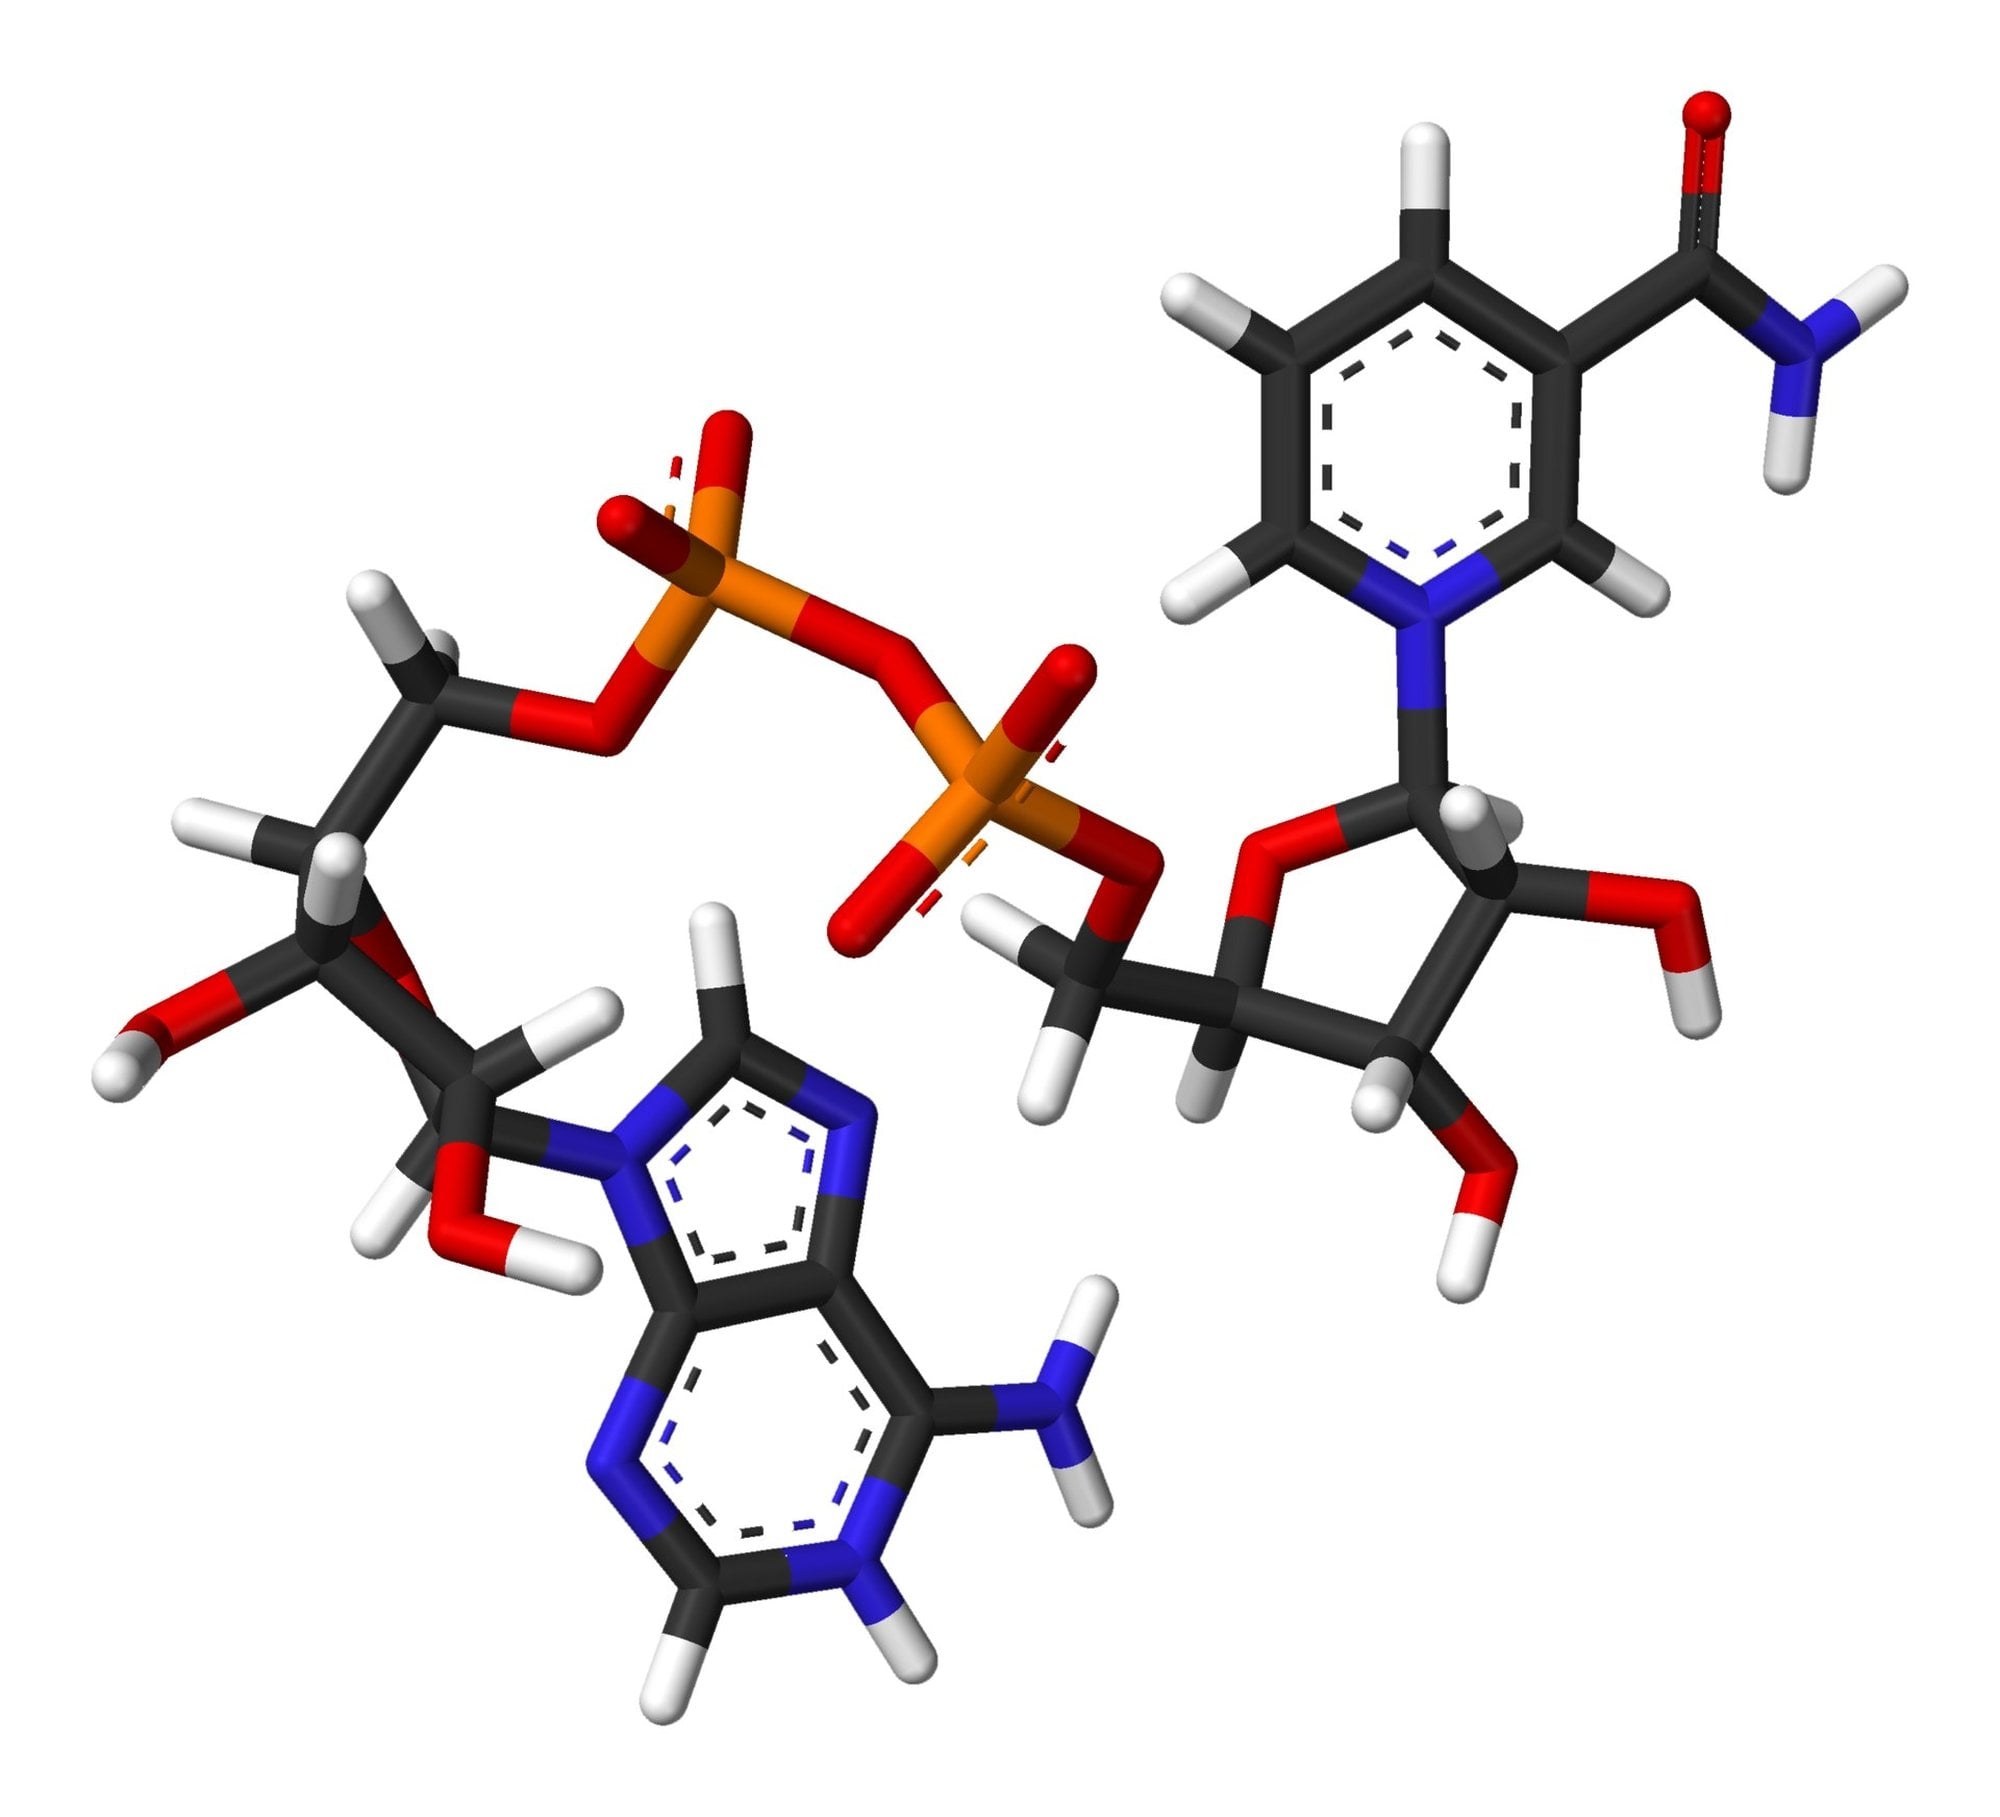
Solunum tepkimelerinde görev alan ikinci başlıca elektron taşıyıcısı ise flavin adenin dinükleotit (İng: "flavin adenine dinucleotide"), kısaca FAD'dir. FAD taşıyıcısı, riboflavin olarak da bilinen B₂ vitamininden türetilmektedir. Bu molekül yüksek enerjili elektronları ve protonları aldığında indirgenmiş biçimi olan FADH₂ haline geçmektedir. Hem NADH hem de FADH₂, glikozun yıkım basamaklarında toplanan elektronları son aşamadaki ATP üretim hattına taşıyan hareketli taşıyıcılardır.
ATP'nin Doğrudan Üretimi ve Mitokondrinin Bölmeleri
ATP yenilenmesinin iki yolundan daha doğrudan olanı substrat düzeyinde fosforilasyon (İng: "substrate-level phosphorylation") olarak adlandırılmaktadır. Ayrıca bu mekanizmada zar gradyanlarına ihtiyaç duyulmamaktadır. Başka bir organik moleküle kovalent bağla bağlı duran bir fosfat grubu doğrudan ADP molekülüne aktarılmakta ve ATP oluşturulmaktadır. Örneğin glikoz yıkımının ilk evrelerinde doğrudan üretilen ATP molekülleri bu yolla sentezlenmektedir.
Ancak geriye kalan ve çok daha yüksek miktarda ATP üreten süreçlerin anlaşılması, ökaryotlardaki mitokondri (İng: "mitochondrion") organelinin iç mimarisini tanımayı gerektirmektedir. Mitokondri, biri dışta diğeri içte olmak üzere iki ayrı zarla çevrili bir yapıdır. Dış zar organelin sınırını çizerken iç zar çok sayıda kıvrım yapmaktadır. Bu kıvrımlara krista (İng: "cristae") denmektedir.
Bu çift zarlı düzen iki ayrı bölme yaratmaktadır. Dış zar ile iç zar arasında kalan dar bölge zarlar arası boşluk (İng: "intermembrane space") olarak adlandırılmakta, iç zarın çevrelediği en merkezdeki sıvı dolu boşluk ise matriks (İng: "matrix") adını almaktadır. Bu bağlamda hücresel solunum modelinde hangi enzimin hangi bölmede çalıştığını ve protonların hangi bölmeden hangisine geçtiğini bilmek, sistemin ATP'yi nasıl ürettiğini çözmenin anahtarıdır.
Glikoliz: Glikozun Sitozolde İkiye Bölünmesi
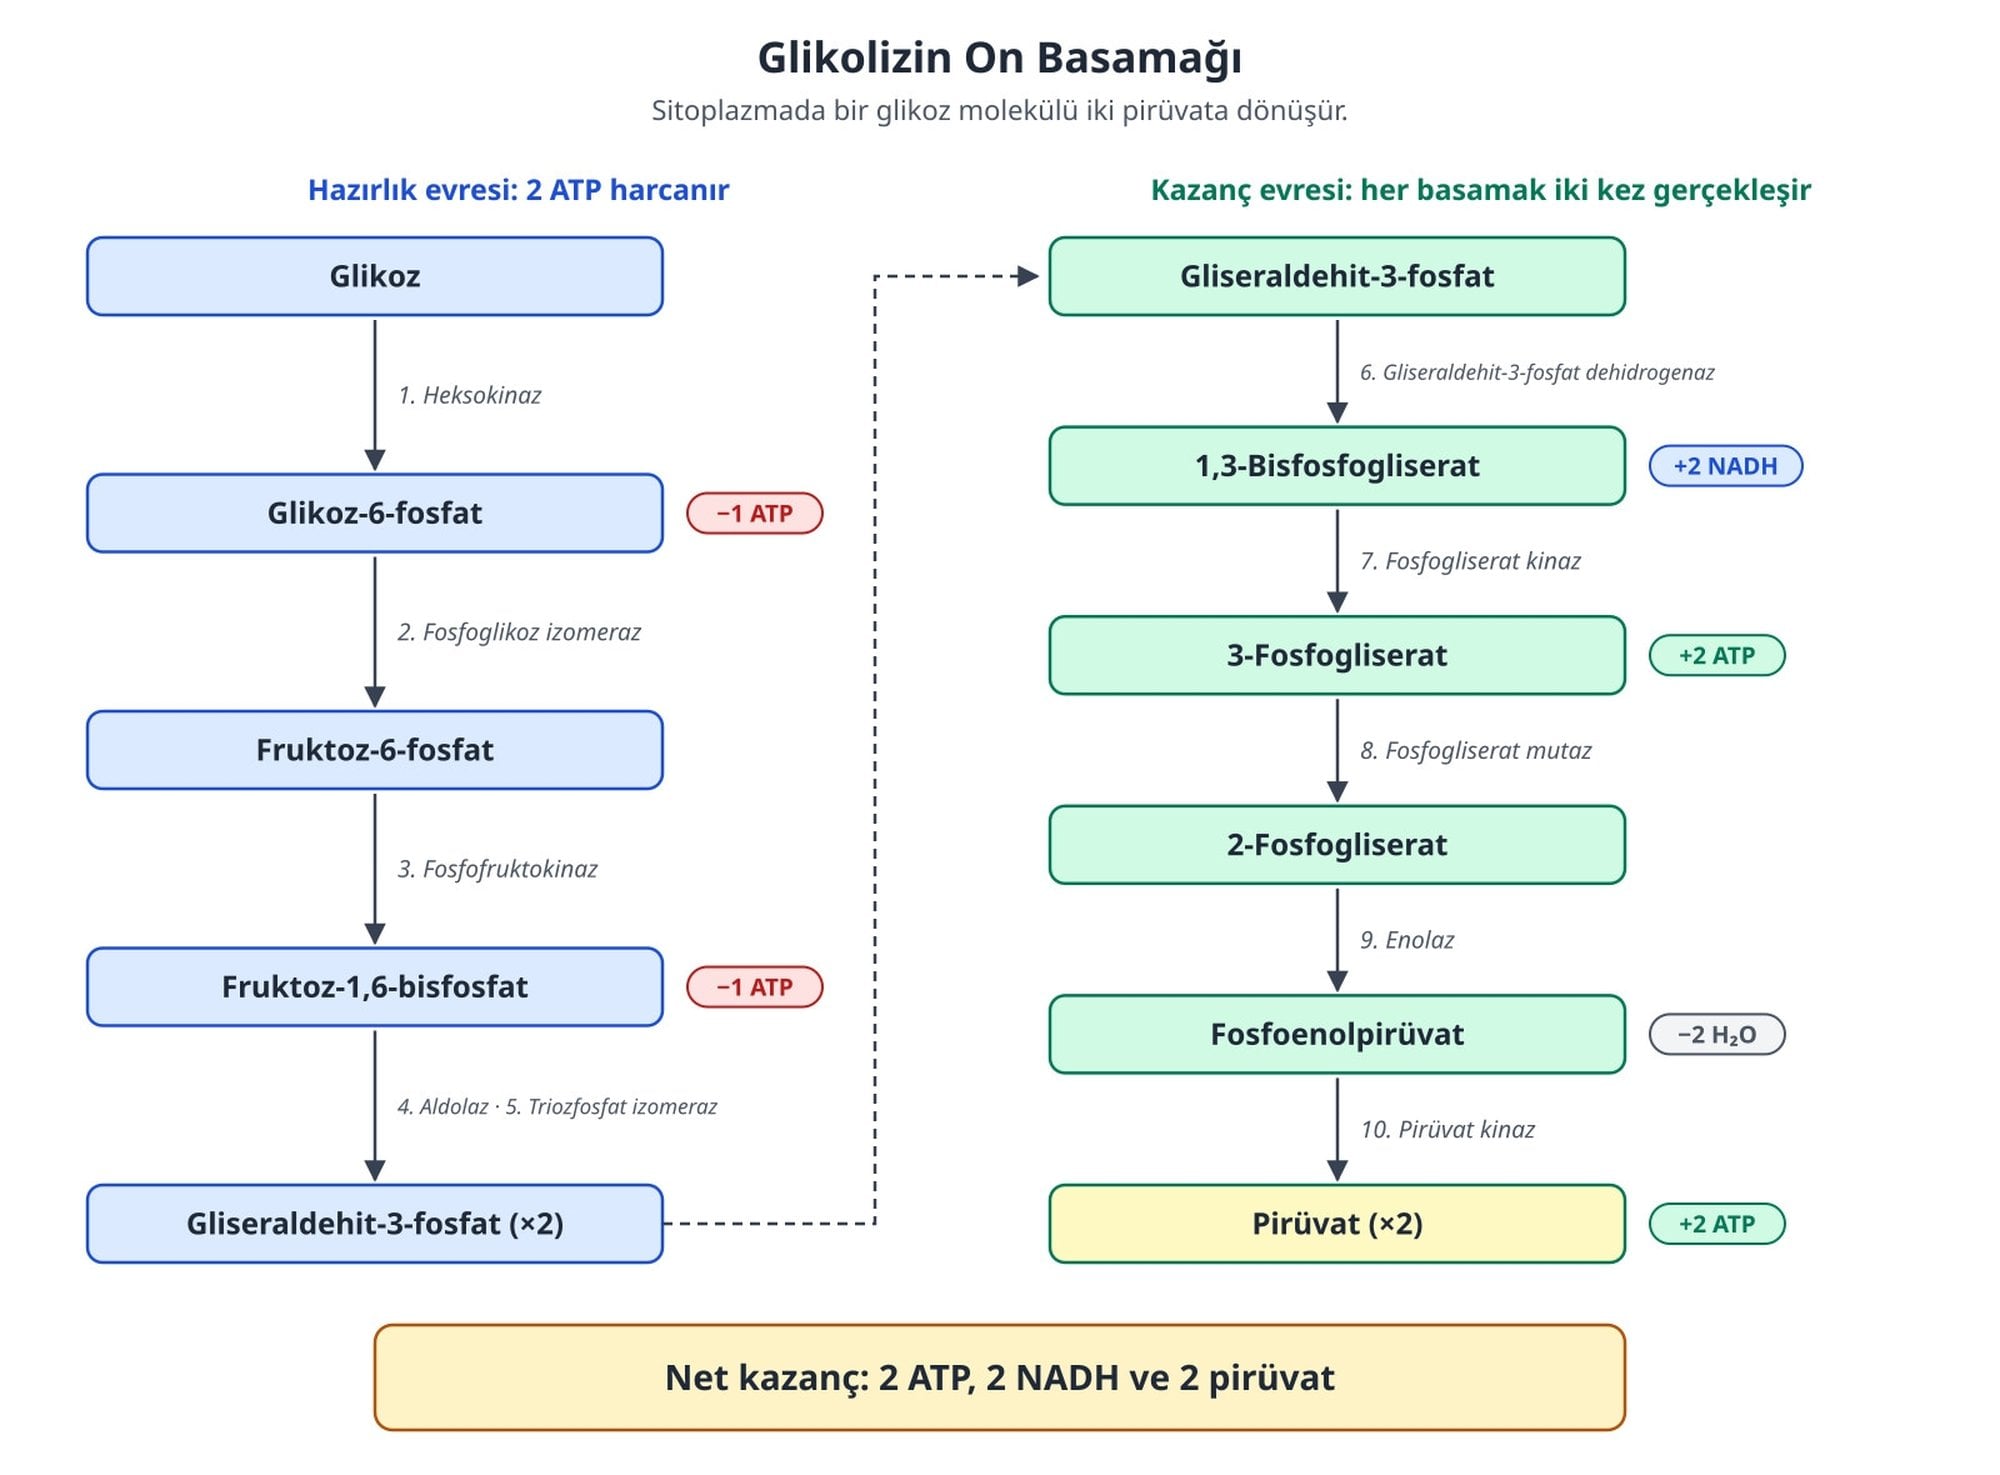
Glikoliz (İng: "glycolysis"), hücresel solunumda glikoz yıkımının ilk basamağıdır. Bu süreç hem prokaryot hem de ökaryot hücrelerin sitoplazmasında gerçekleşmektedir. Daha kesin bir ifadeyle glikolizin hücre içindeki yeri mitokondri zarı değil, doğrudan hücre sıvısı olan sitozol (İng: "cytosol") bölmesidir.[12] Nitekim zarla çevrili hiçbir organeli bulunmayan prokaryotların da glikolizi yürütebilmesi bu sitozolik yerleşimle açıklanmaktadır. Üstelik glikoliz tepkimeleri doğrudan moleküler oksijen kullanmamaktadır. Bu nedenle glikoliz, ortamda oksijen bulunsun ya da bulunmasın oksijensiz yani anaerobik (İng: "anaerobic") bir süreç olarak tanımlanmaktadır.
Yolağın başlangıcında halka yapılı, altı karbonlu tek bir glikoz molekülü yer almakta, on basamaklı enzimatik dönüşümün sonunda ise bu altı karbonlu şeker, pirüvat (İng: "pyruvate") adı verilen üç karbonlu iki keto asit molekülüne ayrılmaktadır. İşleyiş bakımından glikoliz iki ardışık bölümde ele alınmaktadır. İlk yarı enerji yatırımı evresi (İng: "energy investment phase"), ikinci yarı ise enerji kazancı evresi (İng: "energy recovery phase") olarak adlandırılmaktadır. Enerji yatırımı bölümünde hücre, başlangıçtaki glikoz molekülüne fosfat grupları bağlamak (fosforilasyon yapmak) için 2 ATP molekülü harcamaktadır. Bu harcama bir yatırımdır.
Altı karbonlu şeker iki adet üç karbonlu şeker fosfata bölündükten sonra glikolizin enerji kazancı bölümü başlamaktadır. Bu bölümün altıncı basamağında üç karbonlu şeker olan gliseraldehit-3-fosfat (İng: "glyceraldehyde-3-phosphate") yükseltgenmekte, bu sırada şekerden koparılan yüksek enerjili elektronları da elektron taşıyıcısı NAD⁺ toplamakta ve NADH oluşmaktadır. Ardından gelen yedinci ve onuncu basamaklarda ise ara ürünlerdeki fosfat grupları substrat düzeyinde fosforilasyonla ADP'ye aktarılmakta ve glikoz başına toplam dört ATP üretilmektedir. İki NADH ise iki kolun altıncı basamağından gelmektedir. Böylece yatırım geri dönmeye başlamaktadır.
Ayrıca glikoliz evresinin enerji bilançosu bilimsel model üzerinde adım adım izlenebilir.
Çözümlü örnek 1: Glikoliz bir glikozdan net ne kazandırır?
Verilenler: Sitozolde yıkıma giren 1 molekül altı karbonlu glikoz. Enerji yatırımı bölümünde 2 ATP harcanmaktadır. Enerji kazancı bölümünde ise üç karbonlu iki koldan toplam 4 ATP ile 2 NADH üretilmektedir.
İstenen: Glikolizin her glikozdan bıraktığı net kazanç.
1. adım: Glikoz iki adet üç karbonlu birime ayrıldığı için ikinci yarıdaki substrat düzeyinde fosforilasyon basamakları brüt kazancı vermektedir:
2. adım: Net kazancı bulmak için bu brüt üretimden ilk yarıda harcanan ATP çıkarılmaktadır:
3. adım: İki adet gliseraldehit-3-fosfatın yükseltgenmesinden gelen NADH ayrıca eklenmektedir:
Sonuç: Hücre, glikoliz sonunda glikoz başına net 2 ATP, 2 NADH ve iki adet üç karbonlu pirüvat elde etmektedir.[5]
Sitozoldeki NAD⁺ havuzu tükenirse glikolize ne olur? Glikolizin enerji kazancı bölümünün kesintisiz sürebilmesi için oluşan NADH moleküllerinin sürekli olarak yeniden NAD⁺ biçimine yükseltgenmesi gerekmektedir, çünkü ortamda elektronları devralacak NAD⁺ bulunmazsa glikolizin ikinci yarısı yavaşlamakta veya tamamen durmaktadır. Bu zorunluluk bazı özelleşmiş hücreler için yaşamsal önem taşımaktadır. Örneğin olgun memeli alyuvarlarında mitokondri bulunmamaktadır, dolayısıyla bu hücrelerin tek ATP kaynağı glikolizdir.
Pirüvattan Asetil-KoA'ya ve Krebs Döngüsü
Oksijenin bulunduğu ökaryot hücrelerde, glikoliz sonunda sitozolde oluşan iki pirüvat molekülü sonraki tepkimeler için mitokondriye taşınmakta, pirüvat mitokondri matriksine girdiğinde ise çoklu bir enzim kompleksi tarafından bağlantı tepkimesiyle asetil-KoA (İng: "acetyl CoA") molekülüne dönüştürülmektedir. Bu dönüşüm sırasında pirüvattan bir karboksil grubu uzaklaştırılmakta ve bir molekül karbondioksit (CO₂) olarak serbest bırakılmaktadır. Kalan iki karbonlu grup yükseltgenirken koparılan elektronlar NAD⁺ tarafından alınarak bir molekül NADH oluşturulmakta, oluşan iki karbonlu asetil grubu ise koenzim A'ya (İng: "coenzyme A") aktarılarak asetil-KoA sentezlenmektedir. Glikolizde her glikoz için iki pirüvat üretilmektedir. Bu nedenle bağlantı tepkimesi glikoz başına iki kez gerçekleşmekte ve glikozun altı karbonundan ikisi bu aşamada CO₂ olarak ayrılmaktadır.
Oluşan asetil-KoA'nın temel işlevi, pirüvattan türetilen bu iki karbonlu asetil grubunu glikoz katabolizmasının bir sonraki aşamasına teslim etmektir. Bu aşama bilim dünyasında üç farklı adla anılmaktadır. Sitrik asit döngüsü (İng: "citric acid cycle"), TCA döngüsü (İng: "TCA cycle") ve keşfedicisinden ötürü Krebs döngüsü (İng: "Krebs cycle") aynı metabolik yolağın adlarıdır. Krebs döngüsü adı, 1930'larda güvercin uçuş kaslarında bu yolağın basamaklarını ilk kez belirleyen Hans Krebs'e dayanmaktadır. Nitekim Krebs'in 1953 yılındaki Nobel konuşmasında yer alan tarihsel şema, özgün sitrik asit döngüsü modelini Krebs ve Johnson'ın 1937 tarihli çalışmasına bağlamaktadır.[13]
Ökaryot hücrelerde sitrik asit döngüsü mitokondri matriksinde gerçekleşmektedir. Döngüde görev yapan enzimlerin neredeyse tamamı matriks sıvısında çözünür durumdadır. Bu kuralın tek istisnası, mitokondrinin iç zarına gömülü olan süksinat dehidrogenaz (İng: "succinate dehydrogenase") enzimidir. Döngü bir birleşme tepkimesiyle başlamaktadır. Kondenzasyon adı verilen bu birinci basamakta, asetil-KoA'dan gelen iki karbonlu asetil grubu dört karbonlu oksaloasetat (İng: "oxaloacetate") molekülüyle birleşerek altı karbonlu sitrat (İng: "citrate") molekülünü oluşturmaktadır. Döngünün sekiz basamağında bir dizi redoks, su çıkarma (dehidrasyon), su katma (hidrasyon) ve karboksil grubu uzaklaştırma (dekarboksilasyon) tepkimesi yürütülmektedir. Bu yolağın doğrusal bir hat değil de kapalı bir döngü olmasının nedeni, son basamakta malatın yükseltgenmesiyle bir NADH daha üretilirken ilk basamakta kullanılan dört karbonlu oksaloasetatın yeniden oluşturulmasıdır.
Sitrik asit döngüsünün her bir turunda iki molekül karbondioksit açığa çıkmaktadır. Ancak her turda serbest kalan bu iki CO₂ molekülü, aynı turun başında döngüye katılan asetil grubunun karbonlarını içermemektedir. Üstelik yeni eklenen iki asetil karbonu, döngünün daha sonraki turlarında CO₂ olarak serbest bırakılmaktadır. Yani karbonlar döngüde birkaç tur dolaşabilmektedir. Enerji taşıyıcıları açısından bakıldığında ise her bir tur üç NADH molekülü ve bir FADH₂ molekülü üretmekte, ayrıca döngünün beşinci basamağında substrat düzeyinde fosforilasyon yoluyla hücre tipine bağlı olarak bir molekül ATP veya guanozin trifosfat (İng: "guanosine triphosphate") yani GTP sentezlenmektedir. GTP molekülü enerji bakımından ATP'ye eşdeğerdir, fakat hücre içindeki kullanım alanı ATP'ye kıyasla daha sınırlıdır.
Bir glikoz molekülünün sitrik asit döngüsündeki toplam çıktısı da aynı yolla hesaplanabilir.
Çözümlü örnek 2: Bir glikoz sitrik asit döngüsünde toplam ne üretir?
Verilenler: Bir glikozdan bağlantı tepkimesiyle elde edilen 2 asetil grubu. Döngünün tek bir turu 3 NADH, 1 FADH₂, 1 ATP (veya GTP) ve 2 CO₂ üretmektedir.
İstenen: Glikoz başına toplam NADH, FADH₂, ATP/GTP ve CO₂ miktarı.
1. adım: Her glikoz molekülü iki pirüvat ve dolayısıyla iki asetil-KoA verdiği için önce döngünün glikoz başına tur sayısı belirlenmektedir:
2. adım: İndirgenmiş elektron taşıyıcıları tur sayısıyla çarpılmaktadır:
3. adım: Substrat düzeyinde fosforilasyon ürünü ile karbon çıkışı da aynı biçimde hesaplanmaktadır:
Sonuç: İki tur sonunda toplam 6 NADH, 2 FADH₂, 2 ATP/GTP ve 4 CO₂ elde edilmektedir. Bağlantı tepkimesindeki iki CO₂ ile birleştirildiğinde başlangıçtaki glikozun altı karbonunun tamamı CO₂ biçiminde salınmış olmaktadır.[6]
Krebs döngüsü hakkında sıkça düşülen bir yanılgı, bu döngünün bol miktarda ATP ürettiği veya doğrudan oksijen harcadığı düşüncesidir. Oysa sitrik asit döngüsü doğrudan çok az ATP üretmekte ve tepkimelerinde doğrudan oksijen tüketmemektedir. Döngünün oksijenle bağı dolaylıdır. Bu bağ, döngüde üretilen NADH ve FADH₂ üzerinden kurulmaktadır. Bu moleküllerin elektronlarını oksijen kullanan bir sonraki yolağa aktarması zorunludur, çünkü bu elektron aktarımı gerçekleşmezse yükseltgenmiş taşıyıcılar yenilenememekte ve sitrik asit döngüsünün yükseltgenme basamakları da durmaktadır.
Elektron Taşıma Zinciri ve Kemiozmoz
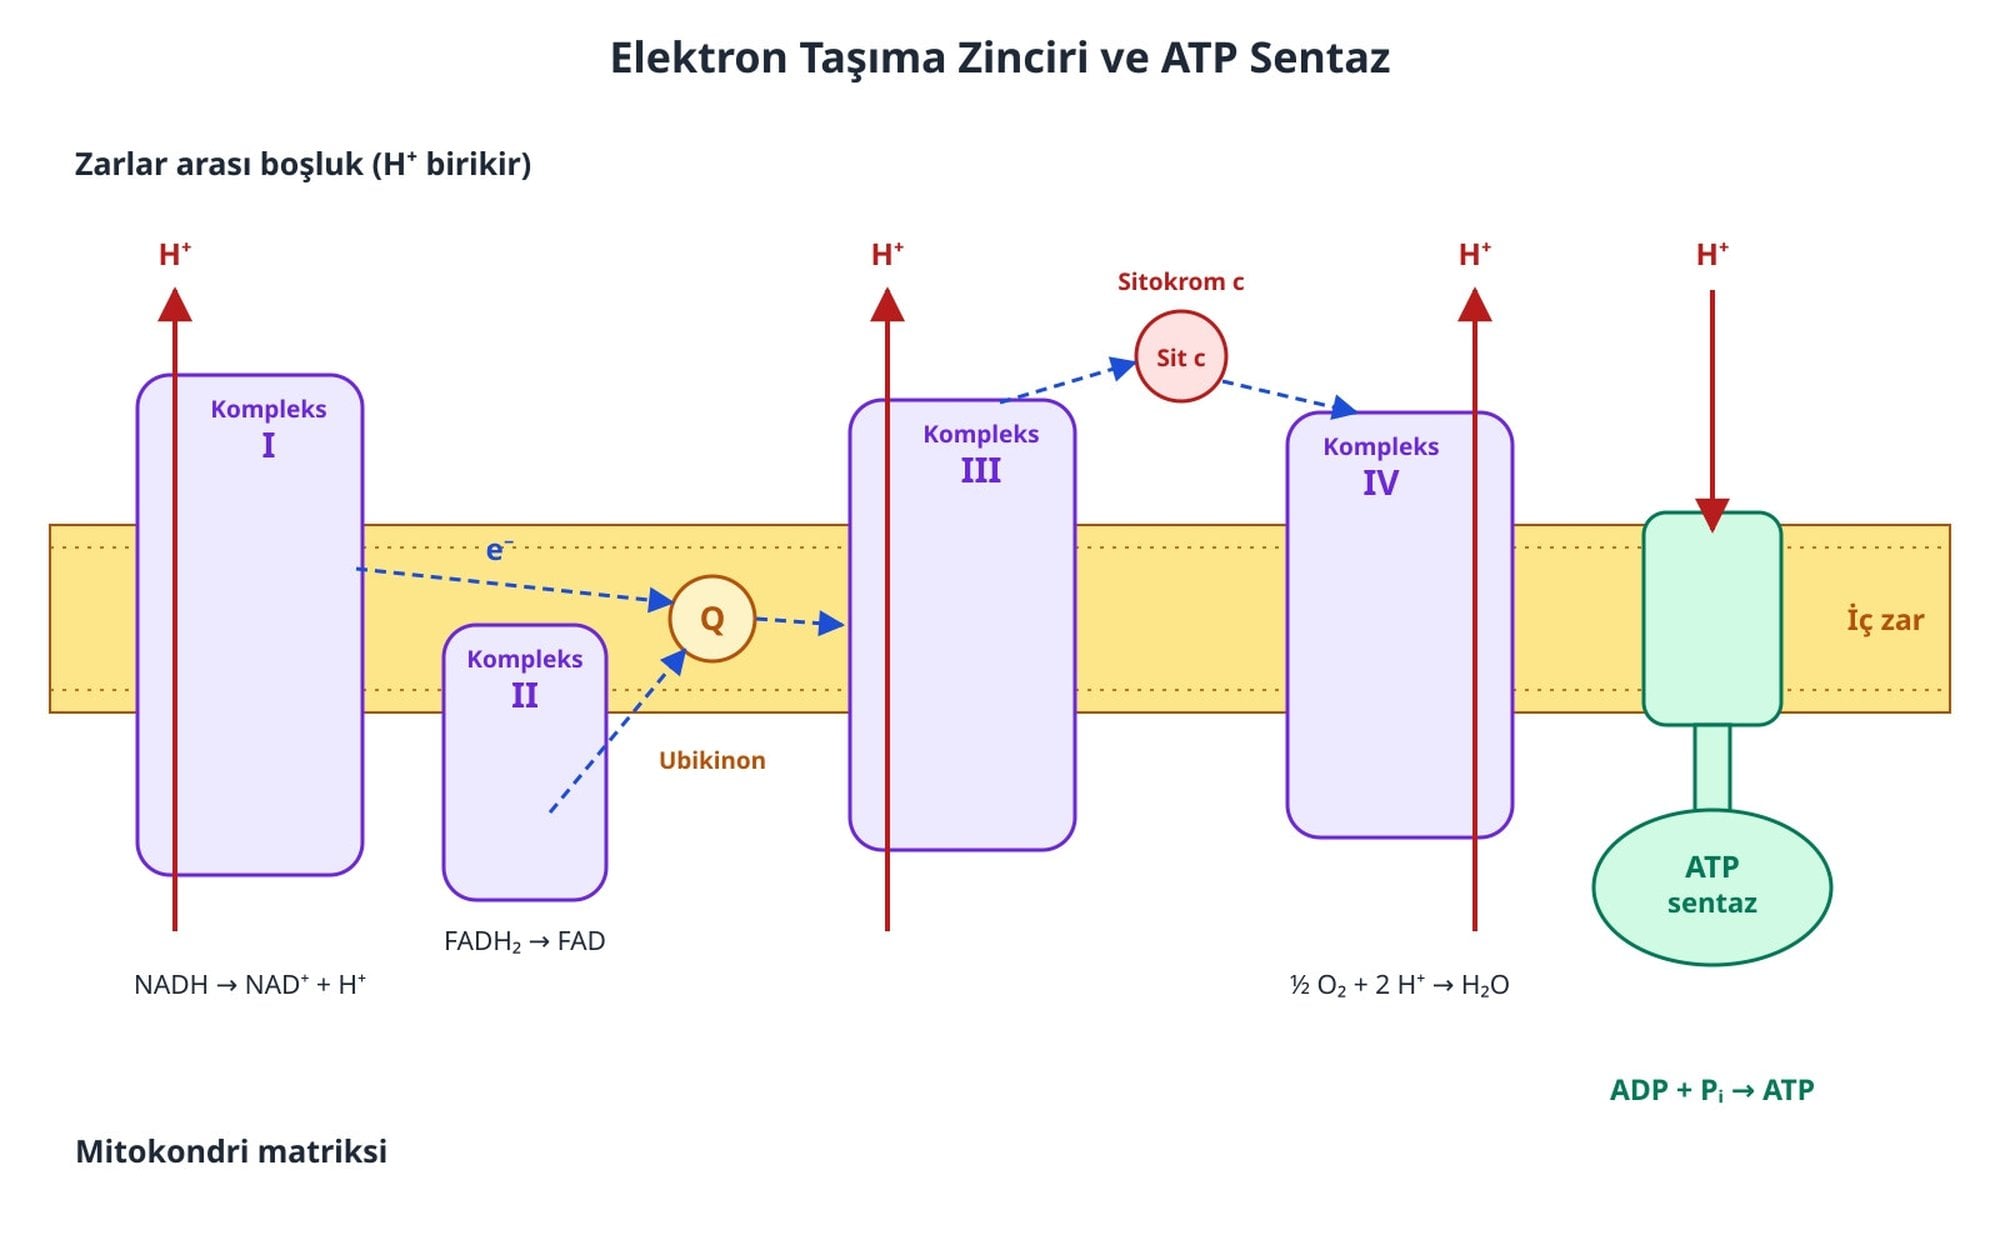
Oksijenli glikoz yıkımı sırasında üretilen ATP'nin büyük bölümü doğrudan glikolizden ya da sitrik asit döngüsünden gelmemektedir, çünkü asıl üretim, oksijenli solunumun son bileşeni olan elektron taşıma zinciri (İng: "electron transport chain") ile ona eşlik eden kemiozmoz sürecinde gerçekleşmektedir. Üstelik elektron taşıma zinciri, glikoz metabolizmasının tamamında moleküler oksijeni doğrudan kullanan tek bölümdür. Ökaryot hücrelerde bu zincirin çok sayıda kopyası mitokondrinin iç zarında yer almaktadır.
Elektron taşıma zinciri modeli, I'den IV'e kadar Romen rakamlarıyla numaralandırılan dört ana protein kompleksi ile bunlara eşlik eden hareketli yardımcı elektron taşıyıcılarından oluşmaktadır. Önceki evrelerde toplanan elektronlar bu zincire iki farklı kapıdan girmektedir. NADH molekülleri taşıdıkları iki elektronu ilk komplekse (kompleks I) teslim etmektedir. Buna karşılık FADH₂ kaynaklı elektronlar kompleks I'den geçmemekte ve doğrudan kompleks II üzerinden zincire katılmaktadır. İki giriş yolu daha sonra birleşmektedir. Zarın hidrofobik iç bölgesinde serbestçe hareket edebilen ve yağda çözünen bir taşıyıcı olan ubikinon (İng: "ubiquinone") yani Q molekülü, hem birinci hem de ikinci kompleksten aldığı elektronları iletmektedir. Kompleks III ise elektronları sitokrom c (İng: "cytochrome c") adlı taşıyıcıya devrederek dördüncü komplekse ulaştırmaktadır. FADH₂ elektronlarının ilk kompleksi atlaması ve buradaki proton pompasını çalıştırmaması, FADH₂ elektronlarından NADH elektronlarına kıyasla daha az ATP elde edilmesinin temel nedenidir.
Elektronlar bu zincir boyunca bir bileşikten diğerine birbirini izleyen redoks tepkimeleriyle hızla aktarılırken serbest kalan enerji, protonların (H⁺) mitokondri matriksinden zarlar arası boşluğa pompalanmasını sağlamaktadır. İç zarın iki yakasında oluşan bu eşit olmayan H⁺ dağılımı, hem bir derişim farkı hem de bir elektriksel yük farkı yaratmakta ve bu iki farkın birleşimiyle iç zar boyunca bir elektrokimyasal gradyan (İng: "electrochemical gradient") kurulmaktadır. Zincirin en son noktasında ise elektronlar moleküler oksijene aktarılarak oksijeni indirgemekte, fazladan elektron alan oksijen de çevredeki ortamdan hidrojen iyonlarını (protonları) çekmekte ve böylece su (H₂O) oluşmaktadır. Dolayısıyla oksijen, elektron taşıma zincirindeki son elektron alıcısıdır.
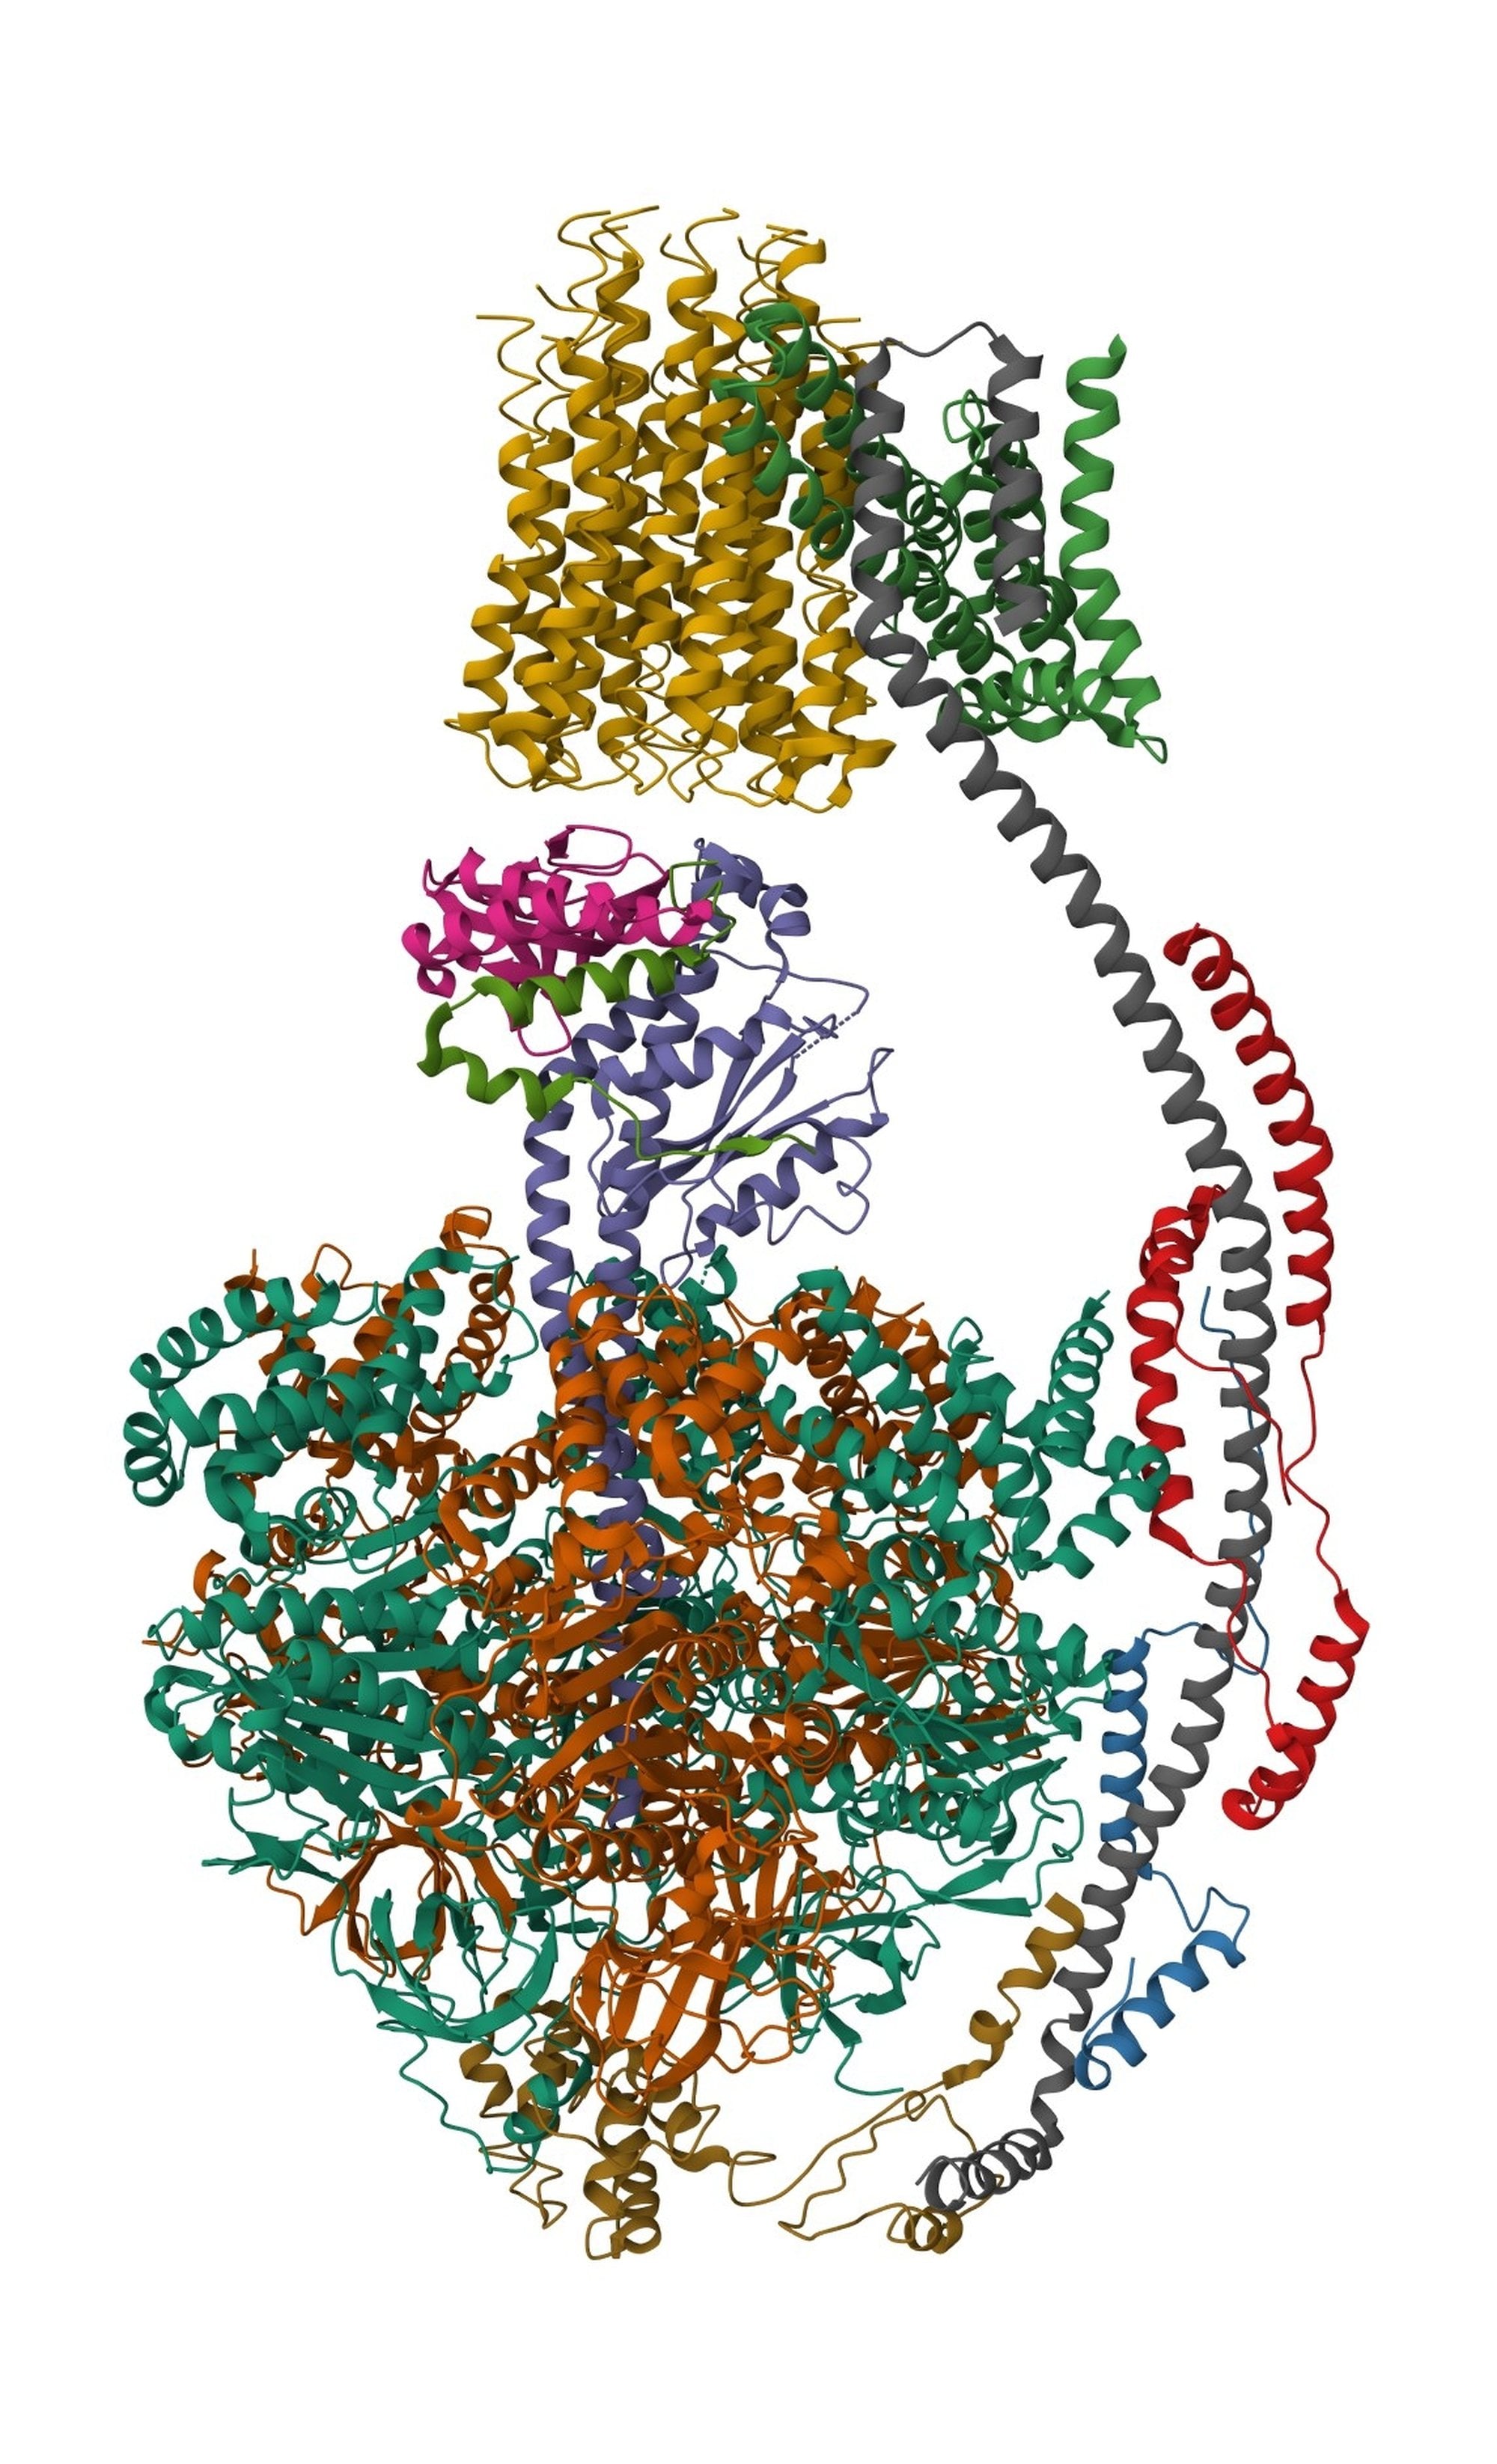
Zarlar arası boşlukta biriken hidrojen iyonları, ATP sentaz (İng: "ATP synthase") adı verilen büyük protein kompleksinden geçerek matrikse geri dönmektedir. Bu moleküler makine, proton (H⁺) gradyanını kullanarak ADP ile inorganik fosfattan (Pᵢ) ATP üretmektedir. İçinden hızla difüze olan hidrojen iyonlarının kuvveti, ATP sentazın bazı parçalarının tıpkı bir türbin gibi dönmesini sağlamakta ve bu dönme hareketi, ADP'ye bir fosfat grubunun eklenmesini kolaylaştırarak ATP sentezini gerçekleştirmektedir. Hidrojen iyonlarının zar boyunca bu hareketine kemiozmoz (İng: "chemiosmosis"), mitokondride kemiozmoz aracılığıyla ATP üretilmesi sürecine ise oksidatif fosforilasyon adı verilmektedir.
Peter Mitchell, 1961 yılında Nature dergisinde yayımlanan özgün makalesinde, fosforilasyonun elektron ve hidrojen aktarımına bağlanmasını açıklayan kemiozmotik tipte bir mekanizma önermiştir.[14] Mitchell bu çalışmasında mekanizmanın ilgili enzim sistemlerinin zar üzerindeki moleküller üstü düzenlenmesine mutlak biçimde bağlı olduğunu vurgulamıştır. ATP sentaz enziminin işleyişine dair araştırmaları nedeniyle Paul D. Boyer ve John E. Walker ise 1997 Nobel Kimya Ödülü'nün yarısına layık görülmüştür.[15]
Bir Glikozdan Kaç ATP Çıkar?
Hücresel solunumun bütün aşamaları tamamlandığında, başlangıçtaki tek bir glikoz molekülünden toplam kaç ATP elde edildiği sorusu gündeme gelmektedir. Bu sorunun tek bir yanıtı yoktur. Yine de bir hesap kurmak için önce glikoliz, bağlantı tepkimesi ve sitrik asit döngüsünün glikoz başına ürettiği doğrudan ATP (veya GTP) molekülleri ile indirgenmiş elektron taşıyıcılarının (NADH ve FADH₂) bir araya getirilmesi gerekmektedir.
Bir molekül glikozun oksijenli yıkımında, oksidatif fosforilasyondan önce oluşan ham ürünler evrelere göre aşağıda sıralanmıştır. - Glikoliz, sitozolde substrat düzeyinde fosforilasyonla net 2 ATP ve yükseltgenme basamağından 2 sitozolik NADH vermektedir. - Bağlantı tepkimesi, iki pirüvatın mitokondri matriksinde asetil-KoA'ya dönüşümünden 2 mitokondriyal NADH ve 2 CO₂ sağlamaktadır. - Sitrik asit döngüsünün iki turu, substrat düzeyinde fosforilasyonla 2 ATP (veya GTP), 6 mitokondriyal NADH, 2 FADH₂ ve 4 CO₂ üretmektedir. - Üç aşamanın toplamında glikoz başına 4 doğrudan ATP eşdeğeri, 8 mitokondriyal NADH, 2 sitozolik NADH ve 2 FADH₂ birikmektedir.[5], [6]
Adım Adım Sayım
Yukarıdaki envanterde yer alan elektron taşıyıcılarının kaç ATP'ye karşılık geldiğini hesaplamak için sitozoldeki iki NADH molekülünün elektronlarının mitokondriye nasıl taşındığının modele eklenmesi gerekmektedir. Stanford Üniversitesi Biyokimya Bölümü tarafından paylaşılan hesaplamada, sitozolik NADH elektronlarının iç zardan gliserol fosfat mekiği (İng: "glycerol phosphate shuttle") aracılığıyla aktarıldığı varsayılmaktadır. Bu mekik sisteminde sitozolden gelen iki NADH'nin elektronları mitokondri iç zarındaki ubikinona devredilerek iki molekül ubikinol (QH₂) oluşturmakta, dolayısıyla sitrik asit döngüsündeki iki FADH₂'den gelen iki QH₂ ile birlikte toplam dört mol QH₂ ve sekiz mol mitokondriyal NADH hesaba girmektedir.
Bu model çerçevesinde bir mol glikozdan elde edilen toplam ATP miktarı adım adım çıkarılabilir.
Çözümlü örnek 3: Bir mol glikozdan toplam kaç mol ATP elde edilir?
Verilenler: 1 mol glikoz başına 4 mol doğrudan ATP, 8 mol mitokondriyal NADH ve 4 mol QH₂. Katsayı olarak NADH başına 2,5 mol ATP, QH₂ başına ise 1,5 mol ATP alınmaktadır.
İstenen: Gliserol fosfat mekiği modelinde bir mol glikozdan elde edilen toplam ATP.
1. adım: Sekiz mol mitokondriyal NADH elektron taşıma zincirine birinci kompleksten girdiği için katkısı NADH katsayısıyla hesaplanmaktadır:
2. adım: Dört mol QH₂ birinci kompleksi atladığı için katkısı daha düşük katsayıyla bulunmaktadır.[7] Hesap şöyledir:
3. adım: Doğrudan üretilen 4 mol ATP ile oksidatif fosforilasyondan gelen 20 ve 6 mol ATP toplanmaktadır:
Sonuç: Bu modelde verim 30 mol ATP/mol glikozdur.[8]
Elde edilen bu 30 mol ATP/mol glikoz sonucu, modelin dayandığı gliserol fosfat mekiği ve katsayı varsayımlarıyla sınırlıdır. Bu durum, biyokimyasal modellerde sayısal çıktıların seçilen başlangıç varsayımlarına bağlı olduğunu göstermektedir.
Neden Tek Bir Doğru Sayı Yok?
Okurlar farklı kaynaklarda bir glikoz için 30 ya da 32 gibi ATP sayılarına, daha eski metinlerde ise bunlardan yüksek değerlere rastlamaktadır. Jeffrey S. Amthor'un 2023 yılında Annals of Botany dergisinde yayımladığı inceleme, bir heksoz şekeri başına potansiyel ATP veriminin evrensel bir biyolojik sabit olma olasılığının düşük olduğunu belirtmektedir. Üstelik yüksek ATP verimi bildiren eski biyokimya tahminleri 1980 yılından önce bile aşağı doğru gözden geçirilmekteydi. Derlemede aktarılan eski hesaplar arasında 30 (veya 32) ATP/glikoz biçiminde bir potansiyel verim tahmini de yer almaktadır.[16]
Canlı hücrelerde bir glikozdan elde edilen gerçek ATP sayısını değiştiren üç temel biyolojik etken bulunmaktadır. İlk olarak, elektron taşıma zinciri komplekslerinin zar boyunca pompalayabildiği hidrojen iyonu (proton) sayısı türler arasında farklılık göstermektedir. İkinci olarak, glikolizde üretilen NADH elektronlarının mitokondri zarlarından içeriye hangi mekik sistemiyle aktarıldığı da ATP verimini etkilemektedir. Örneğin gliserol fosfat mekiğinde bu elektronlar ubikinona devredilmekte ve kompleks I'i atlamaktadır.
Üçüncü önemli etken ise hücresel solunum yolaklarındaki ara bileşiklerin sadece ATP üretimi için kullanılmamasıdır. Glikoliz ve sitrik asit döngüsü boyunca oluşan ara ürünler, hücrenin ihtiyaçlarına göre başka biyosentez amaçları için yolaktan çekilebilmekte, dolayısıyla bu ayrılma başlangıçtaki glikoz molekülünden elde edilen net ATP miktarını etkilemektedir.
Enerjinin Geri Kalanı Nereye Gider?
Otuz molekül civarındaki bu ATP kazancı, bir glikoz molekülünün kimyasal bağlarında saklı duran toplam enerjinin tamamına karşılık gelmemektedir. Glikoz katabolizmasının bu yolakları, glikozda bulunan toplam enerjinin yaklaşık %34'ünü ATP'de yakalamaktadır.[7] Bu oran üçte birden biraz fazladır.
Glikozdaki enerjinin geriye kalan yaklaşık üçte ikilik bölümüne ne olur? ATP üretiminde yakalanamayan bu kalan enerji bölümü tepkimeler sırasında ısı olarak açığa çıkmaktadır. Isı, bu dönüşümün yan ürünüdür. Basamaklı yıkım modeline göre enerjinin yaklaşık üçte biri hücresel iş için kurtarılmakta, kalanı ısı biçiminde ortama bırakılmaktadır.
Oksijen Yokken: Fermantasyon ve Oksijensiz Solunum
Elektron taşıma zincirinin sonunda elektronları teslim alacak moleküler oksijen bulunmadığında enerji dönüşümü iki farklı yolla sürebilmektedir.[9] Bunlar oksijensiz hücresel solunum (İng: "anaerobic cellular respiration") ve fermantasyon (İng: "fermentation") süreçleridir ve her iki süreç de organizmaların oksijen yokluğunda kendi kullanımları için enerji dönüştürmesine olanak tanımaktadır. Ancak bu iki kavram birbirinin eş anlamlısı değildir ve aralarında temel bir mekanizma farkı bulunmaktadır.
Oksijensiz hücresel solunumda hücre yine zar üzerinde bir elektron taşıma zinciri çalıştırmaktadır. Ancak oksijenli solunumdan ayrıldığı nokta, zincirin sonundaki elektron alıcısının oksijen (O₂) yerine başka bir inorganik molekül olmasıdır. Bakteriler (Bacteria) ve arkeler (Archaea) üst alemlerinde yer alan bazı prokaryot türleri enerji elde etmek için bu oksijensiz solunum yolunu kullanmaktadır.
Fermantasyon ise elektron taşıma zinciri kullanmaksızın, NADH molekülünden yeniden NAD⁺ üretmek için organik bir molekülün elektron alıcısı olarak kullanıldığı süreçlerin ortak adıdır. Glikolizin substrat düzeyinde fosforilasyonla ATP üretmeye devam edebilmesi için sitozolde mutlaka yükseltgenmiş NAD⁺ bulunması gerekmektedir. Fermantasyon tepkimeleri elektronları pirüvat veya pirüvat türevi organik bir moleküle aktararak NADH'yi NAD⁺ biçimine yükseltgemekte, böylece glikolizin durmasını önlemektedir. Örneğin hayvan hücreleri ve yoğurtta bulunan bazı bakteriler tarafından kullanılan yöntem laktik asit fermantasyonu (İng: "lactic acid fermentation") olarak adlandırılmaktadır. Bu süreçte pirüvat laktata indirgenirken NADH yeniden NAD⁺'ye yükseltgenmektedir. Mayaların gerçekleştirdiği alkollü fermantasyonda (İng: "alcohol fermentation") ise pirüvattan önce CO₂ ayrılmakta, oluşan asetaldehit de NADH'nin elektronlarıyla etanole indirgenmektedir.
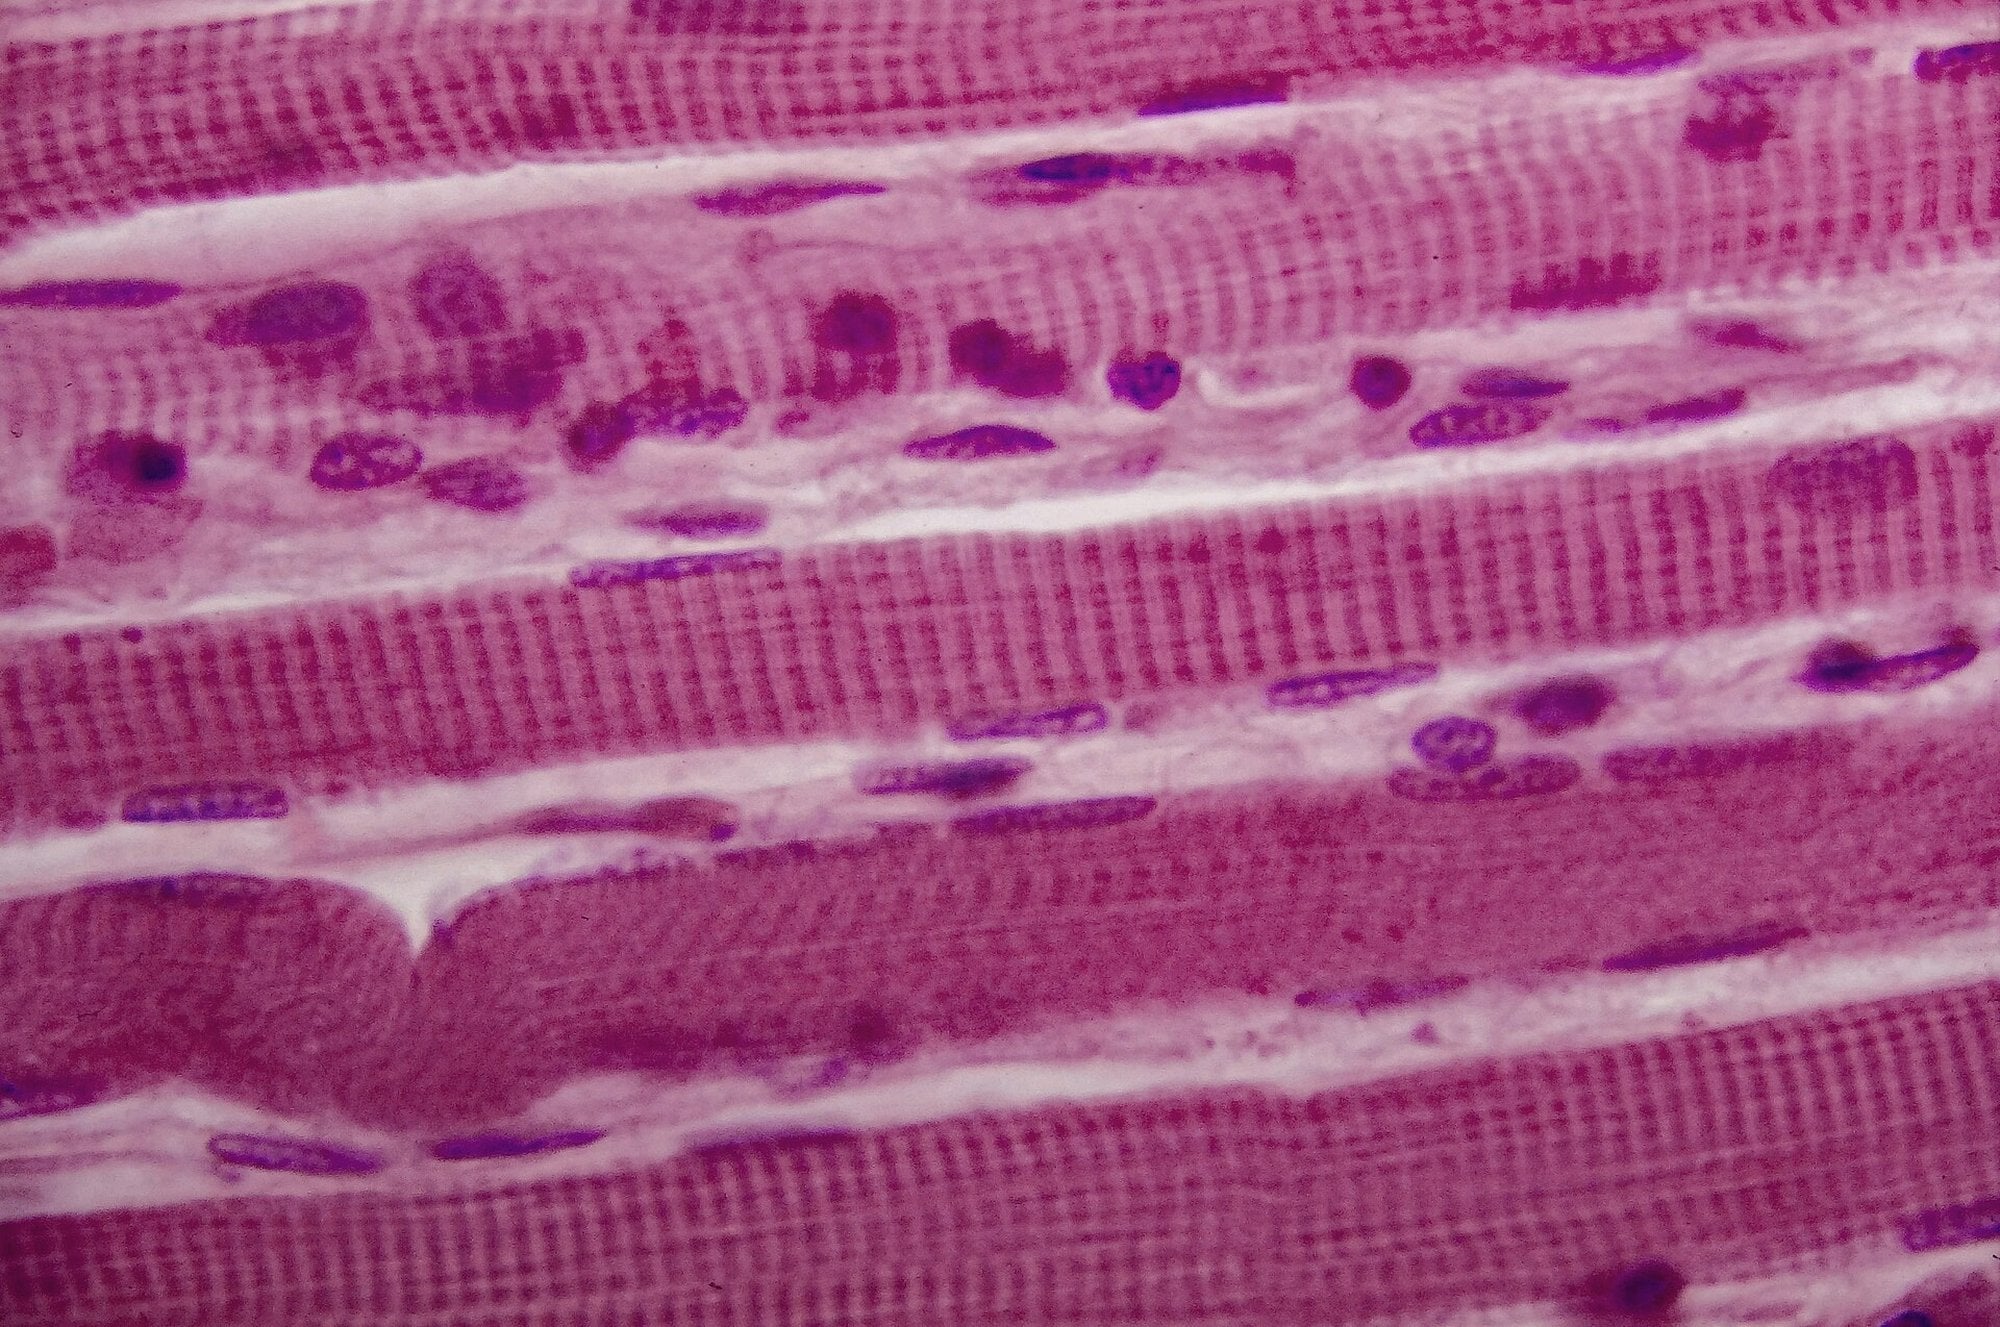
Laktik asit fermantasyonu doğrudan insan vücudunu ve egzersiz fizyolojisini ilgilendirmektedir, bu yüzden halk arasında yaygın bir yanılgıya konu olmaktadır. Yoğun kas çalışması sırasında kasta laktik asit birikmesinin kas sertliğine, yorgunluğa ve egzersiz sonrası kas ağrısına yol açtığı düşüncesi uzun yıllar boyunca doğru kabul edilmiştir. Ancak daha yeni bilimsel araştırmalar bu hipotezi sorgulamakta ve kas ağrısı ile sertliğinin doğrudan laktik asit birikiminden kaynaklandığı görüşüne itiraz etmektedir. Bu açıdan kas hücresinde pirüvatın laktata indirgenmesi, oksijen kısıtlılığında NAD⁺ yenileyerek glikolizin ATP üretimini sürdürmesini sağlayan fizyolojik bir uyum mekanizmasıdır.[9]
Diğer Besinler, Düzenleme ve Zinciri Bozan Moleküller
Hücresel solunum modelini sadece serbest glikozun girip karbondioksit ve suyun çıktığı yalıtılmış bir boru hattı gibi düşünmek, hücrenin gerçek metabolik işleyişini eksik bırakmaktadır. Çünkü metabolik yolaklar birbirinden tamamen yalıtılmış kapalı sistemler değildir. Hat iki yöne de açıktır. Başka metabolik yolaklardan gelen maddeler bu hatta sürekli katılmakta ve bu hattaki ara ürünler de başka sentez yolaklarına doğru ayrılmaktadır.
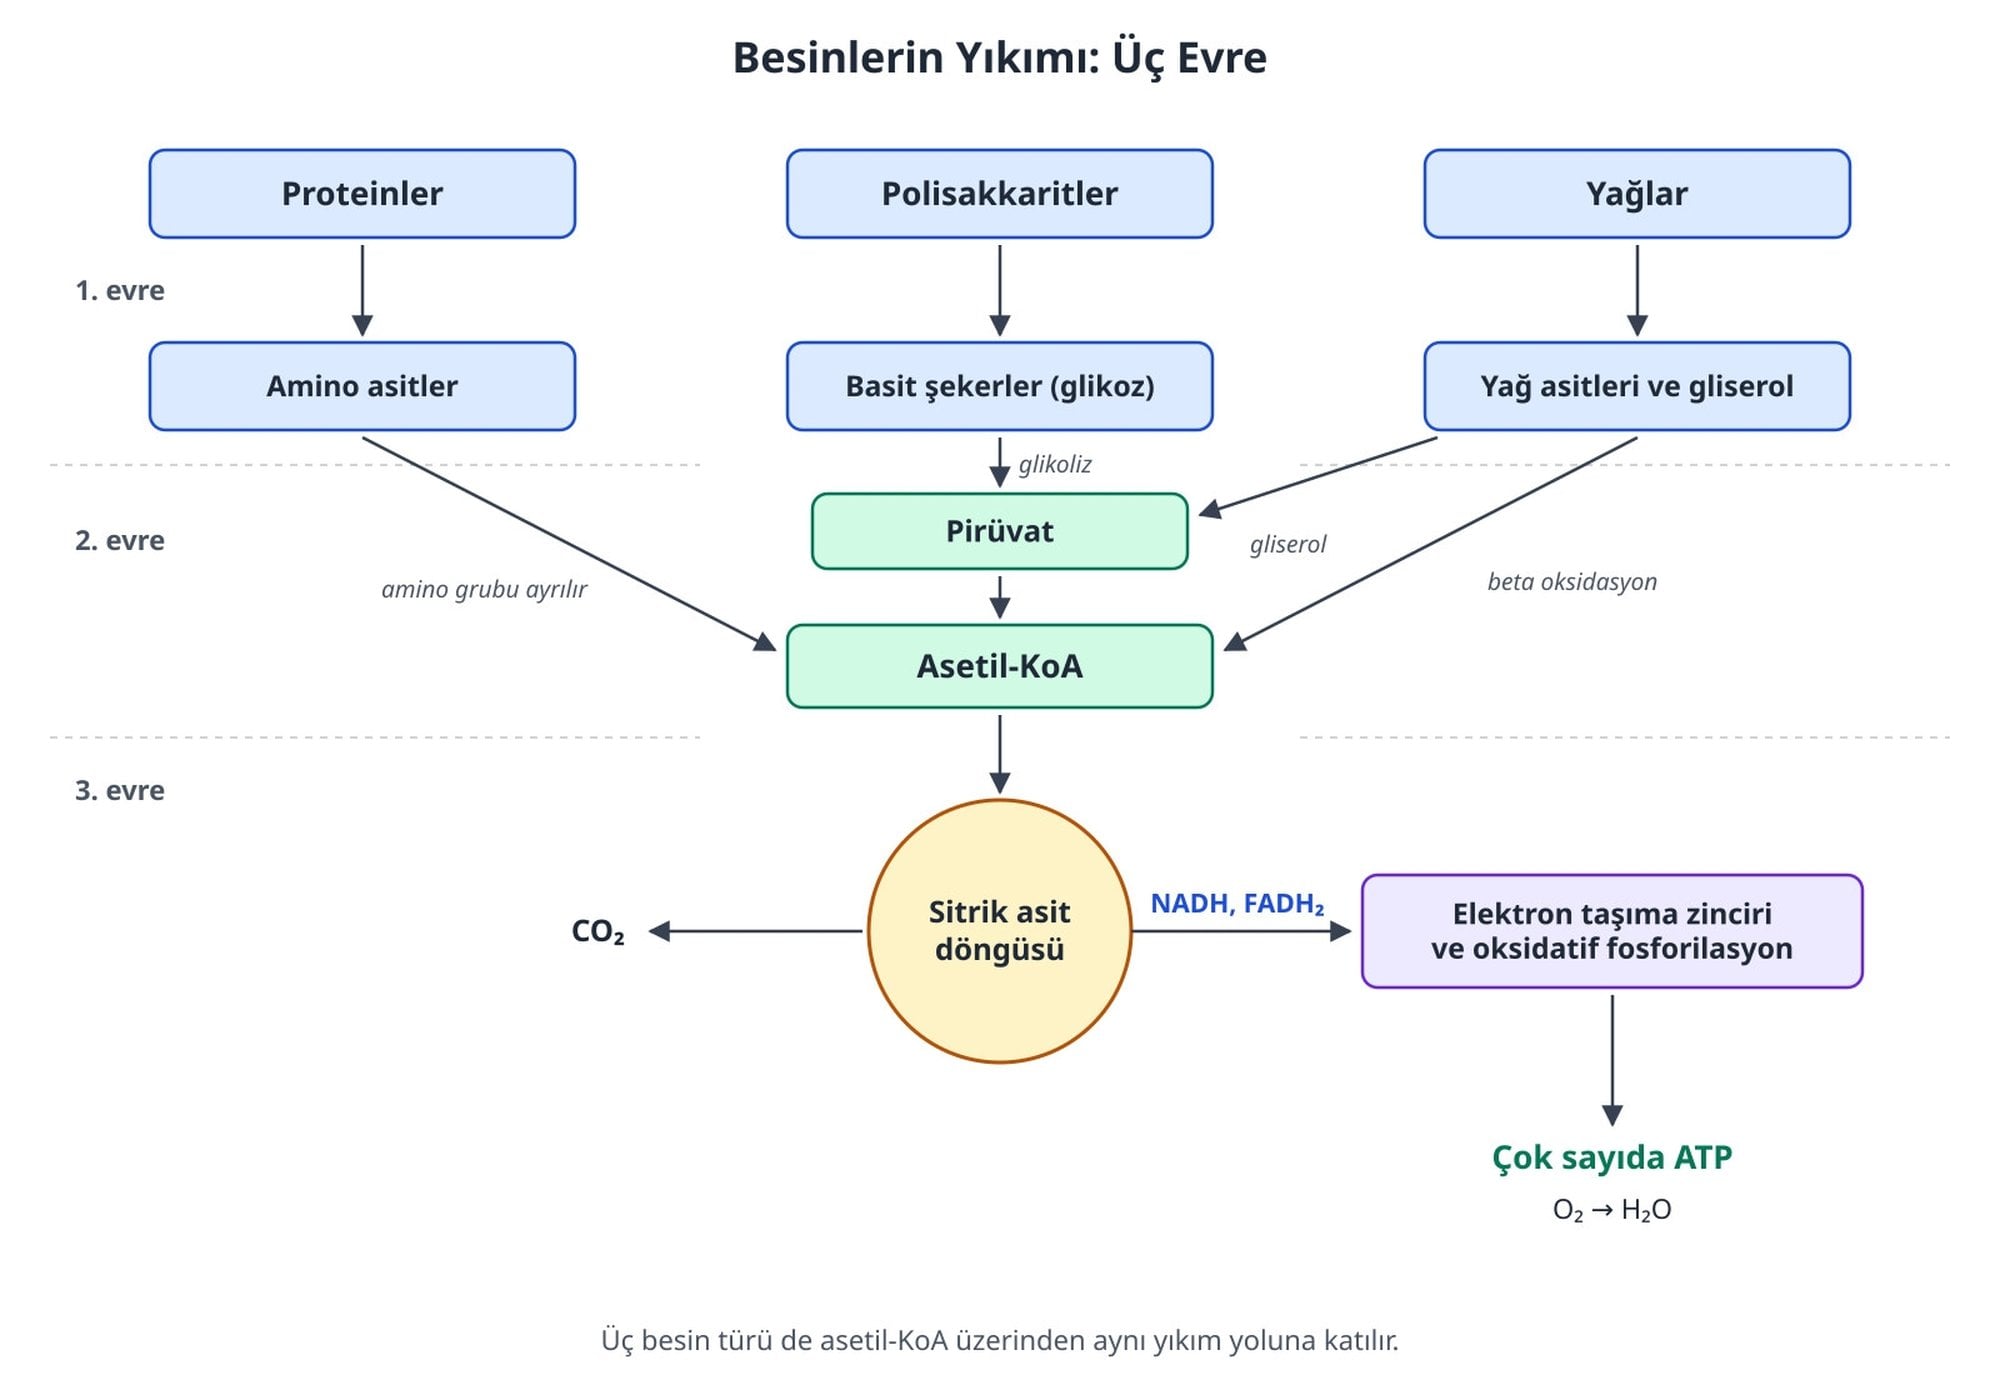
Hücreler enerji elde etmek için sadece serbest glikoz moleküllerini kullanmamaktadır, çünkü besinlerle alınan ya da vücutta depolanan karbonhidratların, proteinlerin ve lipitlerin (yağların) katabolik yıkım yolaklarının tamamı eninde sonunda glikoliz ve sitrik asit döngüsü yolaklarına bağlanmaktadır. Bu esnek ağ yapısı, hücrenin farklı yakıt türlerini aynı ortak enerji para birimine dönüştürmesine ve bu sırada üretimin hızını anlık gereksinimlere göre ayarlamasına olanak vermektedir.[11]
Glikozdan Başka Yakıtlar
Glikojen gibi depo polisakkaritlerin solunum yolağına katılımı glikoliz basamakları üzerinden gerçekleşmektedir. Örneğin hem kas hem de karaciğer hücrelerinde glikojen yıkımından oluşan glikoz-6-fosfat (İng: "glucose-6-phosphate") molekülü doğrudan glikoliz yolağına girmektedir.[10]
Öte yandan proteinlerin yapı taşı olan amino asitlerin bu enerji yolaklarına katılması, öncelikle kimyasal bir hazırlık adımı gerektirmektedir. Her amino asidin glikoliz veya sitrik asit döngüsüne girmeden önce amino grubunu kaybetmesi gerekmektedir.
Lipitlerin yıkımı ise mitokondri matriksinde başlamaktadır. Yağ asitleri, burada gerçekleşen beta oksidasyon (İng: "beta-oxidation") adlı süreçle parçalanmakta ve beta oksidasyon sonucunda oluşan iki karbonlu asetil grupları koenzim A tarafından toplanarak asetil-KoA'ya dönüştürülmekte, böylece doğrudan sitrik asit döngüsüne katılmaktadır.[10]
Hücre ATP Üretimini Nasıl Ayarlar?
Bir hücre her zaman üretebileceği en yüksek ATP miktarına ihtiyaç duymamaktadır. Bu nedenle hücresel solunum tepkimeleri, hücrenin anlık enerji gereksinimiyle uyumlu biçimde sürekli düzenlenmektedir. Bu düzenlemede ATP, ADP, AMP, NAD⁺ ve NADH gibi nükleotitler allosterik düzenleyiciler (İng: "allosteric effectors") olarak görev yapmakta ve kilit enzimlere bağlanarak ortam koşullarına göre enzim etkinliğini artırmakta veya azaltmaktadır.
Ayrıca glikoliz yolağında kontrol edilen başlıca enzim fosfofruktokinaz (İng: "phosphofructokinase") enzimidir. Hücrede yüksek düzeyde ATP veya sitrik asit döngüsünden gelen sitrat biriktiğinde ya da pH düşüp ortam daha asidik hale geldiğinde fosfofruktokinazın etkinliği azalmaktadır. Benzer şekilde sitrik asit döngüsünün düzenlenen yükseltgenme tepkimeleri de hücrede yeterli ATP ve NADH bulunduğunda yavaşlamaktadır. Öte yandan daha fazla ATP gereksinimini yansıtan ADP düzeylerindeki artış, bu döngü tepkimelerinin hızını artırmaktadır.[11]
Aynı geri bildirim mantığı elektron taşıma zincirinin hızını da doğrudan denetlemektedir. Örneğin hücrede ATP kullanımı azaldığında ADP derişimi düşmekte ve hücre içinde ATP birikmeye başlamaktadır. ADP ile ATP arasındaki bu bağıl derişim değişimi elektron taşıma zincirini yavaşlatmaktadır. Böylece glikolizden son elektron alıcısına kadar bütün sistem, arz ve talep dengesine göre kendi hızını ayarlamaktadır.
Zincir Kırıldığında: Siyanür ve DNP
Elektron taşıma zinciri ile ATP sentaz arasındaki kemiozmotik eşleşmenin nasıl çalıştığı, bu zinciri iki farklı noktadan kıran kimyasal maddelerin etkileri incelendiğinde çok daha net anlaşılmaktadır. Bu maddelerden ilki dinitrofenol (İng: "dinitrophenol") yani DNP'dir. DNP, mitokondrinin iç zarını protonlara karşı geçirgen hale getiren ("sızdıran") bir eşleşme bozucu (İng: "uncoupler") moleküldür. İç zar proton sızdırdığında, elektron taşıma zinciri tarafından zarlar arası boşluğa pompalanan protonlar ATP sentazdan geçmek yerine doğrudan zardan matrikse geri kaçmaktadır. Bu durumda elektron aktarımı ve oksijen tüketimi sürse bile elektrokimyasal gradyan korunamamakta, dolayısıyla oksidatif fosforilasyonla ATP üretimi çökertilmektedir.
İkinci kırılma biçimi ise proton gradyanını sızdırmak yerine elektron akışını tamamen durdurmaktadır. Siyanür (İng: "cyanide"), elektron taşıma zincirinin bileşenlerinden biri olan sitokrom c oksidaz (İng: "cytochrome c oxidase") enzimini inhibe etmektedir. Bu kez akış zincirin sonunda kesilmektedir. Zincirin son halkası olan bu enzim engellendiğinde elektronlar oksijene aktarılamamakta, proton pompalanması durmakta ve hücre oksidatif fosforilasyonla ATP üretemez hale gelmektedir. Kısacası DNP ve siyanür örnekleri, sağlam bir iç zarın ve kesintisiz elektron akışının ATP üretimi için birbirinden ayrılmaz iki koşul olduğunu göstermektedir.
Sonuç
Hücresel solunum, glikozdaki kimyasal enerjinin hücrenin kullanabileceği ATP'ye dönüşmesini sağlayan basamaklı bir süreçtir. Kurulan bilimsel model, glikoliz, pirüvatın yükseltgenmesi, sitrik asit döngüsü ve oksidatif fosforilasyon boyunca karbon atomlarının CO₂ olarak ayrılışını ve elektronların NAD⁺ ile FAD üzerinden oksijene akışını açıklamaktadır. Buna karşılık aynı model, gliserol fosfat mekiği varsayımıyla hesaplanan 30 mol ATP/mol glikoz sonucunun belirtilen mekik ve katsayı varsayımlarıyla sınırlı olduğunu da göstermektedir.[8]
Bu mekanizma hücre ölçeğinin ötesine geçerek biyosferdeki büyük enerji döngüsünü de tamamlamaktadır. Fotosentez yapan üreticiler güneşten gelen ışık enerjisini glikozun kimyasal bağlarında depolarken, hücresel solunum bu glikozu oksijenle yeniden karbondioksit ve suya parçalamaktadır. Dolayısıyla bir meşe yaprağının yakaladığı güneş ışığı ile aynı ağacın dalında koşan sincabın kas proteinlerini hareket ettiren ATP, aynı evrensel enerji akışının iki ucunda yer almaktadır.
Bu makale üzerine konuşmaya devam et
Topluluk sohbetine katıl, yorum bırak veya ayrıntılı bir soru sor.
- Muhteşem!0
- Tebrikler!0
- Bilim Budur!0
- Mmm... Çok sapyoseksüel!0
- Güldürdü0
- İnanılmaz0
- Umut Verici!0
- Merak Uyandırıcı!0
- Üzücü!0
- Grrr... *@$#0
- İğrenç!0
- Korkutucu!0
- ^abClark, M. A., Douglas, M. ve Choi, J.. 7. Introduction. Biology 2E. Openstax, Rice University. (1 Ocak 2018). Alındığı Tarih: 3 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^abClark, M. A., Douglas, M. ve Choi, J.. 6.1 Energy And Metabolism. Biology 2E. Openstax, Rice University. (1 Ocak 2018). Alındığı Tarih: 3 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^abClark, M. A., Douglas, M. ve Choi, J.. 6.4 Atp: Adenosine Triphosphate. Biology 2E. Openstax, Rice University. (1 Ocak 2018). Alındığı Tarih: 3 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^abClark, M. A., Douglas, M. ve Choi, J.. 7.1 Energy In Living Systems. Biology 2E. Openstax, Rice University. (1 Ocak 2018). Alındığı Tarih: 3 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^abClark, M. A., Douglas, M. ve Choi, J.. 7.2 Glycolysis. Biology 2E. Openstax, Rice University. (1 Ocak 2018). Alındığı Tarih: 3 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^abClark, M. A., Douglas, M. ve Choi, J.. 7.3 Oxidation Of Pyruvate And The Citric Acid Cycle. Biology 2E. Openstax, Rice University. (1 Ocak 2018). Alındığı Tarih: 3 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^abClark, M. A., Douglas, M. ve Choi, J.. 7.4 Oxidative Phosphorylation. Biology 2E. Openstax, Rice University. (1 Ocak 2018). Alındığı Tarih: 3 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^abStanford University, Department of Biochemistry. I. Overview Of Aerobic Metabolism. Biochemistry 200 Ders Notları. Alındığı Tarih: 3 Kasım 2026. Alındığı Yer: Stanford University | Arşiv Bağlantısı
- ^abClark, M. A., Douglas, M. ve Choi, J.. 7.5 Metabolism Without Oxygen. Biology 2E. Openstax, Rice University. (1 Ocak 2018). Alındığı Tarih: 3 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^abClark, M. A., Douglas, M. ve Choi, J.. 7.6 Connections Of Carbohydrate, Protein, And Lipid Metabolic Pathways. Biology 2E. Openstax, Rice University. (1 Ocak 2018). Alındığı Tarih: 3 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^abClark, M. A., Douglas, M. ve Choi, J.. 7.7 Regulation Of Cellular Respiration. Biology 2E. Openstax, Rice University. (1 Ocak 2018). Alındığı Tarih: 3 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^Zedalis, J. ve Eggebrecht, J.. 7.2 Glycolysis. Biology For Ap® Courses. Openstax, Rice University. (1 Ocak 2018). Alındığı Tarih: 3 Kasım 2026. Alındığı Yer: OpenStax | Arşiv Bağlantısı
- ^Krebs, H. A.. The Citric Acid Cycle. Nobel Lecture, December 11, 1953, S. 399-410. Nobel Foundation. (1 Ocak 1953). Alındığı Tarih: 3 Kasım 2026. Alındığı Yer: Nobel Prize | Arşiv Bağlantısı
- ^Mitchell, P.. Coupling Of Phosphorylation To Electron And Hydrogen Transfer By A Chemi-Osmotic Type Of Mechanism. Nature, 191(4784), 144-148. Doi:10.1038/191144A0. (1 Ocak 1961). Alındığı Tarih: 3 Kasım 2026. Alındığı Yer: Nature | Arşiv Bağlantısı
- ^The Royal Swedish Academy of Sciences. Press Release: The 1997 Nobel Prize In Chemistry. 15 Ekim 1997. Nobel Foundation. (1 Ocak 1997). Alındığı Tarih: 3 Kasım 2026. Alındığı Yer: Nobel Prize | Arşiv Bağlantısı
- ^abAmthor, J. S.. Atp Yield Of Plant Respiration: Potential, Actual And Unknown. Annals Of Botany, 132(1), 133-162. Doi:10.1093/Aob/Mcad075. (1 Ocak 2023). Alındığı Tarih: 3 Kasım 2026. Alındığı Yer: PubMed Central / Oxford University Press | Arşiv Bağlantısı
Evrim Ağacı'na her ay sadece 1 kahve ısmarlayarak destek olmak ister misin?
Şu iki siteden biriyle hemen destek olabilirsin:
kreosus.com/evrimagaci | patreon.com/evrimagaci
Çıktı Bilgisi: Bu sayfa, Evrim Ağacı yazdırma aracıyla 07.11.2026 09:38:45 tarihinde oluşturuldu. Evrim Ağacı'ndaki içerikleri birden fazla editör sürekli gözden geçiriyor, güncelliyor ve geliştiriyor. Bu çıktıdan sonraki güncellemeleri görmek ve içeriğin en güncel hâlini okumak için şu adrese git: evrimagaci.org/s/24103
İçerik Kullanım İzinleri: Evrim Ağacı'ndaki yazılı içerikler orijinallerine hiçbir şekilde dokunulmadığı sürece izin alınmaksızın paylaşılabilir, kopyalanabilir, yapıştırılabilir, çoğaltılabilir, basılabilir, dağıtılabilir, yayılabilir, alıntılanabilir. Ancak bu içeriklerin hiçbiri izin alınmaksızın değiştirilemez ve değiştirilmiş hâlleri Evrim Ağacı'na aitmiş gibi sunulamaz. Benzer şekilde, içeriklerin hiçbiri, söz konusu içeriğin açıkça belirtilmiş yazarlarından ve Evrim Ağacı'ndan başkasına aitmiş gibi sunulamaz.