DNA ile RNA Arasındaki Farklar Nelerdir? Yapıları ve Görevleri Nasıl Ayrılır?
Tek Bir Oksijen Atomu Molekülün Kararlılığını Nasıl Etkiler?


Bu Makalede Neler Öğreneceksin?
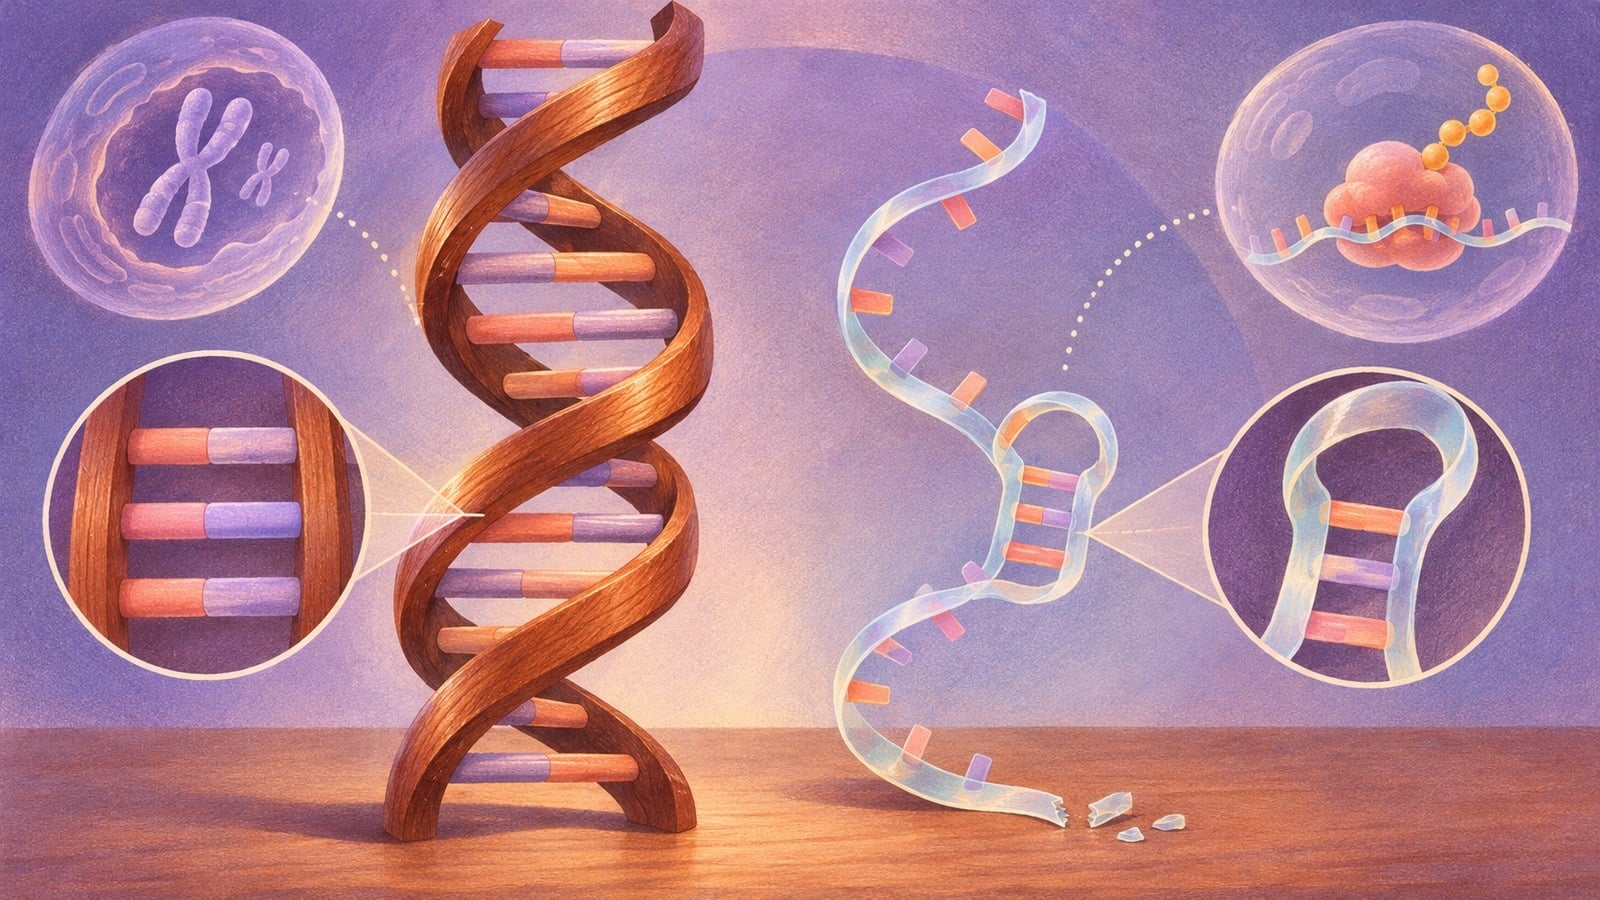
Bu bölümü yapay zekâ hazırlar.- DNA, kalıtsal bilgiyi uzun süre saklayan moleküldür; RNA ise bu bilgiyi taşır, protein üretiminde kullanır ve genlerin çalışmasını düzenler.
- DNA deoksiriboz ve timin, RNA ise riboz ve urasil içerir; ribozdaki ek oksijen RNA’yı kimyasal parçalanmaya daha yatkın kılar.
- Transkripsiyon DNA bilgisini RNA’ya kopyalar, translasyon ise mRNA kodonlarını proteinlere dönüştürür; DNA hasarları özel onarım mekanizmalarıyla giderilir.
DNA ile RNA arasındaki farklar, bu iki nükleik asidin kimyasal yapı taşlarında, zincir düzeninde ve hücresel görevlerinde ortaya çıkmaktadır. Kısaca DNA olarak bilinen deoksiribonükleik asit, bir canlının gelişmesi, yaşamını sürdürmesi ve üremesi için gereken biyolojik talimatları saklamaktadır. Ribonükleik asit ise çok yönlüdür. Kısaca RNA denilen bu yapı, protein yapım talimatlarını taşımaktan genleri düzenlemeye kadar pek çok farklı hücresel görev üstlenmektedir. DNA tipik olarak deoksiriboz şekeri ve timin içeren iki zincirli bir yapıdır. Çoğunlukla tek zincirli olan RNA ise riboz şekeri ve urasil barındırmaktadır.
İki molekül arasındaki ayrım sıkça basit bir zincir sayısı karşılaştırmasına indirgenmektedir. Oysa şeker halkasındaki tek bir oksijen atomu farkı bile RNA zincirinin hidrolizle kesilmeye yatkınlığını artırmaktadır.[3], [10] Genellemeler de her zaman geçerli değildir. DNA sadece hücre çekirdeğinde bulunmamaktadır, mitokondride ve kloroplastta da yer almaktadır. Benzer şekilde RNA molekülleri de ilk bakışta sanılanın aksine her koşulda tek zincirli kalmamaktadır. Bu yazımızda iki nükleik asidin keşfinden atom ölçeğindeki mimarisine, kimyasal kararlılığından hasar onarımına uzanan mekanizmaları birlikte inceleyeceğiz.
Videonun Sayfası: DNA, Kromozom ve Hücre... Bildiğiniz Gibi Değil!
DNA ve RNA Nedir?
Deoksiribonükleik asit (DNA), her canlı türünü kendine özgü kılan biyolojik talimatları taşıyan temel kalıtım molekülüdür. Bir organizmanın gelişmesi, hayatta kalması ve üremesi için ihtiyaç duyduğu bütün yönergeler bu molekülde kayıtlıdır. Bu nedenle hücresel yaşamın sürekliliği bu bilginin korunmasına bağlıdır.[1] Üreme sırasında DNA yavrulara geçmektedir. Böylece yetişkin organizmaların taşıdığı biyolojik talimatlar yeni kuşaklara aktarılmakta ve türlere özgü kalıtsal süreklilik korunmaktadır.
DNA dizileri üzerinde protein yapım talimatlarını barındıran birimler gen kavramının bilinen bir örneğini oluşturmaktadır. Ancak bütün genlerin protein kodladığı düşüncesi yanılgıdır. Örneğin bitki hücrelerindeki kloroplast genomlarının tamamı, protein kodlayan genlerin yanı sıra taşıyıcı RNA ve ribozomal RNA kodlayan genler de içermektedir.[11] Protein kodlayan dizilerin dışındaki DNA bölgelerinin bir kısmı da bir proteinin ne zaman, nasıl ve ne miktarda üretileceğinin düzenlenmesinde rol oynayabilmektedir.[1]
Ribonükleik asit (RNA) ise genetik bilginin hücre içinde işlevsel ürünlere ve düzenleyici süreçlere dönüşmesini sağlayan temel moleküllerden biridir. Hücredeki RNA çeşitliliği, kısaca mRNA, tRNA ve rRNA denilen mesajcı RNA (İng: "messenger RNA"), taşıyıcı RNA ve ribozomal RNA ile sınırlı kalmamaktadır. Hücre içinde farklı görevler yürüten çok sayıda başka RNA türü de bulunmaktadır.[2] Protein kodlamayan RNA moleküllerinin bir bölümü hücresel yapılara katılmakta veya kimyasal tepkimeleri katalizlemektedir. Başka bir grup genlerin etkinliğini kontrol etmektedir. İşlevi henüz tam anlaşılamamış RNA türleri de bulunmaktadır.[2]
Keşiften Çift Sarmal Modeline Uzanan Kanıtlar
Kalıtsal talimatları barındıran DNA molekülünün bilim dünyasında ilk kez saptanması 19. yüzyılın sonlarına dayanmaktadır. İsviçreli biyokimyacı Friedrich Miescher, bu dönemde gerçekleştirdiği çalışmalarla DNA'yı ilk kez gözlemlemiştir.[1] Bu gözlem molekülün görevini açıklamamıştır, çünkü bir maddenin hücrede bulunması ile kalıtsal özellikleri taşıdığının kanıtlanması ayrı basamaklardır.
Kalıtımın kimyasal taşıyıcısını doğrudan gösteren deneysel bulgu 1944 yılında bakteriler üzerinde yapılan dönüşüm araştırmalarından gelmiştir. Avery, MacLeod ve McCarty, pnömokok tipleri arasında dönüşümü başlatan etkin kimyasal fraksiyonu hücre bileşenlerinden ayrıştırmıştır. Analizler, bu fraksiyonun yüksek derecede polimerleşmiş ve viskoz bir DNA biçimi içerdiğini de göstermiştir.[9] Dahası oluşan hücresel değişiklikler rastlantısal değildir. Bu kimyasal etkenle oluşturulan yapısal ve işlevsel değişikliklerin öngörülebilir, tipe özgü ve ardışık biçimde kuşaktan kuşağa aktarılabilir olduğu deneysel olarak gösterilmiştir.
DNA'nın kalıtsal etken olduğunun anlaşılması, molekülün atom düzeyinde nasıl bir uzaysal düzene sahip olduğu sorusunu öne çıkarmıştır. Çözümde X-ışını kırınımı verileri belirleyici olmuştur. Franklin ve Gosling, 1953 tarihli makalelerinde sodyum timonükleat lifleri için iki ayrı tipte X-ışını kırınım deseni bildirmiştir, dolayısıyla molekülün fiziksel geometrisine dair doğrudan kanıtlar elde edilmiştir.[8] Araştırmacılar özellikle B yapısı olarak tanımlanan biçimin kırınım fotoğrafına dikkat çekmiştir, çünkü B yapısının deseninde sarmal yapılara özgü özellikler son derece çarpıcı biçimde görülmüştür.
Aynı yıl Watson ve Crick, yayımlanan çalışmalarında aynı eksen etrafında dolanan iki sarmal zincirden kurulu çift sarmal modelini önermiştir.[7] Bu model üç boyutlu biçimi tanımlamıştır. Ancak iki araştırmacı modelin sadece uzaysal yapıyı açıklamakla kalmadığını da belirtmiştir. Modelde varsaydıkları özgül baz eşleşmesi, genetik materyal için olası bir kopyalama mekanizmasına hemen işaret etmektedir.[7]
Hücredeki Konum, Paketlenme ve Eşlenme
DNA'nın hücre içinde bulunduğu yer, canlının hücresel yapısına göre belirgin biçimde farklılaşmaktadır. Bakterilerde zarla çevrili bir çekirdek yoktur. Dolayısıyla bakteriyel DNA molekülü nükleoit (İng: "nucleoid") adı verilen hücresel bir yapının içinde tutulmaktadır, oysa ökaryot olarak adlandırılan canlılarda DNA hücre çekirdeği adı verilen özel bölgede yer almaktadır.
Ne var ki ökaryotik hücrelerde DNA'nın sadece çekirdekte bulunduğu yönündeki genelleme doğru değildir. Çekirdek dışındaki organellerde de kalıtsal materyal mevcuttur. İnsanlarda ve diğer karmaşık organizmalarda çekirdek DNA'sına ek olarak mitokondri adlı hücresel yapılarda da az miktarda DNA bulunmaktadır.[1] Benzer şekilde bitki hücrelerindeki plastitlerin her biri bağımsız bir genoma sahiptir. Kloroplastları da kapsayan bu plastitler, siyanobakteriyel atalarınınkine benzeyen kendi gen ifadesi sistemlerini barındırmaktadır.[11]
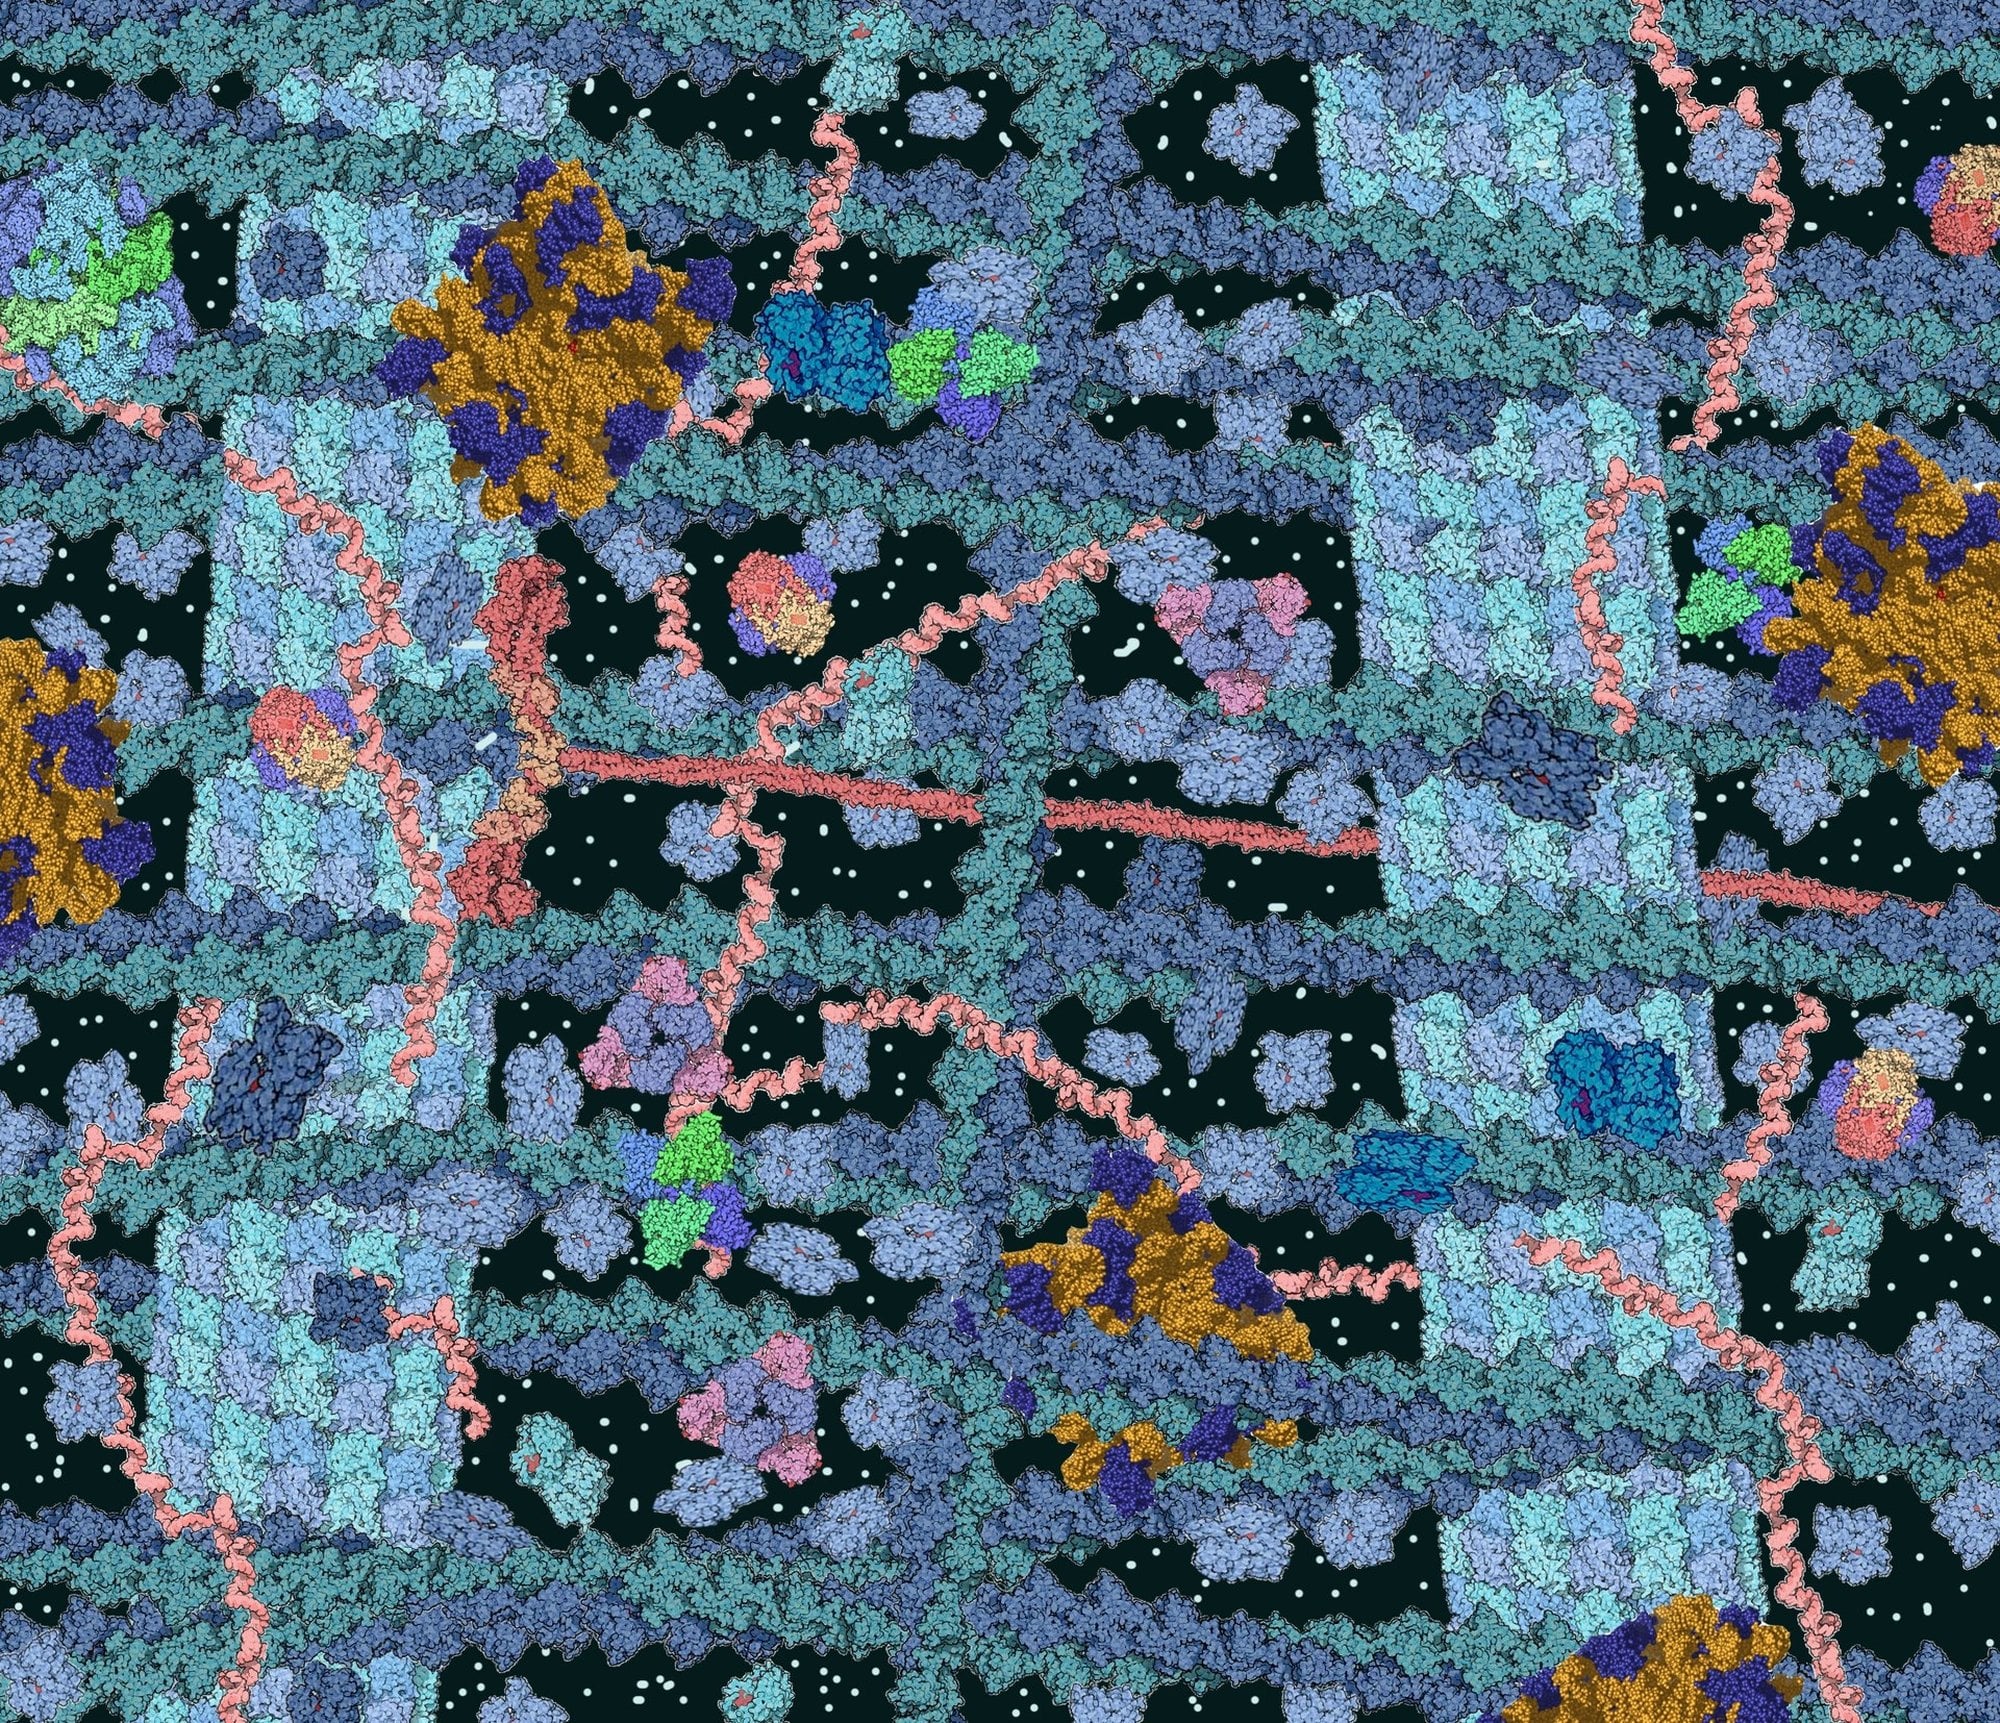
Ökaryotlarda uzun DNA moleküllerinin dar hücre alanına sığabilmesi için çok sıkı biçimde paketlenmesi gerekmektedir. Hücreler bu paketleme sorununu makaraya sarma düzeniyle çözmektedir. Bu düzende DNA molekülü histon adı verilen pozitif yüklü proteinlerin etrafına sarılmakta ve yoğun biçimde paketlenmiş kromozom yapısını oluşturmaktadır.[1], [3]
Paketlenmiş kalıtsal bilginin bölünme ve üreme sırasında çoğaltılması sürecinde DNA'nın çift zincirli sarmal yapısı açılmaktadır. Eşlenme başladığında iki zincir birbirinden ayrılmaktadır. Ayrılan bu tek zincirlerin her biri yeni sentezde görev üstlenmektedir, çünkü her iki zincir de özgün molekülün kopyası olan iki yeni çift zincirli DNA molekülünün inşasında kalıp zincir olarak kullanılmaktadır. Eşeyli üreyen organizmalarda ise yavru birey, çekirdek DNA'sının yarısını erkek ebeveynden, diğer yarısını da dişi ebeveynden almaktadır.[1]
Çekirdek DNA'sı aynı organizmanın hücrelerinde büyük ölçüde aynı kalırken RNA içeriği hücre türüne göre farklılaşmaktadır. Bir hücrede yer alan bütün RNA moleküllerinin toplamı transkriptom (İng: "transcriptome") olarak adlandırılmaktadır.[2] Bu kavram dar kapsamlı değildir. Transkriptom terimi sadece protein kodlayan dizileri kapsamamakta, aksine hücredeki tüm RNA çeşitlerini ifade etmektedir. Dahası aynı organizmanın farklı hücre tipleri birbirinden çok farklı transkriptomlara sahiptir, çünkü her hücre türü farklı genleri ve farklı düzenleyici mekanizmaları kullanmaktadır.
Nükleotit Yapısı ve Moleküler Mimari Farkları
DNA ile RNA arasındaki yapısal ve işlevsel ayrımlar, iki polimeri oluşturan temel yapı taşlarının kimyasından doğmaktadır. Her iki nükleik asit de nükleotit adı verilen birimlerin birbirine bağlanmasıyla kurulmaktadır. Bir nükleotit bir azotlu organik baz, beş karbonlu bir şeker ve en az bir fosfat grubu olmak üzere üç temel bileşenden oluşmaktadır.[3]
Moleküler bileşenlerin adlandırılmasında fosfat grubunun bulunup bulunmaması net bir sınır çizmektedir. Bu sınır, nükleozit ile nükleotidi birbirinden ayırmaktadır. Yapısında sadece beş karbonlu bir şeker ile azotlu organik baz taşıyan ve fosfat içermeyen moleküllere nükleozit (İng: "nucleoside") denmektedir, dolayısıyla nükleozit ile nükleotit kavramları birbirinin yerine kullanılamamaktadır. Nükleotit yapısı içinde azotlu organik baz ile şeker halkası birbirine glikozit bağı (İng: "glycosidic bond") aracılığıyla bağlanmaktadır. Bir nükleozite en az bir fosfat grubu eklendiğinde ise nükleotit oluşmaktadır.[3]
Hem azotlu organik baz hem de şeker halkası karbon atomlarından kurulduğu için atom konumlarını ayırt edecek bir numaralandırma düzeni kullanılmaktadır. Yerleşik kural uyarınca nükleotit şekerindeki karbon atomları 1′ ilâ 5′ arasında numaralandırılmaktadır. Bu işaretleme kimyasal adlandırmada belirleyicidir, çünkü rakamların yanına eklenen işaret şeker üzerindeki karbon atomlarını baz halkasındaki karbonlardan ayırmaktadır. Nükleik asitlerin şeker farkı, bağlanma yönü ve uç kimyası da bu numaralar üzerinden tanımlanmaktadır.[3]
Pentoz, Bazlar ve Şeker-Fosfat Omurgası
İki nükleik aside adını veren ilk temel ayrım, nükleotitlerde yer alan pentoz, yani beş karbonlu şeker türündedir. RNA'daki pentoz şeker riboz iken DNA'daki pentoz şeker deoksiribozdur. Yapısal fark 2′ karbonu konumunda ortaya çıkmaktadır. Riboz şekerinin 2′ karbonunda bir hidroksil (OH) grubu yer almaktadır, oysa deoksiribozun aynı konumunda hidroksil yerine sadece bir hidrojen (H) atomu bulunmaktadır. Bu ayrıma bağlı olarak deoksiriboz içeren birimlere deoksiribonükleotit, riboz içeren birimlere ise ribonükleotit adı verilmektedir.[3]
DNA ve RNA, yapılarında yer alan azotlu organik baz çeşitleri açısından da belirgin bir fark taşımaktadır. Nükleotitlerdeki bazlar halka yapılarına göre iki grupta sınıflandırılmaktadır. Adenin (A) ve guanin (G) pürin bazlarını oluşturmaktadır, ancak sitozin (C), timin (T) ve urasil (U) pirimidin bazı olarak adlandırılmaktadır. Adenin, guanin ve sitozin hem DNA hem de RNA'da ortak olarak bulunmaktadır. Oysa çok küçük istisnalar dışında DNA timin nükleotitleri içermekte, RNA ise timin yerine urasil nükleotitleri taşımaktadır.[3]
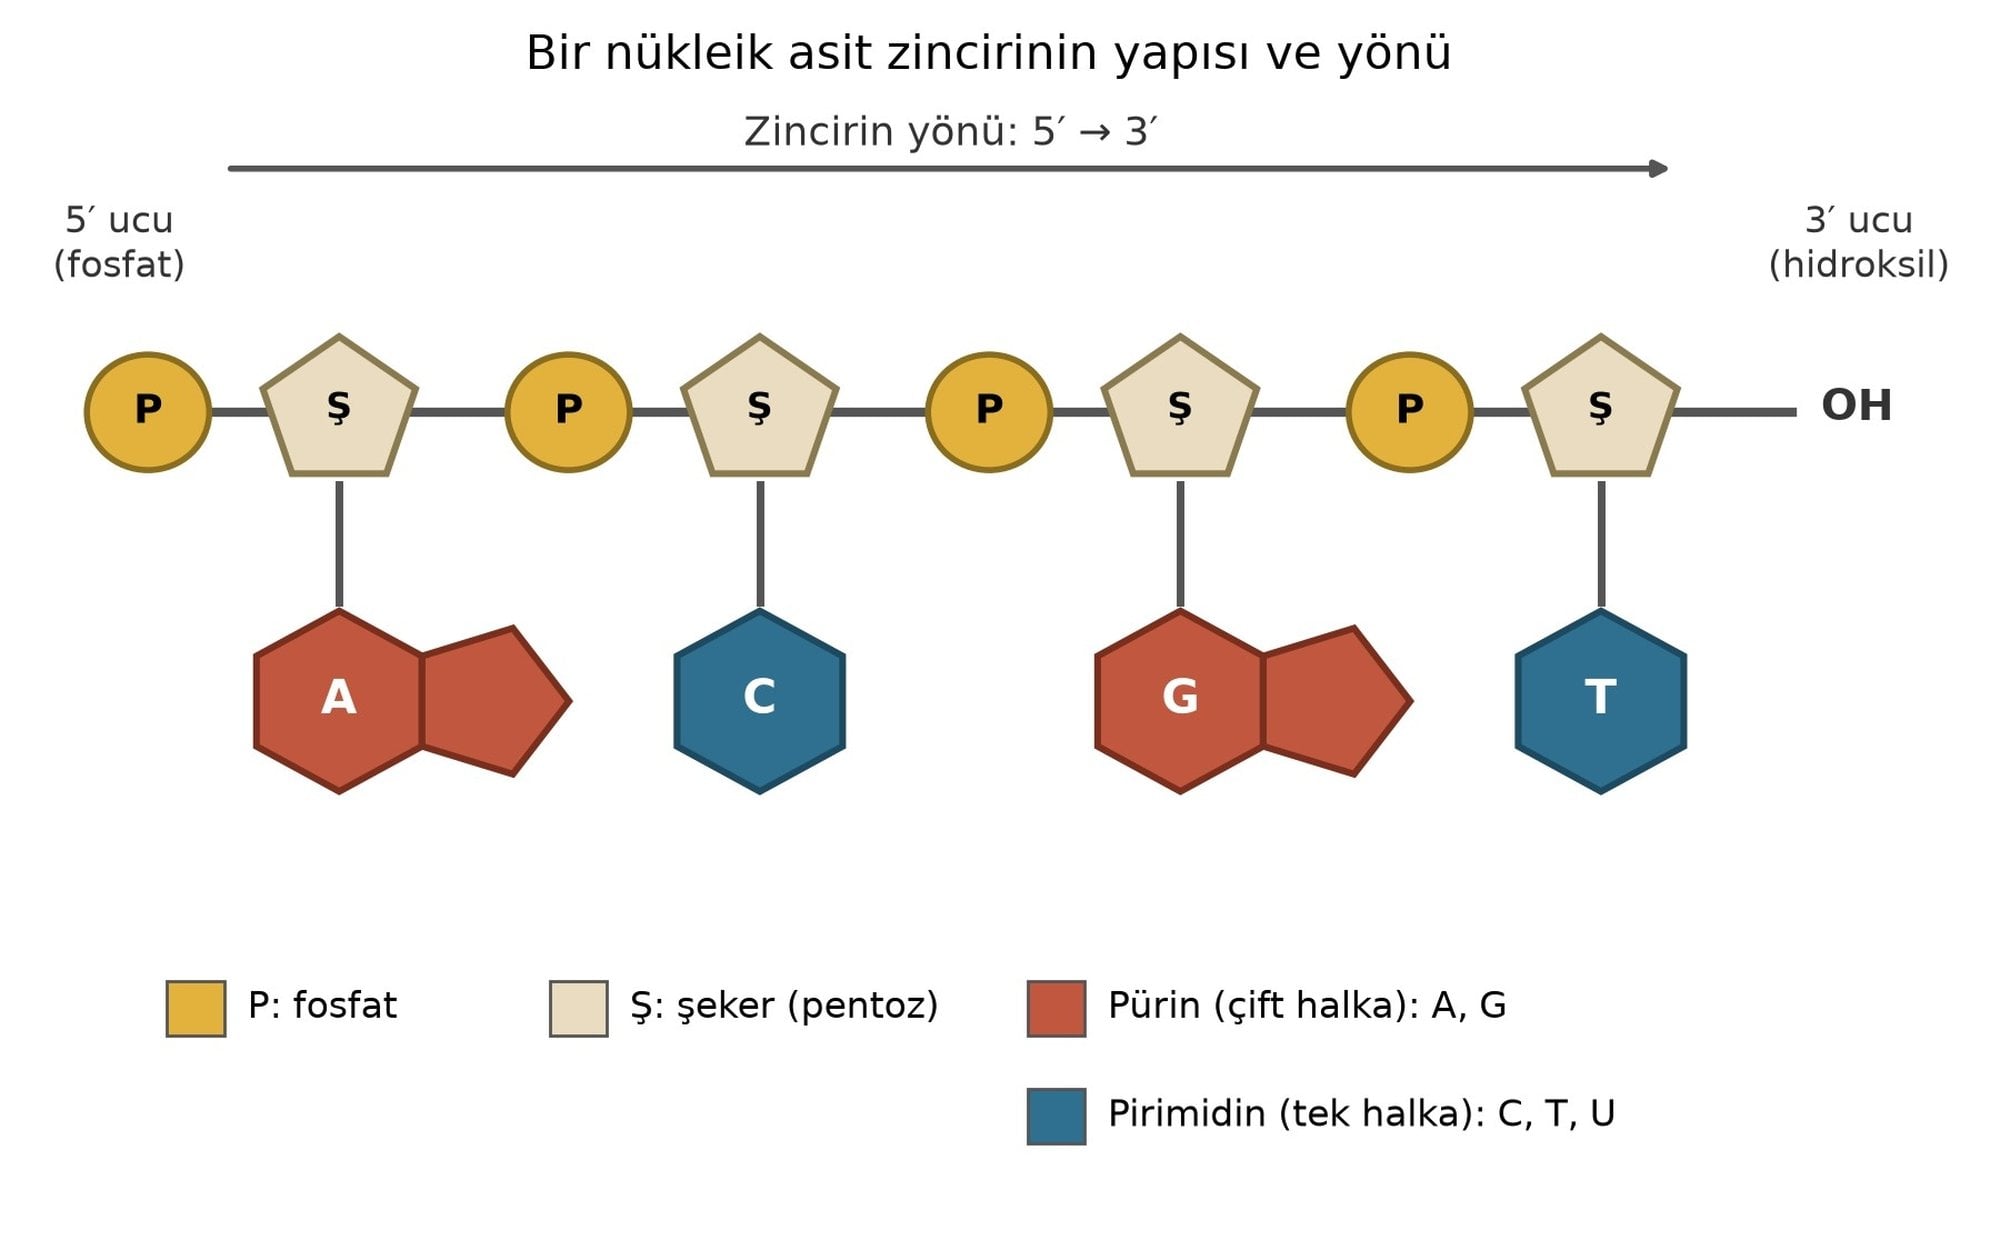
Bir DNA zincirinde hangi biyolojik talimatların bulunduğunu belirleyen etmen, bu dört bazın zincir boyunca dizilme sırasıdır. Tekil yapı taşlarının zincire dönüşmesi kovalent bağlarla gerçekleşmektedir. Aslında bir DNA zinciri, nükleozit monofosfat birimlerinin uç uca eklenmesiyle oluşan uzun bir polimerdir. DNA polimeraz enziminin katalizlediği sentez sırasında bir nükleotit biriminin 3′ hidroksil grubu ile bir sonraki birimin 5′ fosfat grubu birleşmektedir, böylece iki birim arasında fosfodiester bağı (İng: "phosphodiester bond") denilen kovalent bağlantı kurulmaktadır.[3]
Art arda kurulan fosfodiester bağları sonucunda şeker ve fosfat birimleri molekülün kovalent şeker-fosfat omurgası bölümünü oluşturmaktadır. RNA zincirini kuran ribonükleotitler de DNA'dakiyle aynı tür fosfodiester bağlarıyla birleşmektedir. Dolayısıyla iki nükleik asit aynı omurga bağlantısını paylaşmaktadır. Fizyolojik pH koşullarında DNA'nın şeker-fosfat omurgası negatif yüklüdür. Bu nedenle histon proteinlerindeki pozitif yüklü amino asitler bu omurgayla sıkı iyonik bağlar kurmaktadır.[3]
3′ hidroksil ile 5′ fosfat arasında kurulan bu bağlanma düzeni, her nükleik asit zincirine belirgin bir kimyasal yön kazandırmaktadır. Tamamlanmış zincirin iki ucu aynı değildir. Zincirin bir ucunda başka bir nükleotide bağlanmamış serbest 5′ fosfat grubu, karşı uçta ise serbest 3′ hidroksil grubu yer almaktadır.[3]
Zincir Yönü, Baz Eşleşmesi ve Katlanma
DNA tipik olarak merdiven benzeri çift zincirli bir yapıda bulunurken kovalent şeker-fosfat omurgası dış kısımda yer almakta, adenin, guanin, sitozin ve timin bazları sarmalın ortasına yönelmektedir. Çift zincirli bir DNA molekülünü oluşturan iki zincir birbirine göre antiparalel biçimde uzanmaktadır. Yani bir zincirin 5′ ucu, karşıdaki zincirin 3′ ucuyla karşı karşıya durmaktadır. Sarmalın ortasında karşılaşan bazlardan adenin ile timin arasında iki hidrojen bağı kurulmaktadır, fakat guanin ile sitozini üç hidrojen bağı bir arada tutmaktadır.[3]
Çift sarmalın kararlılığını sadece bazlar arasındaki hidrojen bağlarıyla açıklamak eksiktir. Karşılıklı zincirlerin bazları arasındaki hidrojen bağlarına ek olarak, üst üste dizilen apolar bazlar arasındaki hidrofobik etkileşimler de çift sarmalı bir arada tutmaktadır.[3] Molekülün en yaygın biçimi olan B-DNA sarmalında her tam dönüşte 10,5 baz çifti bulunmaktadır. Ayrıca B-DNA sarmalının dış yüzeyi tekdüze değildir. Sarmalın izlediği yol boyunca uzanan belirgin bir büyük oluk (İng: "major groove") ve bir küçük oluk (İng: "minor groove") yer almaktadır.
Antiparalel dizilim ve baz eşleşmesi kurallarının birlikte nasıl işlediği somut bir dizi okuması üzerinde adım adım izlenebilmektedir. Örnek olarak çift sarmaldaki bir DNA zincirinin 5′ ucundan 3′ ucuna doğru T-C-G-A biçiminde okunduğu varsayılmaktadır.[3] Yön bilgisi çözüm için zorunludur. Amaç, karşıdaki tamamlayıcı zincirin kendi 5′ ucundan 3′ ucuna doğru hangi baz sırasıyla okunacağını bulmaktır.
Birinci adımda antiparalel yerleşim kuralı verilen 5′ T-C-G-A 3′ dizisine uygulanmaktadır. İki zincir ters yönlü uzandığı için karşı zincirin sol ucuna 3′ işareti, sağ ucuna ise 5′ işareti konulmaktadır. İkinci adımda her bazın karşısına tamamlayıcı eşi yazılmaktadır. Timinin karşısına adenin, sitozinin karşısına guanin, guaninin karşısına sitozin ve adeninin karşısına timin yerleştirildiğinde karşı zincirin soldan sağa ara görünümü 3′ A-G-C-T 5′ olmaktadır. Üçüncü adımda ise nükleik asit dizileri 5′ ucundan 3′ ucuna doğru okunduğu için elde edilen bu ara dizi sağdaki 5′ ucundan başlanarak sola, yani 3′ ucuna doğru takip edilmektedir.
Adımların sonunda tamamlayıcı DNA zincirinin de kendi 5′ ucundan 3′ ucuna doğru T-C-G-A biçiminde okunduğu ortaya çıkmaktadır. Yön işaretleri ihmal edildiğinde hata doğmaktadır. Örneğin antiparalel yön kuralı atlanıp karşı zincir doğrudan soldan sağa okunursa sonuç hatalı biçimde A-G-C-T sanılmaktadır. Bu nedenle nükleik asit dizilerinin yönü her zaman belirtilmelidir, çünkü iki zincir ters yönlü uzandığından her dizi sadece 5′ ve 3′ uçlarıyla birlikte yazıldığında kimyasal olarak doğru okunabilmektedir.
Hücresel RNA molekülleri ise DNA'dan farklı olarak tek zincir halinde sentezlenmektedir. Ancak RNA'nın hep tek zincirli kaldığı düşüncesi hatalıdır. Aynı RNA zinciri üzerindeki kendi kendine tamamlayıcı bölgeler geriye doğru katlanarak yerel çift zincirli bölgeler oluşturabilmektedir, örneğin tRNA molekülleri görevlerini yerine getirmelerine katkı sağlayan belirgin bir L harfi biçimine katlanmaktadır. RNA sentezlenirken DNA kalıbındaki adeninin karşısına urasil yerleştirilmekte ve RNA içinde de urasil tıpkı timin gibi adeninle baz çifti oluşturmaktadır. Ayrıca RNA'daki eşleşmeler sadece A-U ve G-C çiftlerinden oluşmamaktadır, hatta sınırlı ölçüde urasil ile guanin eşleşmesi de görülebilmektedir.[2], [3]
Kimyasal Kararlılık, Hasar ve Onarım Mekanizmaları
İki nükleik asidin yapısal farkları, hücre içindeki kullanım sürelerini de etkilemektedir. RNA molekülleri uzunluk açısından geniş bir çeşitlilik sergilemekte ve çoğu zaman DNA'ya kıyasla daha geçici olmaktadır.[2] Geçiciliğin kimyasal temellerinden biri riboz şekerindeki 2′ hidroksil grubudur, ancak yıkım hızı ortamdaki nükleaz enzimlerine ve kimyasal etkenlere de bağlıdır.[3], [10]
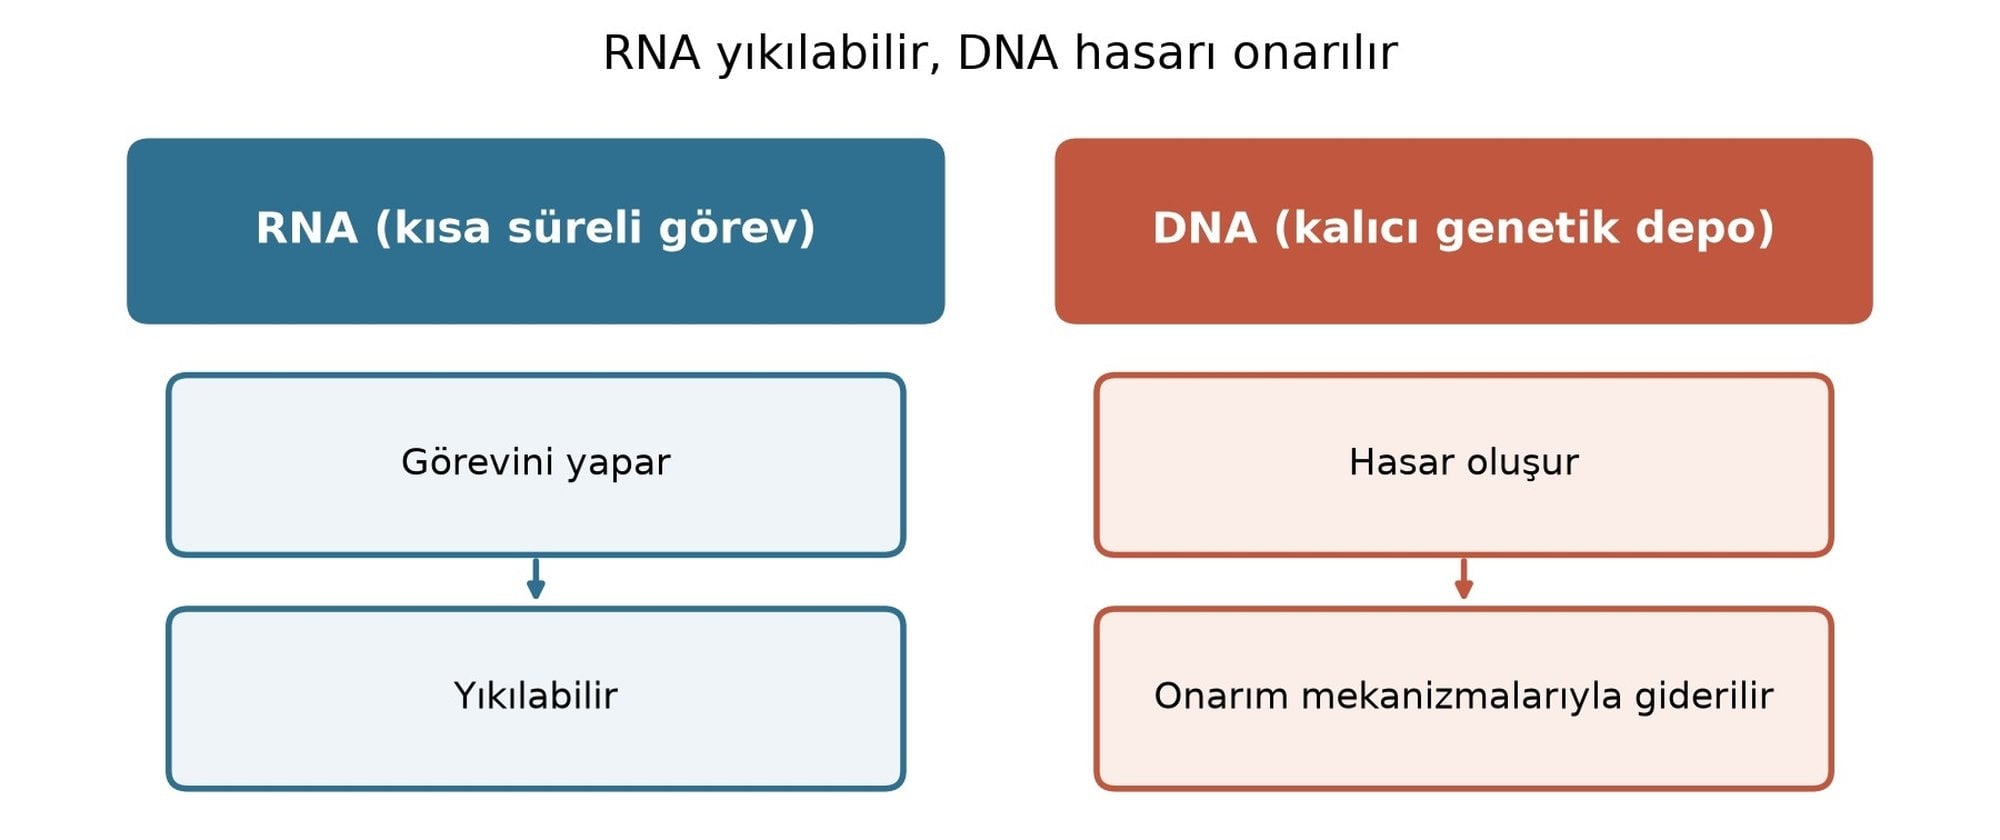
Genetik talimatların kalıcı deposu olan DNA ise kimyasal bakımdan RNA'ya göre çok daha kararlıdır. Ancak bu dayanıklılık mutlak koruma anlamına gelmemektedir. Bütün DNA molekülleri zaman içinde morötesi ışınlara, diğer ışınımlara ve çevredeki çeşitli kimyasallara maruz kalarak zarar görmektedir.[6]
Bu tablo hücre içinde iki farklı strateji doğurmaktadır. Kısa süreli görev üstlenen RNA molekülleri yıkılıp gerektiğinde yeniden üretilebilmektedir. Kuşaktan kuşağa aktarılan DNA'daki hasarların ise kalıtsal bilginin bozulmaması için özel onarım mekanizmalarıyla giderilmesi gerekmektedir.[6]
Riboz Yapısı ve RNA Yıkım Dinamikleri
Tek bir oksijen atomunun varlığı RNA zincirini kimyasal parçalanmaya neden bu kadar açık hale getirmektedir? Yanıt pentoz halkasının kimyasında gizlidir. Riboz üzerindeki 2′ hidroksil grubu, RNA'yı bu konumda hidrojen taşıyan DNA'ya kıyasla hidrolize çok daha yatkın kılmaktadır. RNA omurgasındaki bir fosfodiester bağının hidrolitik olarak kesilmesi, bu 2′ hidroksil grubunun proton kaybetmesiyle başlamaktadır.[10]
Protonunu kaybeden 2′ hidroksil grubu hemen komşusundaki fosfat grubuna doğrudan saldırmaktadır. Bu iç saldırı sonucunda fosfat çevresinde beş koordinasyonlu bir geçiş durumu (İng: "pentacoordinate transition state") meydana gelmektedir, böylece oluşan geçiş durumunun ilerlemesiyle omurgadaki bağ kopmakta ve RNA zinciri kesilmektedir. DNA omurgası ise bu tepkimeye dirençlidir. Bu direncin bir nedeni şeker yapısıdır. DNA'daki deoksiriboz şekerinde 2′ hidroksil grubu bulunmadığı için bu kendiliğinden iç kesilme tepkimesi DNA omurgasında başlayamamaktadır.[3], [10]
Tek zincirli bir RNA molekülünün her noktası hidrolitik kopmaya eşit ölçüde maruz kalmamaktadır. Katlanma biçimi omurga direncini değiştirmektedir. Molekülün katlanmasıyla oluşan ikincil yapı, yani yerel çift zincirli bölgeler hidrolizi azaltabilmektedir, çünkü bu katlanmalar şeker-fosfat omurgasının uzayda alabileceği biçimleri sınırlandırmakta ve omurganın iç saldırıya yatkın biçimlere girmesini zorlaştırmaktadır.[10] Mesajcı RNA'yı ikincil yapı tasarımıyla kararlı hale getirmeyi amaçlayan kuramsal çalışmalar da bu mekanizmaya dayanmaktadır.[10]
Öte yandan RNA kararlılığını sadece DNA'dan farklı bir şeker taşımasına bağlamak yetersiz kalmaktadır. Hücresel ortam koşulları da yıkımı etkilemektedir. Bir RNA molekülünün yıkım hızı, içsel hidrolitik kesilmeye yatkınlığının yanı sıra bulunduğu ortamın kimyasal ve biyolojik koşullarına da bağlıdır. RNA'nın çevresindeki nükleaz enzimleri, oksitleyiciler ve kimyasal değiştiriciler de moleküle saldırarak yıkımı etkilemektedir.[10]
Timin Tercihi, Deaminasyon ve DNA Onarımı
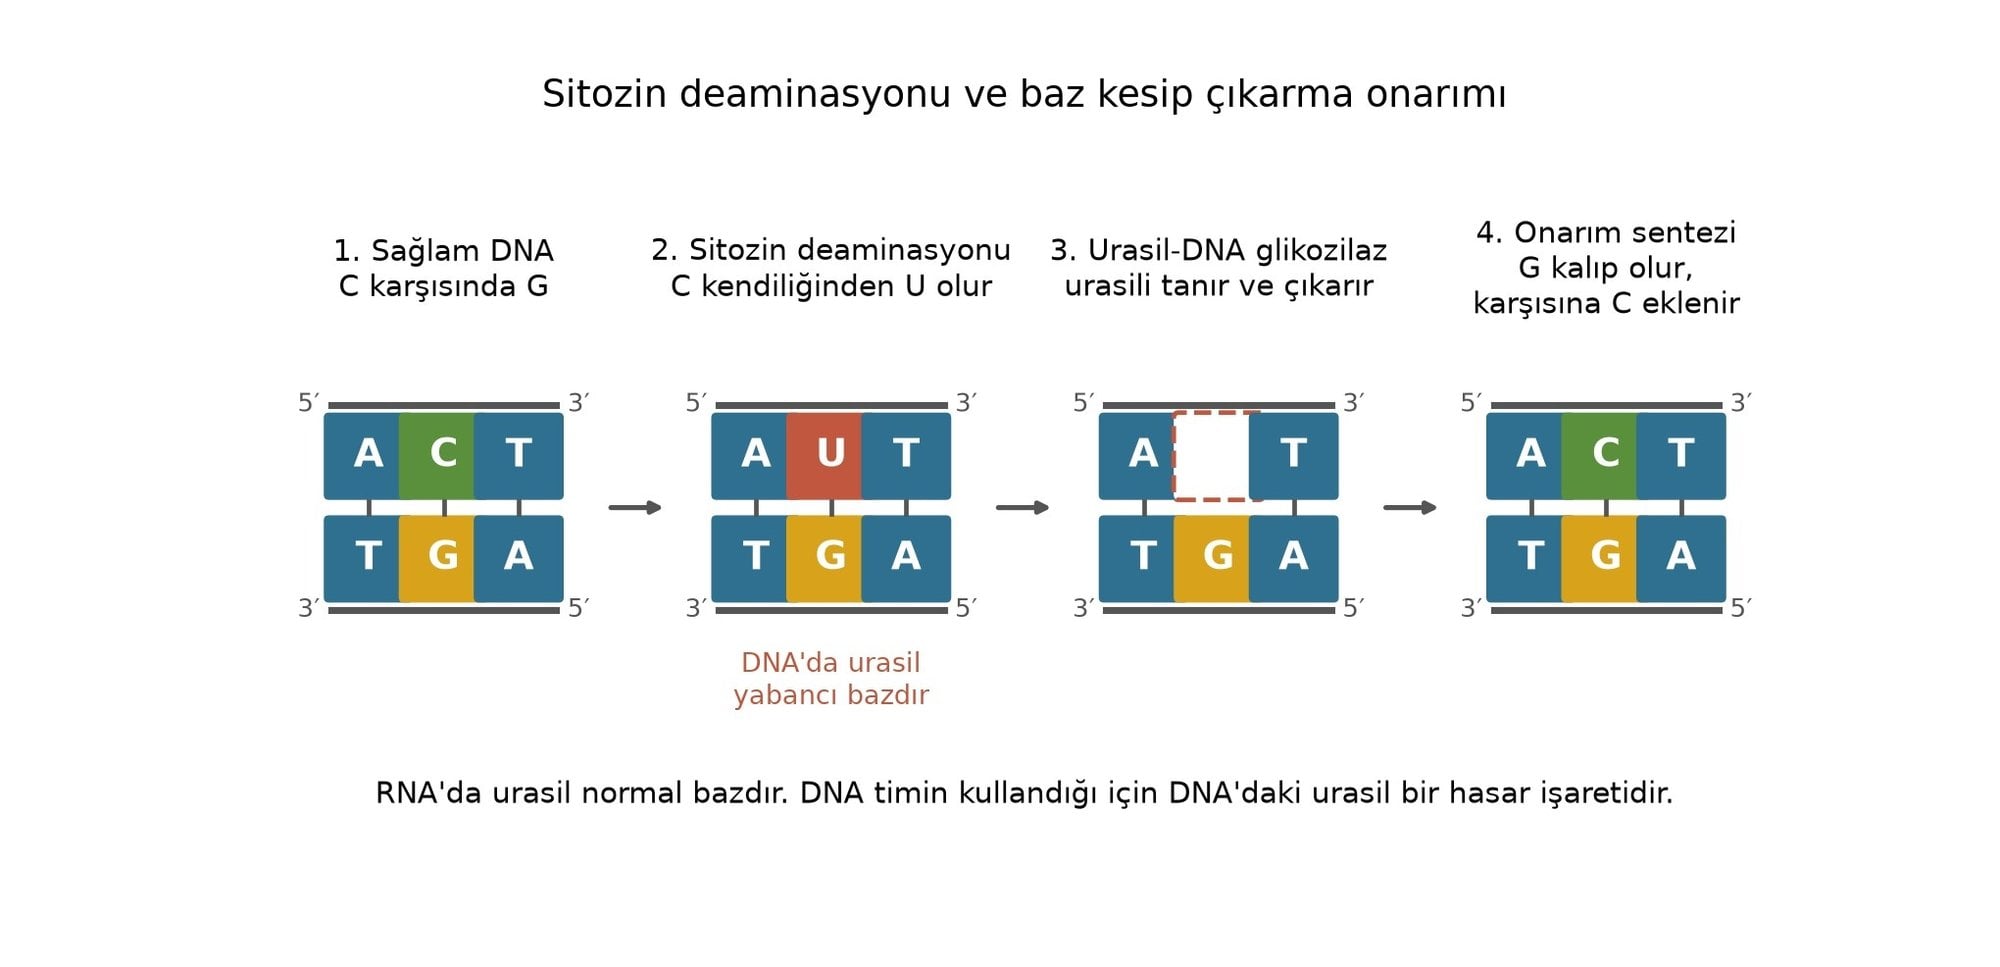
Hücre, RNA'da işlev gören urasil bazı yerine DNA'da neden timin kullanmaktadır? Timinin varlığı, sitozinin kararsızlığından doğan hasarın tanınmasını sağlamaktadır.[3] Her iki nükleik asitte de yer alan pirimidin bazı sitozin kimyasal açıdan değişime açıktır, çünkü sitozin hücre içinde kendiliğinden deaminasyon tepkimesine uğrayarak urasile dönüşebilmektedir. Dolayısıyla DNA'da normal baz olarak timin yerine urasil bulunsaydı, zincirdeki bir urasilin özgün diziden mi geldiği yoksa sitozin bozulmasıyla mı ortaya çıktığı ayırt edilemeyecekti.
DNA'nın doğal yapısında urasil yerine timin bulunması bu belirsizliği ortadan kaldırmaktadır. Yabancı baz doğrudan hata sinyali vermektedir. Bu durumda DNA içinde urasil saptanması, sitozin deaminasyonunun gerçekleştiğini gösteren açık bir hasar işaretidir. Hücrenin baz kesip çıkarma onarımı (İng: "base excision repair") sisteminde görev yapan urasil-DNA glikozilaz enzimi DNA'daki bu urasili tanımaktadır.[6] Enzim ardından urasil ile şeker arasındaki glikozit bağını keserek hasarlı bazı nükleotitten ayırmaktadır.
Hasarlı bölümün uzaklaştırılmasından sonra dizinin aslına uygun biçimde tamamlanması DNA'nın çift zincirli ve antiparalel mimarisine dayanmaktadır. Örneğin kesip çıkarma onarımı mekanizmalarında hasarlı DNA parçası kesilip çıkarılmakta, sağlam karşı zincir kalıp olarak kullanılarak onarım sentezi yapılmakta ve ligasyonla zincir sürekliliği yeniden sağlanmaktadır.[6] Eşlenme hatalarında ise ek bir koşul vardır. Yanlış eşleşme onarımı (İng: "mismatch repair") sistemi kopyalama kusurlarını gidermektedir, ancak kopyalama hatalarının doğru düzeltilebilmesi için sistemin yeni sentezlenmiş DNA zincirini kalıp zincirden ayırt edebilmesi gerekmektedir.
Ancak sağlam karşı zinciri kalıp olarak kullanan onarım yollarının belirgin bir sınırı vardır. DNA'nın her iki zincirinin birden aynı bölgede zarar gördüğü durumlarda onarım enzimlerinin kalıp olarak kullanabileceği hasarsız bir karşı zincir kalmamaktadır.[6] Bu nedenle tek zincirdeki hasarı karşı zinciri kalıp alarak gideren söz konusu mekanizmalar, iki zincirin birden hasar gördüğü durumları tek başına onaramamaktadır.
Gen İfadesi Sürecinde İşbölümü
Genetik materyalde saklanan biyolojik yönergelerin hücresel işlevlere dönüştürülmesi iki nükleik asit arasındaki koordineli işbölümüne dayanmaktadır. DNA üzerindeki genlerde saklı bilginin RNA molekülleri aracılığıyla işlevsel ürünlere dönüştürülmesi süreci gen ifadesi olarak tanımlanmaktadır. Bu işleyişte roller net biçimde ayrılmıştır. DNA hücrede kalıcı bilgi arşivi olarak korunmaktadır, oysa çeşitli RNA molekülleri söz konusu talimatların kopyalanarak taşınması, hücresel düzeyde düzenlenmesi ve protein yapımında kullanılması görevlerini doğrudan üstlenmektedir.
Hücrenin yapısal organizasyonu, gen ifadesi basamaklarının nerede ve hangi zamanlamayla gerçekleşeceğini doğrudan belirlemektedir. Prokaryotik hücrelerde nükleoit bölgesini sitoplazmadan ayıran bir zar engeli yer almadığı için bir genin tamamı henüz kopyalanıp bitmeden, sentezlenmekte olan mRNA molekülü üzerinden protein üretimi hemen başlayabilmektedir.[4] Yani prokaryotik hücrelerde transkripsiyon ve translasyon süreçleri aynı hücresel bölgede eşzamanlı biçimde yürütülebilmektedir.
Ökaryotik organizmaların çekirdek genlerinde ise süreçler mekansal olarak ayrılmıştır. Çekirdek DNA'sındaki bilgilerin RNA'ya kopyalanması çekirdek içinde gerçekleşmektedir. Üretilen RNA molekülleri sitoplazmaya gönderilmeden önce burada çeşitli olgunlaşma işlemlerinden geçirilmekte, protein sentezi ise çekirdek dışındaki sitoplazmada yürütülmektedir. Ne var ki ökaryotlarda transkripsiyonun sadece çekirdekte gerçekleştiği yönündeki mutlak bir genelleme kapsamı aşmaktadır. Daha önce değinildiği gibi bitki hücrelerindeki plastitler kendi gen ifadesi sistemlerini çekirdek dışında çalıştırmaktadır.[11]
Transkripsiyon ve RNA İşlenme Basamakları
DNA dizilerinde kayıtlı genetik bilginin RNA dizilerine kopyalanması işlemine transkripsiyon adı verilmektedir. DNA'ya bağımlı RNA sentezi olarak da bilinen bu süreç, RNA polimeraz enzimi tarafından katalizlenmektedir.[4] Bakteriyel hücrelerde bu görev tek bir enzimle yürütülmektedir, ancak ökaryotik hücrelerde farklı gen sınıflarını transkribe eden birden fazla RNA polimeraz çeşidi bulunmaktadır. Bunun yanı sıra bu enzimlerin çalışma koşulu farklıdır. RNA polimerazlar, DNA eşlenmesini yürüten polimerazlardan farklı olarak yeni bir zincir sentezlemeye başlamak için herhangi bir başlangıç primerine ihtiyaç duymamaktadır.
Sentez süreci DNA üzerindeki özgül başlangıç ve bitiş işaretleri arasında ilerlemektedir. RNA polimerazın transkripsiyonu başlatmak üzere bağlandığı DNA dizisine promotör denmektedir. Belirli bir DNA bölgesi kopyalanırken iki zincirin tamamı değil, sadece biri kalıp zincir olarak kullanılmaktadır. Enzim kalıp zincir boyunca ilerlerken ribonükleotit birimlerini birbirine eklemekte ve yeni RNA dizisini her zaman 5′ ucundan 3′ ucuna doğru sentezlemektedir.[4] Bu aşamada tamamlayıcı baz eşleşmesi işlemektedir. Örneğin DNA'nın kalıp zincirindeki adenin bazının karşısına yeni RNA dizisinde urasil yerleştirilmektedir.
Polimeraz enzimi kalıp zincir üzerinde ilerledikçe arkasında kalan DNA bölgesi yeniden sarılarak çift zincirli sarmal yapısına dönmektedir, dolayısıyla yeni sentezlenen RNA dizisi kalıptan kademeli olarak ayrılmaktadır. Enzim, kopyalamanın bitiş noktasını belirten terminatör dizisi adlı bölgeye ulaştığında nükleotit eklemeyi bırakıp kalıptan kopmaktadır. Sonuçta kalıp DNA molekülü tüketilmemektedir. Bu nedenle hücresel arşiv kalıcı biçimde değiştirilmeden yepyeni bir RNA kopyası elde edilmektedir.
Ökaryotlarda ham RNA doğrudan sitoplazmaya gönderilmemektedir. Çekirdekten çıkacak tipik bir mRNA molekülünün bir ucuna 5′ başlık (İng: "five-prime cap") adı verilen koruyucu bir kimyasal yapı eklenmektedir, diğer ucuna ise poli-A kuyruğu olarak adlandırılan uzun bir adenin nükleotitleri dizisi takılmaktadır. Üstelik küçük nükleer RNA (İng: "small nuclear RNAs") türlerinin katıldığı özel bir düzenekle öncül dizi kesilip yeniden birleştirilmektedir. RNA kırpılması (İng: "RNA splicing") denilen bu aşamada intron bölgeleri diziden çıkarılmaktadır.
Evrim Ağacı ürünlerinden haberdar mısınız?
Kırpılma süreci tek tip kesimle sınırlı kalmamaktadır. Alternatif kırpılma (İng: "alternative splicing") mekanizması sayesinde farklı ekzon (İng: "exon") bölgeleri son RNA dizisine dahil edilebilmekte veya dışarıda bırakılabilmektedir, böylece genomdaki tek bir genden birbirinden farklı RNA molekülleri üretilebilmektedir. Dahası transkripsiyon tamamlandıktan sonra belirli nükleotitlere küçük kimyasal gruplar bağlanarak çeşitli RNA değişiklikleri de gerçekleştirilebilmektedir. Dolayısıyla tek bir kalıp genden başlayan bilgi akışı, çekirdek içindeki bu işlenme ve kimyasal düzenleme adımlarıyla çok sayıda işlevsel ürüne çeşitlenebilmektedir.
Translasyon ve Üç Temel RNA Türü
Mesajcı RNA üzerindeki genetik bilginin protein sentezini yönlendirmek amacıyla kullanılması sürecine translasyon denmektedir. Ancak sitoplazmaya ulaşan mRNA molekülünün tamamı proteine çevrilmemektedir. Molekülün hem 5′ ucunda hem de 3′ ucunda protein kodlamayan çevrilmeyen bölgeler (İng: "untranslated regions") yer almaktadır, dolayısıyla asıl protein kodlayan dizi bu iki uç bölgenin arasında bulunmaktadır.[5]
Protein kodlayan bölgedeki bilgi üçlü baz grupları halinde çözümlenmektedir. Bir mRNA dizisinde yer alan ve proteine eklenecek her bir amino asidi belirleyen üç bazlık birime kodon adı verilmektedir. RNA yapısında dört farklı baz çeşidi bulunduğundan, üçlü dizilimler halinde oluşturulabilecek toplam kombinasyon sayısı şu üstel bağıntıyla hesaplanmaktadır:[5]
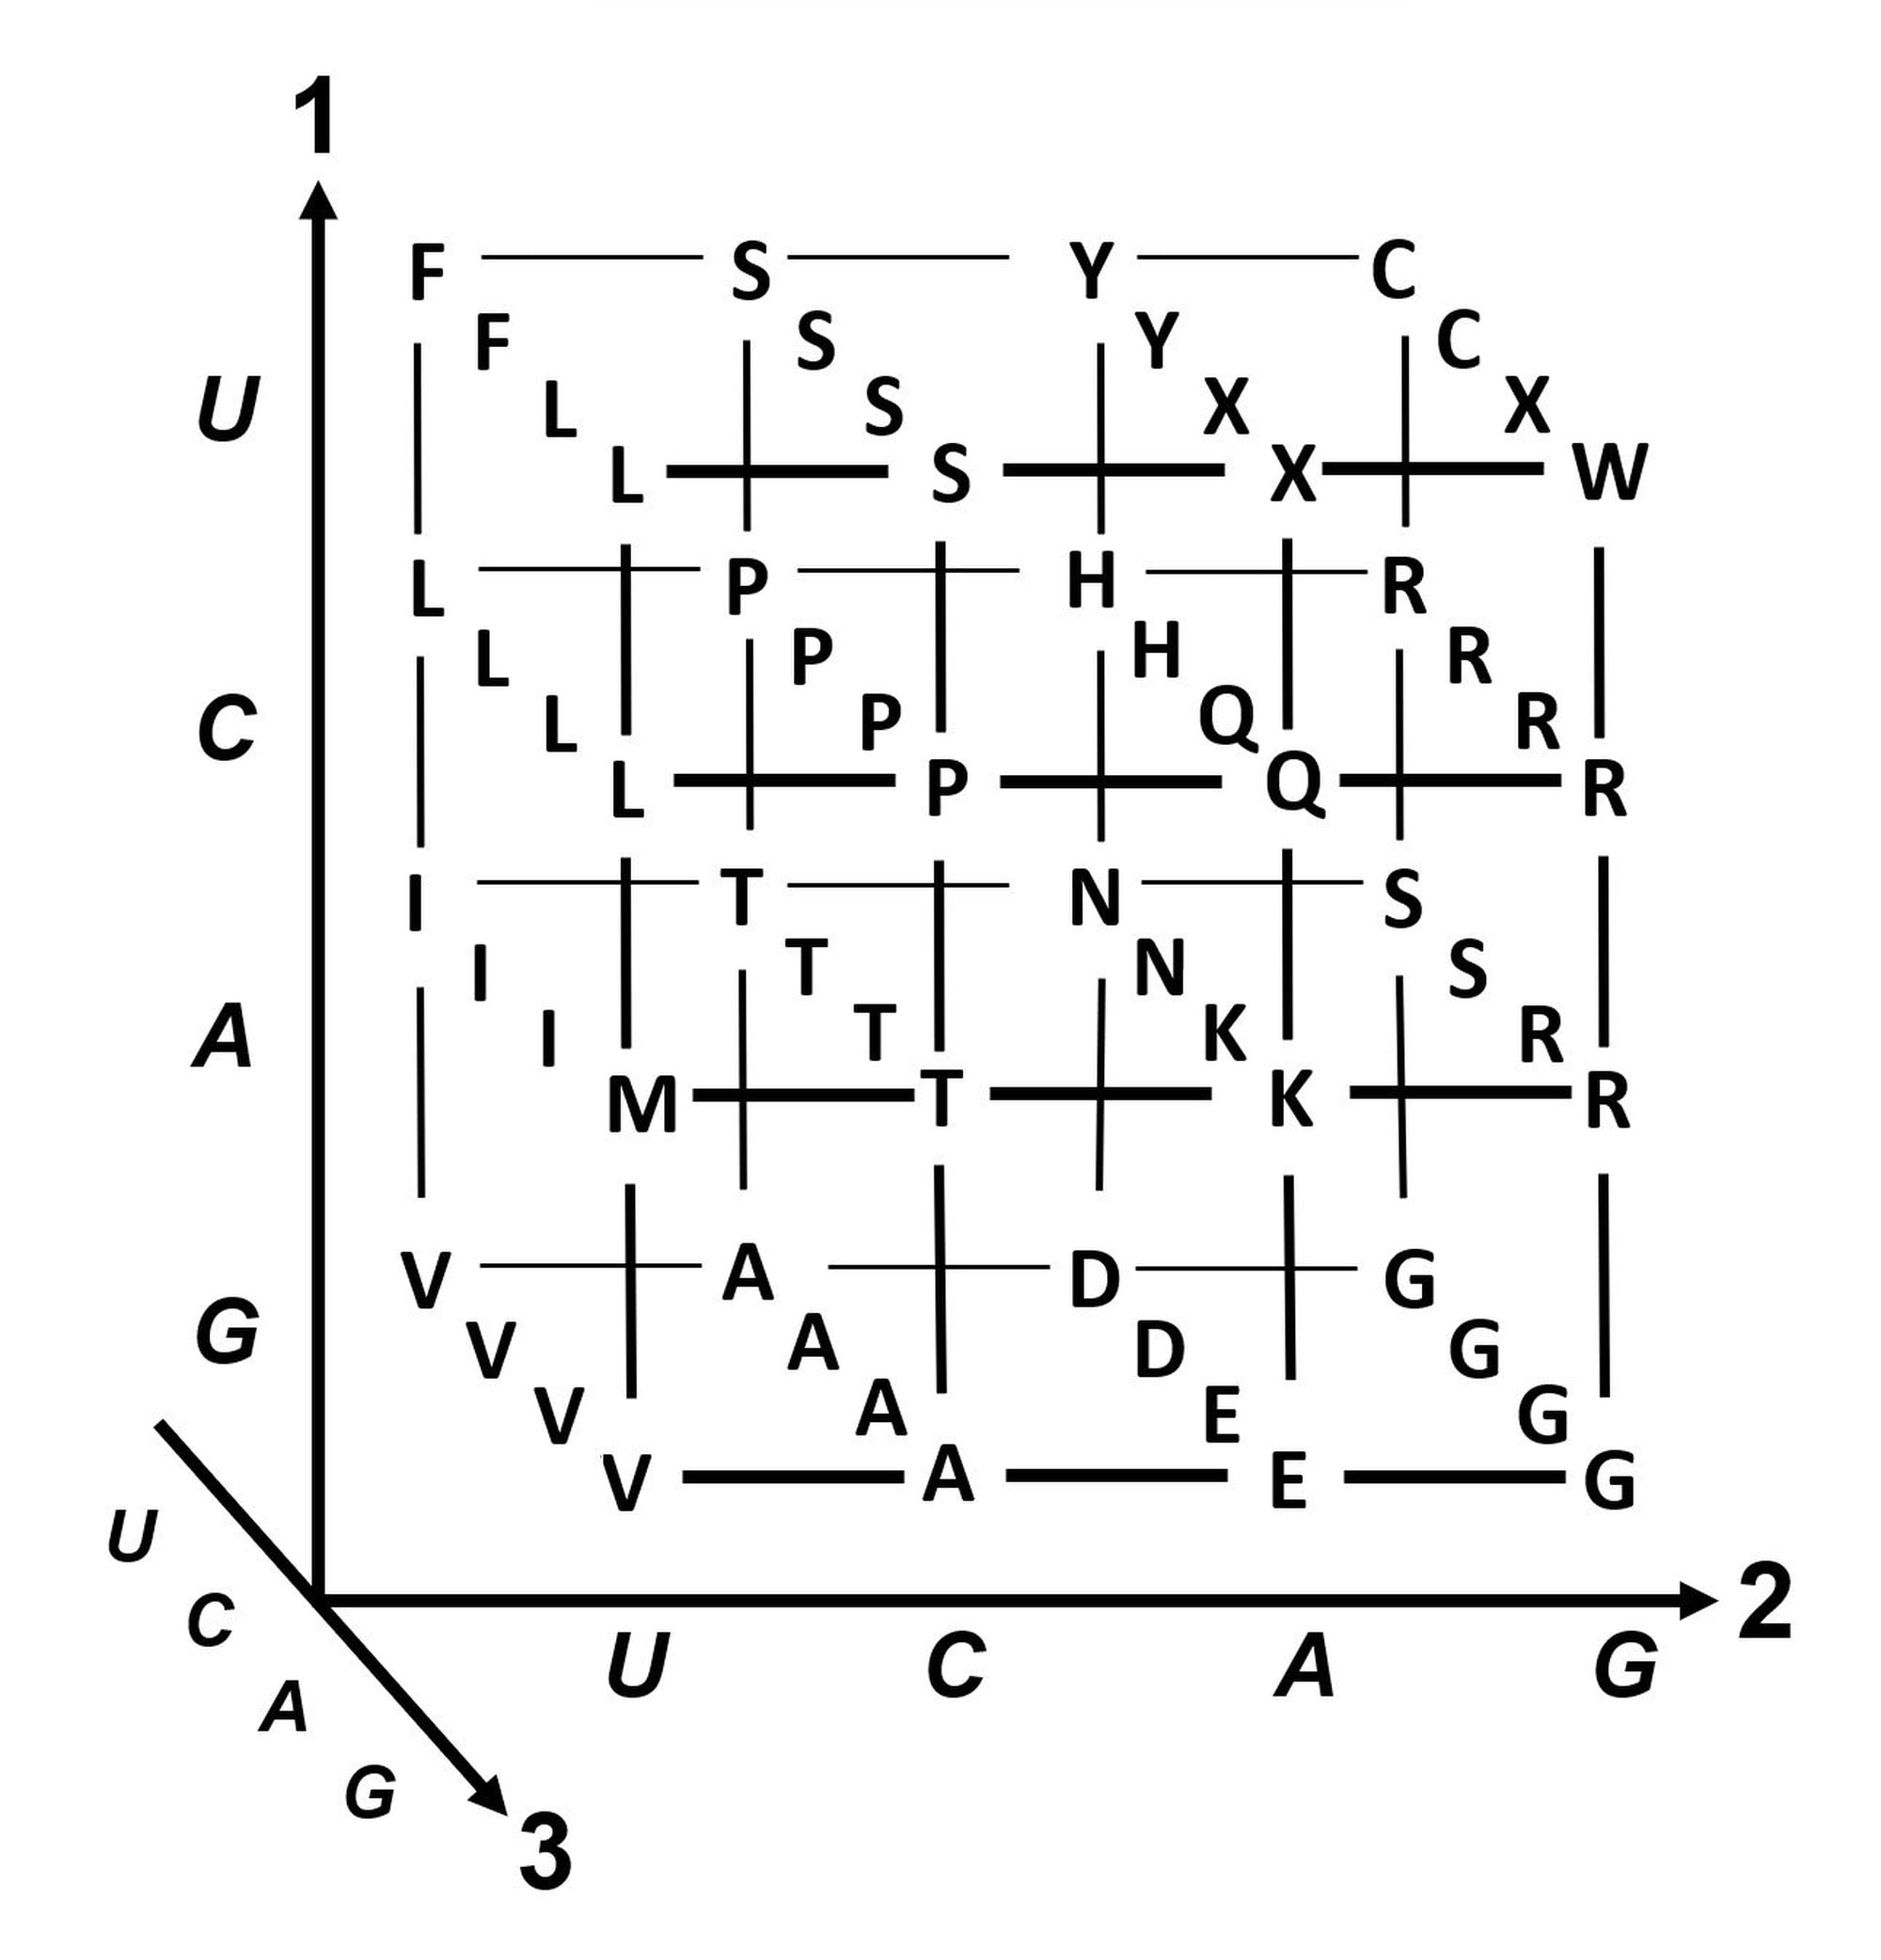
Burada tabandaki 4 sayısı RNA'daki dört baz çeşidini, üstteki 3 sayısı ise her bir kodonu oluşturan baz sayısını göstermektedir. Ortaya çıkan 64 olası üçlüye karşılık proteinlerin yapımında sadece 20 standart amino asit kullanılmaktadır. Bu nedenle genetik kodda birden fazla kodon aynı amino asidi belirleyebilmektedir. Genetik kodun yozlaşması (İng: "degeneracy") olarak adlandırılan bu yedeklilik, alanin kodonlarında açıkça görülmektedir.
Söz gelimi bir mRNA dizisi üzerinde yer alan GCU, GCA, GCC ve GCG kodonları ele alınabilir. Amaç bu dizilerin amino asit karşılıklarını bulmaktır. Birinci adımda dört kodonun baz dizileri karşılaştırıldığında ilk iki konumdaki guanin ve sitozin bazlarının sabit kaldığı, ancak üçüncü konumdaki bazın sırasıyla urasil, adenin, sitozin ve guanin olarak değiştiği görülmektedir. İkinci adımda standart genetik kod karşılıklarına bakıldığında GCU, GCA, GCC ve GCG üçlülerinin tamamının alanin amino asidini belirttiği saptanmaktadır. Böylece dört farklı RNA kodonunun tek bir amino asidi kodladığı ve üçüncü bazdaki değişimin eklenen amino asidi değiştirmediği ortaya çıkmaktadır.
Standart genetik kodda proteinin başlangıcını ve sonunu belirleyen kodonlar da vardır. Metiyonin amino asidini kodlayan AUG dizisi proteinlerin büyük çoğunluğu için başlangıç kodonu olarak kullanılmaktadır, ancak bu durum bütün başlangıçların zorunlu olarak AUG olduğu anlamına gelmemektedir. Öte yandan 64 kodondan üçü amino asit kodlamamaktadır. Durdurma kodonu olarak bilinen bu üçlüler, protein kodlayan dizinin bittiğini bildirmektedir.
Mesajcı RNA'daki kodonların amino asit diline çevrilmesinde tRNA adaptör görevi görmektedir. Yaklaşık 75 ilâ 90 nükleotit uzunluğundaki bu küçük RNA molekülleri, kendi üzerindeki tamamlayıcı bölgelerin katlanmasıyla üç boyutlu L biçimini almaktadır. Bu biçim molekülün görevini yerine getirmesine katkı sağlamaktadır.[2], [5] Her tRNA molekülünün 3′ ucuna uygun amino asit aminoaçil-tRNA sentetaz (İng: "aminoacyl tRNA synthetase") enzimi tarafından kovalent bağla bağlanmaktadır. Ayrıca molekülün karşı bölgesinde mRNA kodonuna tamamlayıcı olan üç bazlık antikodon dizisi yer almaktadır.
Kodon ile antikodon arasındaki eşleşmenin yönü triptofan amino asidi örneği üzerinde adım adım incelenebilmektedir. Örnek girdi olarak mRNA üzerinde triptofanı kodlayan 5′ UGG 3′ kodonu verilmektedir. İki RNA parçası birbiriyle antiparalel eşleşmektedir, dolayısıyla bu kodonu tanıyan tRNA antikodonunun hem baz sırasını hem de 3′ ve 5′ yönelimini doğru belirlemek gerekmektedir. Çözüm iki temel adımda tamamlanmaktadır.
Birinci adımda antiparalel dizilim kuralı gereğince 5′ UGG 3′ dizisinin karşısına gelecek tRNA parçasının uçları ters çevrilerek soldan sağa 3′ ve 5′ biçiminde konumlandırılmaktadır. İkinci adımda tamamlayıcı baz kuralları sırayla uygulanmaktadır. İlk konumdaki urasil (U) karşısına adenin (A), ikinci konumdaki guanin (G) karşısına sitozin (C) ve üçüncü konumdaki guanin (G) karşısına da sitozin (C) bazları getirilmektedir. Sonuçta mRNA üzerindeki 5′ UGG 3′ kodonu ile tRNA üzerindeki 3′ ACC 5′ antikodonu karşılıklı eşleşmektedir, ancak aynı antikodon kendi 5′ ucundan 3′ ucuna doğru yazıldığında 5′ CCA 3′ biçimini almaktadır.
Bu translasyon ve birleştirme işlemlerinin tamamı ribozom adı verilen yapılarda gerçekleşmektedir. Ribozomlar proteinler ile rRNA moleküllerinin birleşmesiyle oluşmakta ve biri büyük, diğeri küçük olmak üzere iki alt birimde düzenlenmektedir. Oysa rRNA burada sadece yapısal iskelet değildir. Katalitik yeteneğe sahip RNA moleküllerine ribozim (İng: "ribozyme") adı verilmektedir. Ribozomdaki rRNA molekülleri de birer ribozimdir, çünkü yeni proteinler kurulurken amino asitler arasındaki peptit bağlarının oluşumunu doğrudan katalizlemektedir.[3]
Ribozom üzerindeki translasyon süreci üç ardışık evrede tamamlanmaktadır. İlk evre olan başlama aşamasında küçük ve büyük ribozom alt birimleri ile başlatıcı tRNA molekülü mRNA transkripti üzerinde bir araya gelerek sentez düzeneğini kurmaktadır. Ardından uzama evresi başlamaktadır. Bu evrede ribozom mRNA üzerindeki her kodonu sırayla okurken uygun tRNA molekülleri doğru amino asitleri getirmekte ve bu amino asitler büyüyen polipeptit zincirine tek tek eklenmektedir.[2], [5]
Üçüncü aşamayı ise sonlanma (İng: "termination") evresi oluşturmaktadır. Sentez düzeneği mRNA dizisi üzerindeki üç durdurma kodonundan birine ulaştığında yeni amino asit eklenmesi durmaktadır, dolayısıyla tamamlanan polipeptit zinciri serbest bırakılmakta ve ribozom yeniden kendi büyük ve küçük alt birimlerine ayrılmaktadır. Böylece mRNA üzerindeki geçici genetik mesaja göre işlevsel bir protein sentezlenmektedir.
Kodlamayan ve Düzenleyici RNA Türleri
Hücredeki genetik yönetim sadece mRNA, tRNA ve rRNA üçlüsünün yürüttüğü protein sentezinden oluşmamaktadır. DNA üzerinde protein kodlayan genlerin dışında kalan dizilerin bir kısmı da bir proteinin ne zaman, nasıl ve ne miktarda üretileceğinin düzenlenmesinde rol oynayabilmektedir.[1] Benzer şekilde kodlamayan RNA (İng: "noncoding RNA") türleri de işlevsiz değildir. Nitekim bu moleküllerin bir kısmı rRNA örneğinde görüldüğü üzere yapısal ve katalitik görevler üstlenmektedir, ancak geniş bir başka grubu hücredeki genlerin etkinliğini doğrudan denetlemektedir.
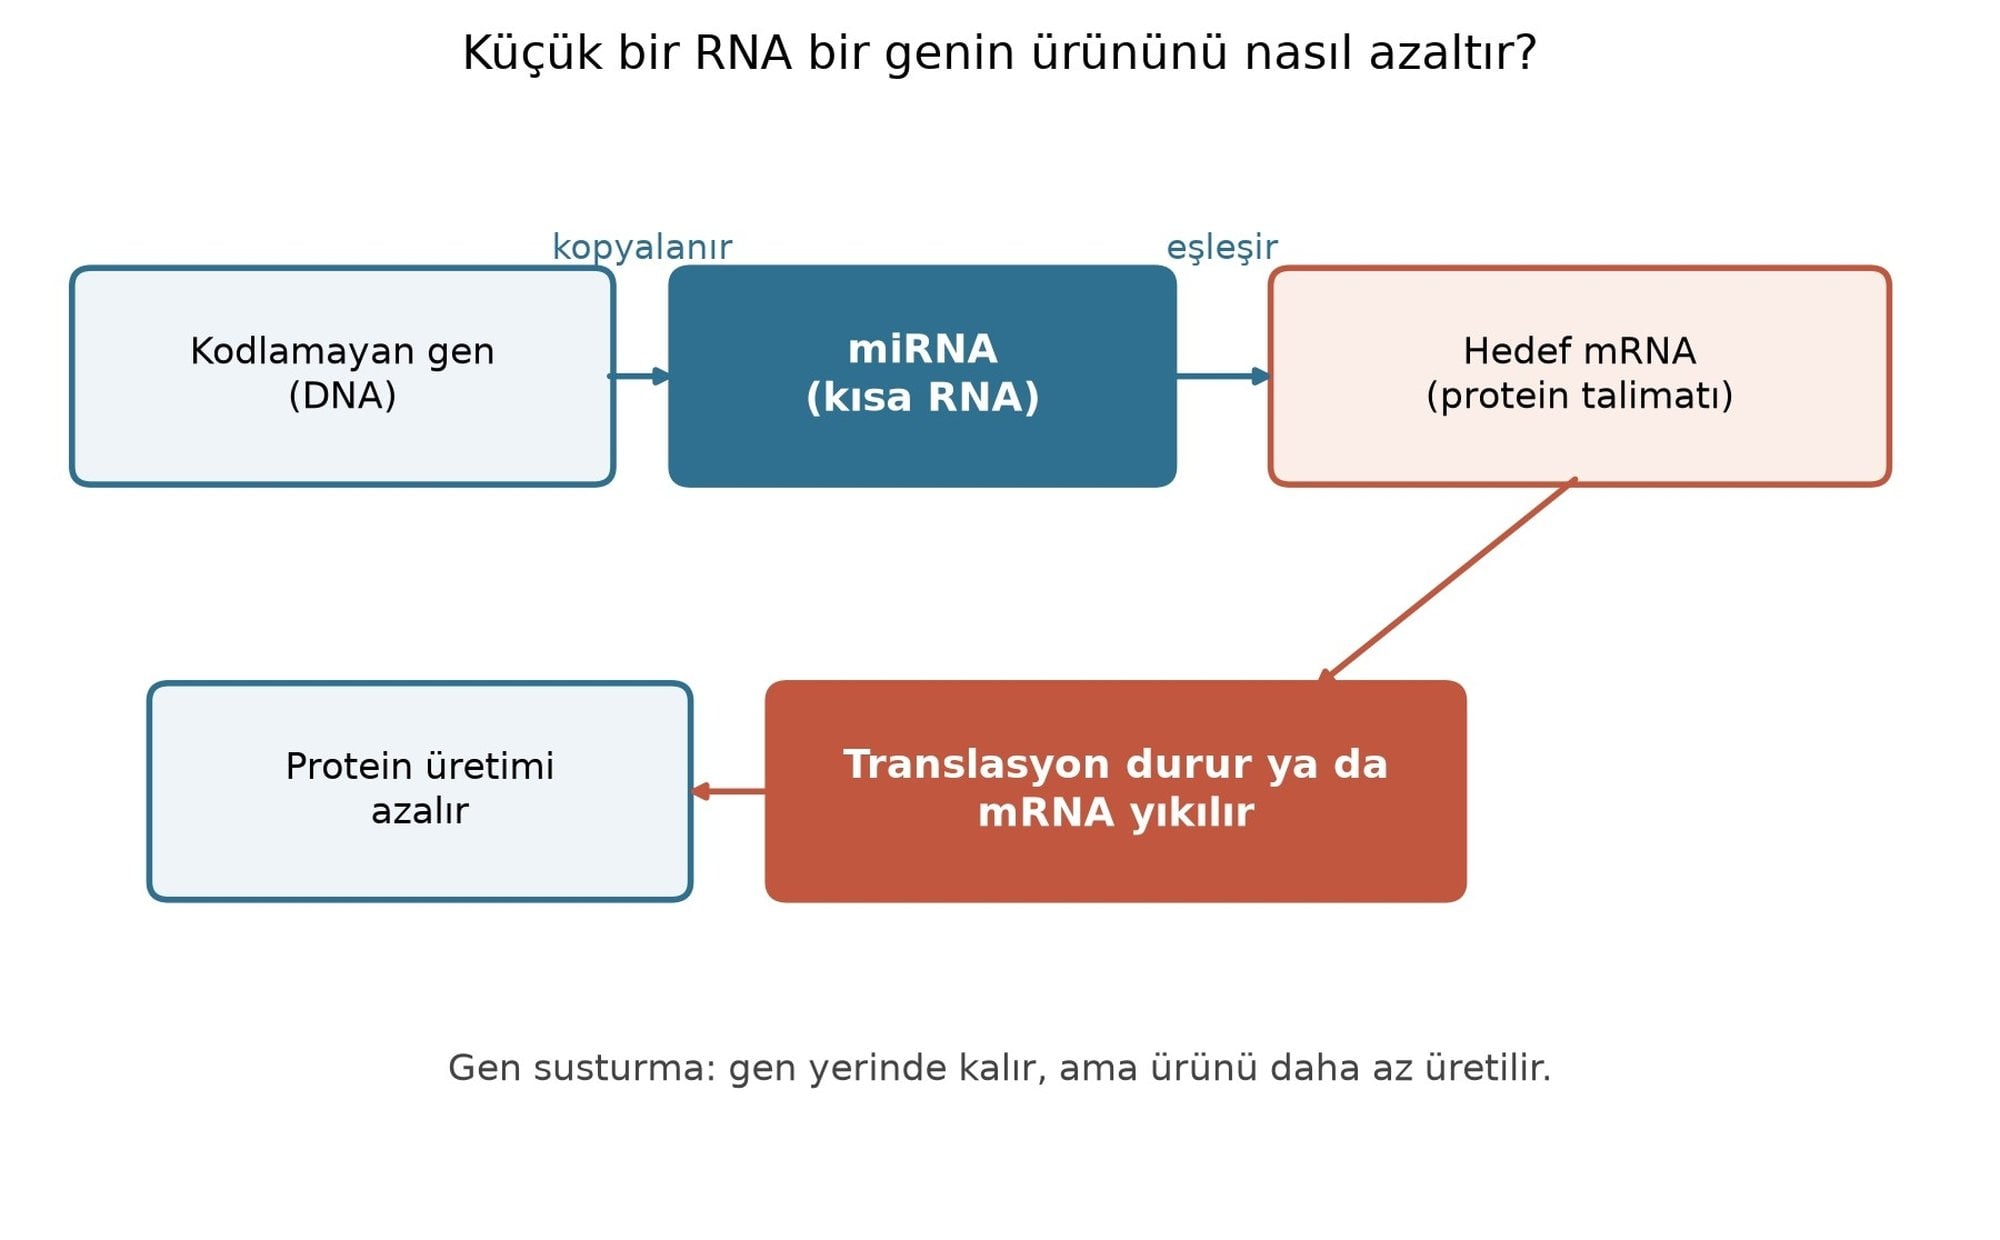
Gen ifadesini doğrudan baskılayabilen düzenleyici grupların başında, kısaca miRNA olarak bilinen mikroRNA molekülleri gelmektedir. Bunlar oldukça kısa RNA dizileridir. Hücre içindeki hedef mRNA moleküllerine özgül biçimde bağlanarak gen ifadesini düzenlemektedir.[2]
Düzenleyici RNA'ların etkisi tek bir genin ötesine geçerek bütün bir kromozomu susturabilmektedir. Örneğin iki X kromozomu taşıyan hücrelerde bunlardan birinin etkisiz hale getirilmesi süreci, kısaca lncRNA denilen uzun kodlamayan RNA (İng: "long noncoding RNA") grubundaki Xist molekülleri tarafından yönetilmektedir. Xist molekülleri iki X kromozomundan birini boydan boya kaplayarak bu kromozomun inaktive edilmesini sağlamaktadır. Bu tablo, RNA moleküllerinin sadece DNA'nın talimatlarını taşıyan pasif aracılar olmadığını göstermektedir. Bazı RNA'lar, gen ifadesinin düzenlenmesinde etkin rol oynamaktadır.[2]
Yaygın Kavram Yanılgıları ve Doğadaki İstisnalar
DNA ve RNA karşılaştırmaları özetlenirken kullanılan basitleştirilmiş şemalar, moleküler biyolojide sık rastlanan bazı kavram yanılgılarına zemin hazırlamaktadır. Nükleik asitleri ayırmak amacıyla kurulan mutlak kurallar hücresel gerçekliğin sadece bir bölümünü yansıtmaktadır. DNA tipik olarak çift zincirli sarmal yapıda bulunmaktadır, oysa RNA moleküllerinin her koşulda tek zincirli kaldığı varsayımı doğadaki yapısal çeşitlilikle uyuşmamaktadır. Hücresel RNA'lar bile kendi üzerine katlanabilmektedir.
Aşırı genellemeler genetik bilgi akışının yönü için de yapılmaktadır. Bilgi akışının her biyolojik sistemde istisnasız biçimde DNA'dan RNA'ya, oradan da proteine doğru ilerlediği düşüncesi eksik bir çerçevedir. Yine de ders şemaları çoğu kez tek yönlüdür. Eğitim araştırmaları öğrencilerin şemalardaki okları yanlış yorumlayabildiğini göstermektedir.[12] Viroloji bulguları ise doğada RNA'dan RNA'ya ve RNA'dan DNA'ya bilgi aktarımının gerçekleştiğini göstermektedir.[2], [13]
Transkripsiyon Okunun Anlamı ve Dönüşüm Yanılgısı
Genetik bilgi akışını özetleyen şemalarda DNA ile RNA arasına çizilen ok işareti, moleküler sürecin doğası hakkında kalıcı yanlış anlamalara yol açabilmektedir. Wright, Fisk ve Newman tarafından 2014 yılında yayımlanan araştırmada bu şematik okun nasıl yorumlandığı incelenmiş ve iki kavram yanılgısı saptanmıştır.[12] İlk yanılgı doğrudan kimyasal dönüşüm varsayımıdır. Yani transkripsiyon sırasında hücredeki mevcut DNA molekülünün kimyasal bir tepkimeyle doğrudan RNA molekülüne dönüştüğü sanılmaktadır.
Aynı araştırmada ortaya konan ikinci kavram yanılgısı ise sentezlenecek mRNA molekülünün transkripsiyon başlamadan önce hücrede zaten hazır bulunduğunun düşünülmesidir. İlk yanılgıda DNA'nın harcanarak başka bir maddeye dönüştüğü varsayılmaktadır. İkinci yanılgıda ise serbest yapı taşlarından yeni bir polimer sentezlendiği gözden kaçırılmaktadır. Oysa kimyasal tepkime denklemlerindeki ok işareti giren maddelerin ürüne dönüşmesini gösterirken, bilgi akışı şemalarındaki ok bambaşka bir süreci simgelemektedir. Burada molekül başka bir maddeye dönüşmemektedir.
Şemalardaki DNA'dan RNA'ya uzanan okun doğru bilimsel karşılığı, DNA'nın iki zincirinden birine tamamlayıcı yepyeni bir RNA molekülünün sentezlenmesidir.[12] Buna göre, transkripsiyon sırasında DNA'nın kalıp zinciri sadece sentez kılavuzu olarak kullanılmaktadır, dolayısıyla ortamda bulunan serbest ribonükleotitler uç uca eklenerek yeni RNA dizisi sıfırdan kurulmaktadır. Sonuçta özgün DNA hücrede korunmaktadır. Böylece işlem tamamlandığında kalıp DNA'nın yanında yeni üretilmiş bir RNA kopyası yer almaktadır.
Merkezi Dogma Sınırları ve Viral Genomlar
Moleküler biyolojide genetik bilgi akışını açıklayan merkezi dogma (İng: "central dogma") kavramı, çoğu zaman katı ve değişmez bir yol olarak sunulmaktadır. Oysa Roush ve Burmeister tarafından 2020 yılında vurgulandığı üzere, Francis Crick 1958 yılında merkezi dogma modelini ilk kez önerdiğinde böyle katı bir şema tarif etmemiştir.[13] Doğada bilginin RNA'dan RNA'ya kopyalanması ve RNA'dan DNA'ya aktarılması süreçleri de gerçekleşmektedir. Bu nedenle RNA'nın hiçbir koşulda kopyalanamayacağı iddiası geçerli değildir.
Virüs dünyası, nükleik asitlerin bilgi aktarım yönündeki bu esnekliğini somut örneklerle göstermektedir. Örneğin COVID-19 etkeni olan SARS-CoV-2, pozitif anlamlı tek zincirli bir RNA virüsüdür ve genetik bilgisi çoğalma sırasında hiçbir DNA evresinden geçmeden doğrudan RNA'dan RNA'ya kopyalanmaktadır.[13] Bazı virüslerde ise yön tersine dönmektedir. Örneğin insan bağışıklık yetmezliği virüsü (HIV) gibi etkenler, konak hücreyi enfekte ettikten sonra kendi RNA'sını kalıp alarak DNA üretmektedir. Bu sürece ters transkripsiyon adı verilmektedir.[2]
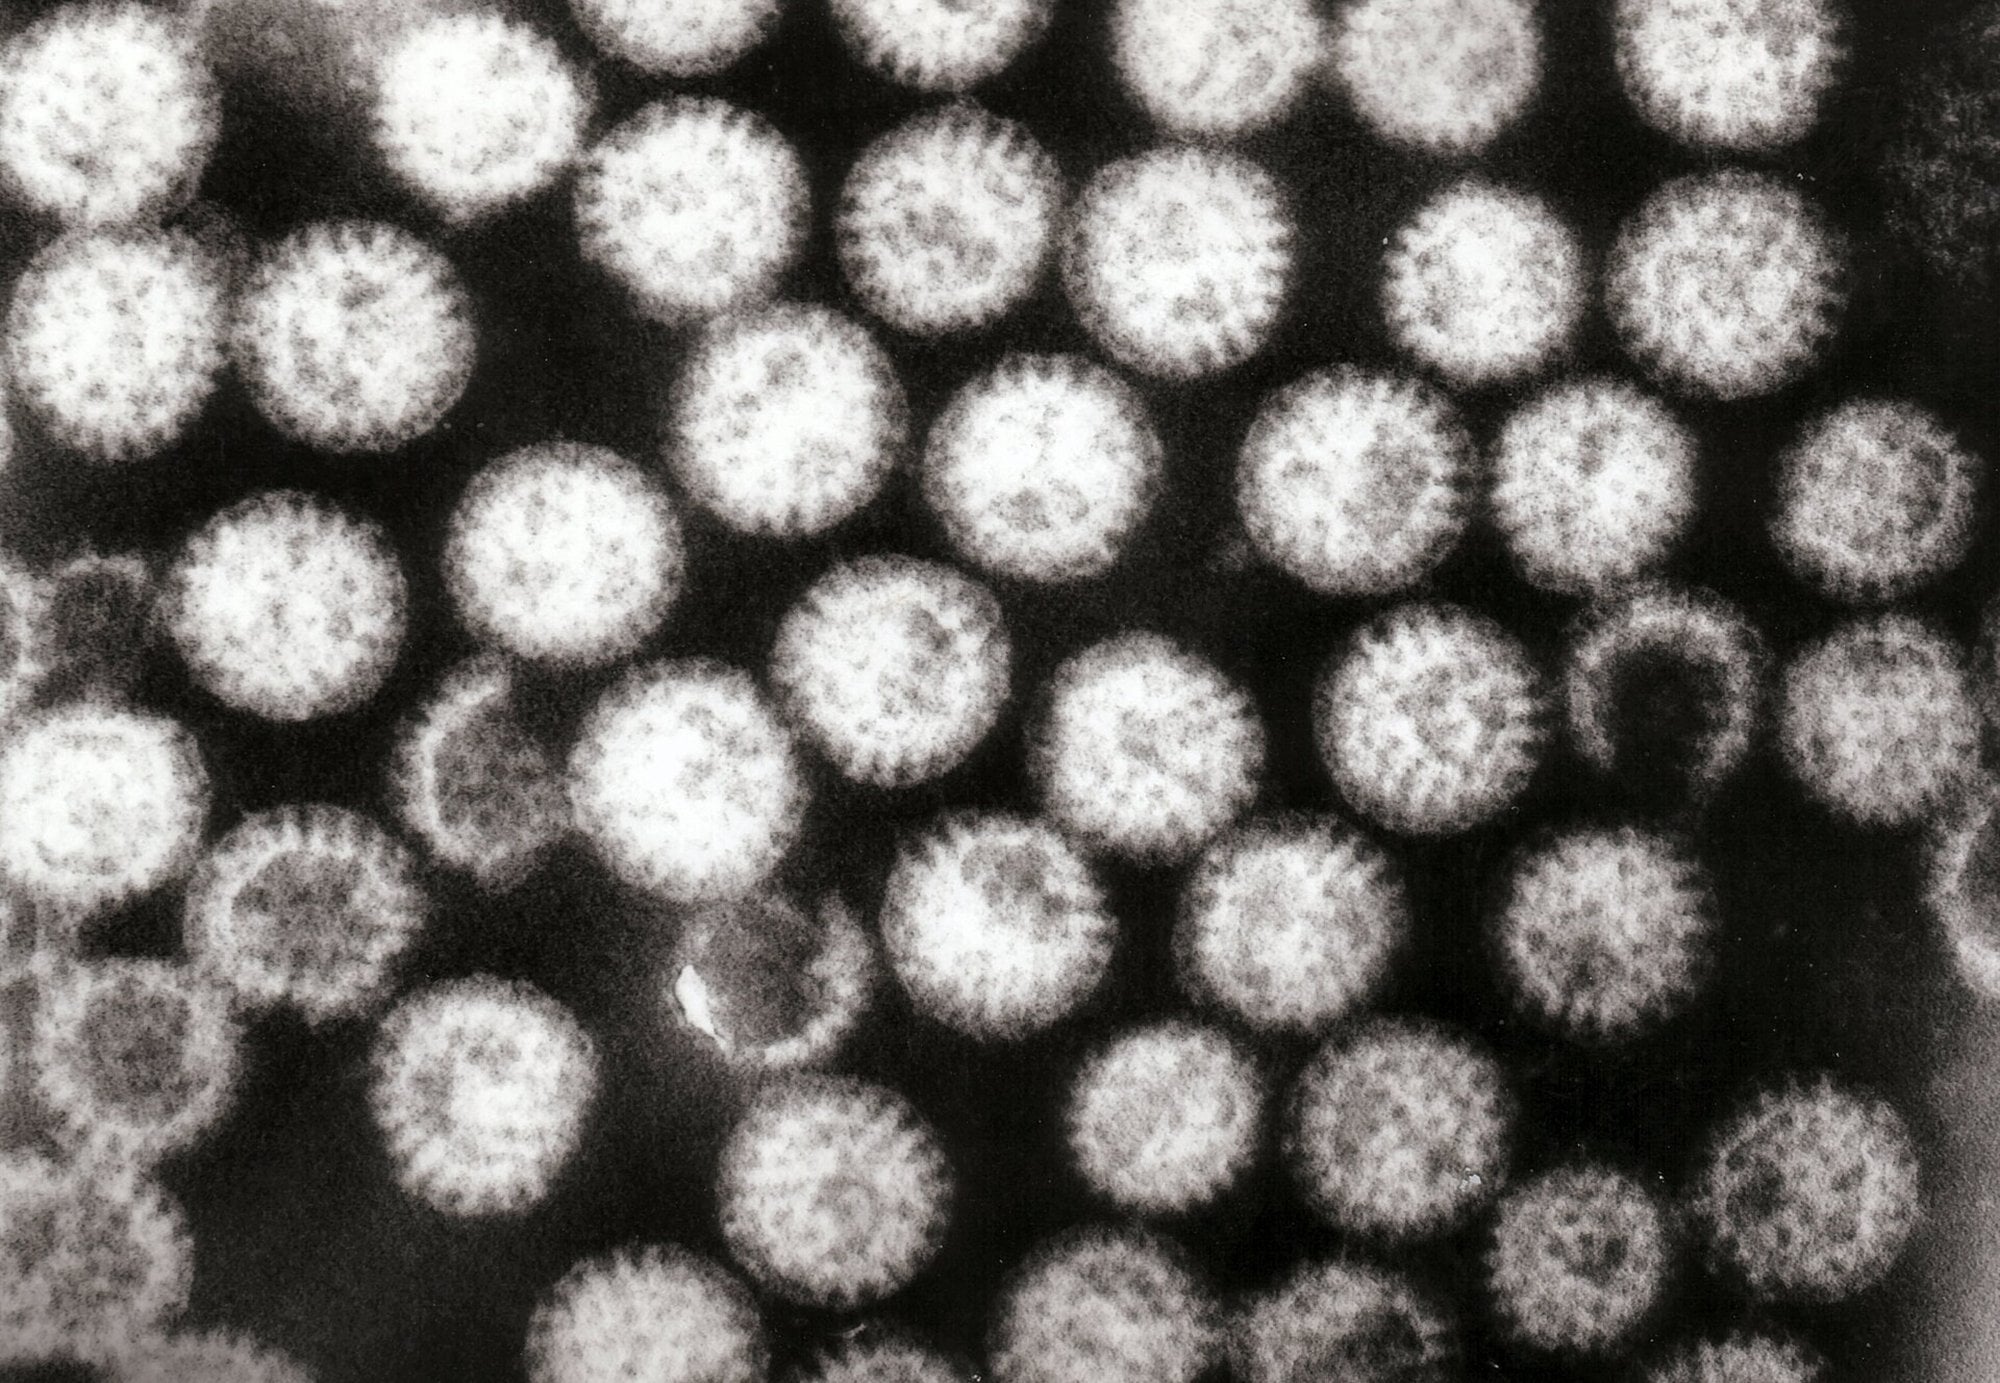
Viral genomlar nükleik asitlerin zincir sayısı hakkındaki kalıplaşmış varsayımları da yıkmaktadır. RNA doğada her zaman tek zincirli değildir. Zira Reoviridae ailesinde yer alan zarfsız rotavirüs, genetik materyal olarak çift zincirli RNA taşımakta ve tek zincir genellemesine somut bir karşı örnek oluşturmaktadır.[15] Ancak hücresel organizmalarda kalıtsal arşiv görevi çift zincirli DNA molekülünde toplanmakta, RNA ise dinamik işlevlerini sürdürmektedir.
Biyoteknolojide ve Yaşamın Kökeninde Nükleik Asitler
DNA ve RNA'nın kendine özgü kimyasal özellikleri, modern biyoteknolojinin geliştirdiği tanı ve koruma araçlarının temelini oluşturmaktadır. Laboratuvarda DNA kopyalama bu temele dayanmaktadır, çünkü DNA'nın çift zincirli sarmal yapısının uygun fiziksel koşullarda ayrılıp her bir zincirin yeni senteze kalıp olabilmesi, genetik materyalin deney tüpünde çoğaltılmasını sağlamaktadır. Küçük DNA parçalarının kopya sayısını artırmak amacıyla kullanılan ve kısaca PCR denilen bu tekniğe polimeraz zincir tepkimesi (İng: "polymerase chain reaction") adı verilmektedir.[14]
PCR sürecinin ilk aşamasında örnek ısıtılarak çift zincirli DNA molekülünün denatüre olması, yani iki ayrı tek zincirli parçaya ayrılması sağlanmaktadır. Ardından kısa primer dizileri bu tek zincirlere bağlanmakta ve Taq polimeraz enzimi ayrılan özgün zincirleri kalıp olarak kullanarak iki yeni DNA zinciri sentezlemektedir.[4], [14] Ortaya çıkan kopyalar yarı korunumlu yapıyı yansıtmaktadır. Yani her yeni DNA molekülü bir eski zincir ile bir yeni zincir içermektedir. Yüksek hassasiyetli bu yöntem günümüzde DNA parmak izi incelemelerinde, bakteri ya da HIV gibi virüslerin saptanmasında ve kalıtsal hastalıkların tanısında yaygın biçimde kullanılmaktadır.[14]
Öte yandan RNA molekülünün geçici bilgi taşıma niteliği modern aşı teknolojilerine uyarlanmıştır. Geliştirilen mRNA aşılarındaki RNA dizileri, hedef virüse ait bir proteinin veya protein parçasının üretim bilgisini taşımaktadır. Bu mRNA'lar hücrelere girdiğinde hücresel translasyon düzeneği bu bilgiyi kullanarak ilgili virüs proteinini üretmektedir.[2] Bu uygulamada RNA, protein üretimi için bir kılavuz olarak kullanılmaktadır.[2]
İki molekülün üstlendiği bu işbölümü, canlılığın Dünya üzerinde ilk kez nasıl ortaya çıktığı sorusuna da yön vermektedir. Günümüz hücrelerinde DNA kalıtsal bilgiyi saklamaktadır ve proteinler tepkimeleri yürütmektedir, oysa RNA hem genetik bilgi taşıyabilmekte hem de ribozim kimliğiyle kimyasal tepkimeleri katalizleyebilmektedir. Hatta bazı araştırmacılar bu çift yönlü yetenekten yola çıkarak yaşamın kendi kendini kopyalayabilen bir RNA molekülüyle başladığını öne sürmektedir. Fakat bu görüş kesinleşmiş bir olgu değildir. RNA dünyası hipotezi (İng: "RNA World Hypothesis") olarak adlandırılan bu yaklaşım, yaşamın kökenine dair tartışılan bir açıklamadır.[2]
Sonuç
DNA ile RNA arasındaki farklar, genetik bilginin kuşaklar boyu bozulmadan saklanmasını ve hücresel süreçlerin hızlı ve esnek biçimde yürütülmesini aynı anda mümkün kılan kimyasal bir uzmanlaşmanın sonucudur. Deoksiriboz şekerinin 2′ karbonunda hidroksil yerine hidrojen bulunması DNA omurgasını iç hidrolitik kopmalardan korurken, ribozun 2′ hidroksil grubu RNA'yı görev süresi bittiğinde yıkılabilen dinamik bir aracı haline getirmektedir. Benzer şekilde sitozinin kendiliğinden deaminasyon ile urasile dönüşmesi karşısında DNA'nın timin barındırması, kalıtsal arşivdeki kimyasal hasarın tanınmasını sağlamaktadır.[6]
Bu yapısal ayrım, bir molekülün diğerinden daha önemli olduğunu değil, karmaşık canlılığın hem kararlı bir arşive hem de çok yönlü bir uygulayıcıya ihtiyaç duyduğunu göstermektedir. Kendi kendini kopyalayabilen bir RNA öncülünü tartışan RNA dünyası hipotezinden günümüz hücrelerindeki gen ifadesi ağlarına uzanan tablo, bilgi depolama ve kataliz görevlerinin zamanla nasıl ayrışmış olabileceği sorusunu akla getirmektedir. Bugün PCR gibi DNA'nın çift zincirli yapısını temel alan teknikler ve mRNA aşıları gibi RNA'nın bilgi taşıma işlevinden yararlanan uygulamalar, bu iki nükleik asidin özelliklerinin bilinmesine dayanmaktadır.[2], [14]
- Muhteşem!0
- Tebrikler!0
- Bilim Budur!0
- Mmm... Çok sapyoseksüel!0
- Güldürdü0
- İnanılmaz0
- Umut Verici!0
- Merak Uyandırıcı!0
- Üzücü!0
- Grrr... *@$#0
- İğrenç!0
- Korkutucu!0
Bilimsel bir hata mı gördün?
Evrim Ağacı'na her ay sadece 1 kahve ısmarlayarak destek olmak ister misin?
Şu iki siteden biriyle hemen destek olabilirsin:
kreosus.com/evrimagaci | patreon.com/evrimagaci
Çıktı Bilgisi: Bu sayfa, Evrim Ağacı yazdırma aracıyla 21.11.2026 00:21:04 tarihinde oluşturuldu. Evrim Ağacı'ndaki içerikleri birden fazla editör sürekli gözden geçiriyor, güncelliyor ve geliştiriyor. Bu çıktıdan sonraki güncellemeleri görmek ve içeriğin en güncel hâlini okumak için şu adrese git: evrimagaci.org/s/24175
İçerik Kullanım İzinleri: Evrim Ağacı'ndaki yazılı içerikler orijinallerine hiçbir şekilde dokunulmadığı sürece izin alınmaksızın paylaşılabilir, kopyalanabilir, yapıştırılabilir, çoğaltılabilir, basılabilir, dağıtılabilir, yayılabilir, alıntılanabilir. Ancak bu içeriklerin hiçbiri izin alınmaksızın değiştirilemez ve değiştirilmiş hâlleri Evrim Ağacı'na aitmiş gibi sunulamaz. Benzer şekilde, içeriklerin hiçbiri, söz konusu içeriğin açıkça belirtilmiş yazarlarından ve Evrim Ağacı'ndan başkasına aitmiş gibi sunulamaz.